3.3 翻译与蛋白表达产量
3.3 翻译与蛋白表达产量
本节摘要:翻译把 mRNA 上的三联密码子写成氨基酸序列。起始多从 AUG 开始,终止碰到三个终止密码子之一。台上的蛋白产量取决于密码子是否合宿主胃口、阅读框有没有移、折叠有没有成功、诱导有没有把细胞累死。胶上有带只证明多肽被做出来了,不证明它折对、有活性、或者和体内修饰一致。
读前必看
阅读完本节,你应当能够:
- 从载体图谱核对标签、起始、终止是否在同一阅读框
- 解释稀有密码子、mRNA 二级结构、诱导强度如何压低产量
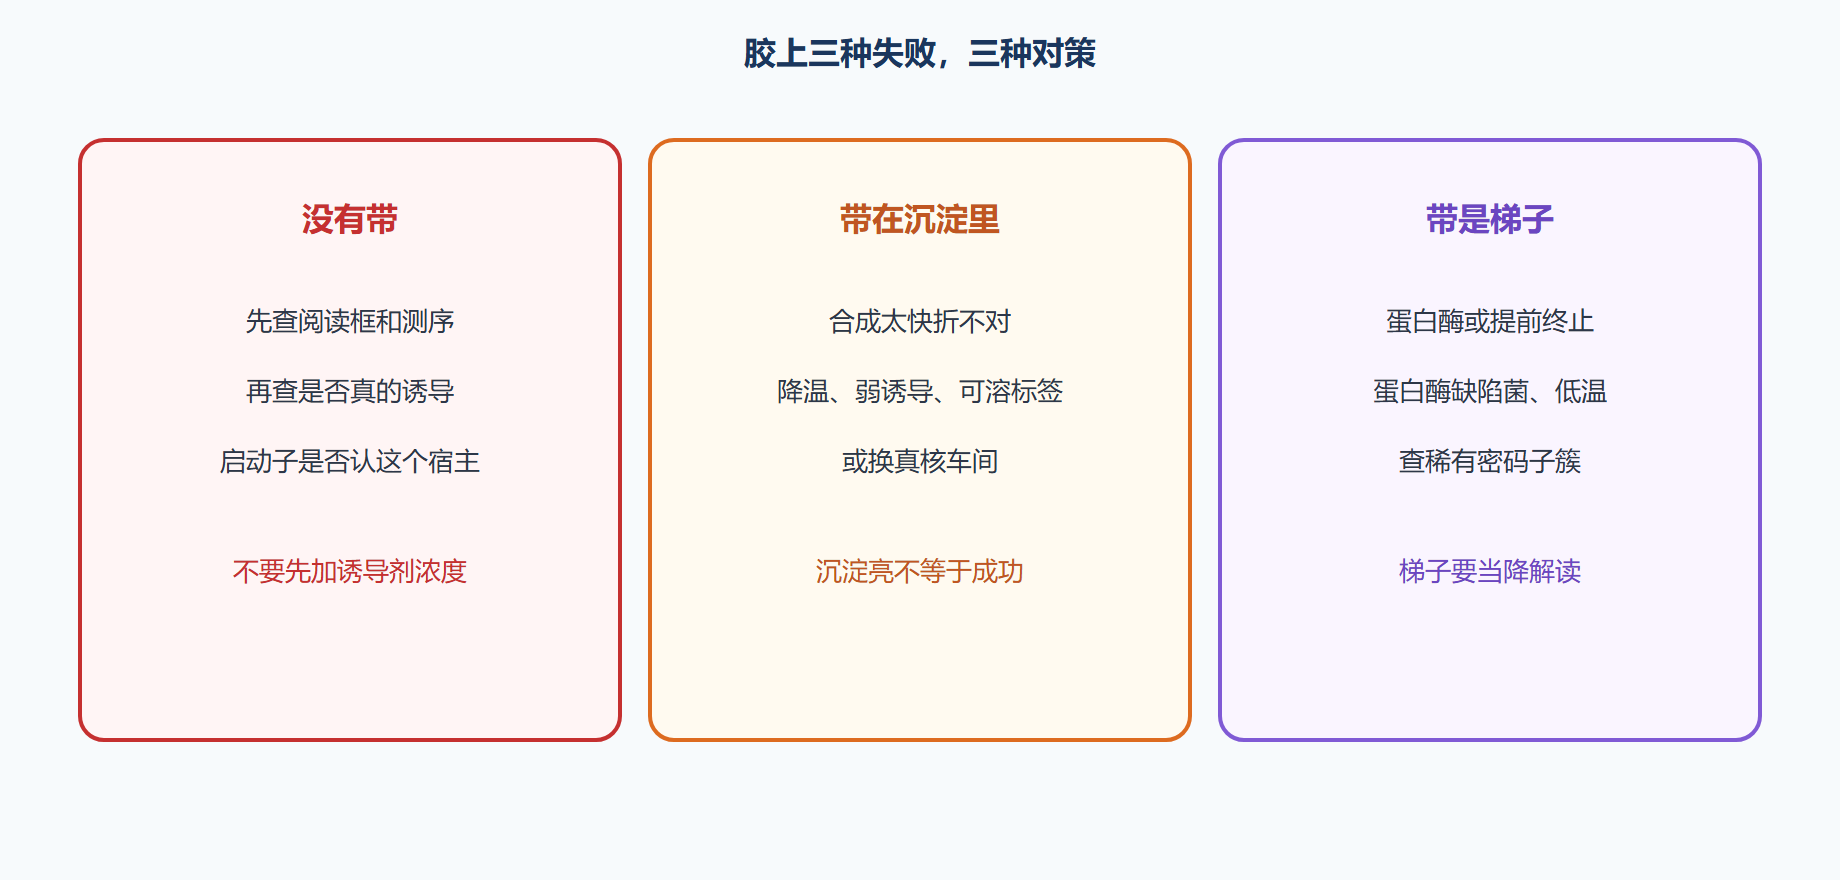
- 区分可溶表达、包涵体、降解梯子三种失败
- 在细菌、酵母、昆虫、哺乳动物系统之间按蛋白需求初选
先读图谱,再开摇床
表达失败最常见的原因不是“核糖体坏了”,是框错了。标签多一个碱基、酶切残留造成移码、终止密码子提前、内含子没去掉就拿基因组去表达真核基因——胶上没有带或带小得离谱。克隆测序不是行政手续,是翻译课的入学考试。
把翻译当成按三字母口令搬砖。口令本(密码子表)几乎通用,这是基因工程能跨物种的前提。但同义密码子的使用频率各物种不同,大肠杆菌碰到一串人类稀有密码子会卡住,产量下降或提前放弃。优化密码子是迁就宿主的 tRNA 池,不是改蛋白身份。
开摇床前核对: 插入方向 起始密码子到标签无移码 终止是否在标签之后还是之前 按你是否要融合 内含子已去除 用 cDNA 不是基因组 抗性与诱导剂匹配载体
核糖体有三个位点习惯上叫 A、P、E:进氨酰 tRNA、形成肽键、空 tRNA 离开。起始要专门的起始 tRNA 和起始因子,原核还有核糖体结合序列靠近起始密码子。你在细菌载体里放的核糖体结合位点到 AUG 的距离差几个碱基,产量就能差一截。真核更依赖 5 端帽子扫描,所以真核表达载体要管好 5 端非翻译区,而不是只贴一个细菌核糖体结合位点。
| 现象 | 更可能的翻译侧原因 | 别先怪的东西 |
|---|---|---|
| 完全无带 | 框错、未诱导、启动子不匹配宿主 | 考马斯染料过期 |
| 带很淡 | 密码子、稀有 tRNA、mRNA 不稳 | 立刻换最贵培养基 |
| 带在沉淀 | 折叠失败、过快合成 | 只加更多 IPTG |
| 带偏小梯子 | 蛋白酶、提前终止 | 换抗体品牌 |
| 有带无活性 | 缺修饰、缺伴侣、缺辅基 | 断言基因功能为假 |
产量是合成减去损失
合成受启动子强度、诱导物、拷贝数、mRNA 寿命、翻译起始效率约束。损失受蛋白酶、包涵体、细胞死亡约束。把 IPTG 开到最大,有时产量反而下降,因为包涵体和应激把细胞拖垮。第 4.1 节会细讲诱导;这里先记住:翻译机器有负载上限。
翻译后修饰在原核很吝啬。糖基化、复杂二硫、磷酸化模式,往往需要真核宿主。你在细菌里得到正确分子量的带,仍可能没有活性,因为没有糖或没有配对的亚基。这不是细菌无能,是你把问题交给了不配备该车间的工厂。第 6.2 节把工厂选型展开。
无细胞翻译体系把核糖体倒进管子,适合有毒蛋白和快速筛突变,产量和折叠仍受同样化学限制,只是没有细胞壁挡着。它不是魔法产量开关。
⚠️ 常见坑:看见预测分子量的带就做功能结论,却没做空载对照。宿主蛋白有时恰好跑在附近。空载诱导泳道是最低礼貌。
💡 关键直觉:翻译读的是框和密码子,不读你心里的基因名字。框错一个碱基,后面全是别人的句子。
稀有密码子可以通过共表达稀有 tRNA 的菌株缓解,也可以改基因序列。膜蛋白还有插入内膜的问题,需要信号肽和膜插入机器。可溶标签(麦芽糖结合蛋白一类)有时能把乘客拖进可溶分数,切标签后乘客仍可能掉下去——标签是拐杖,不是永久骨架。
图 表达失败三分法
工程实践:从摇瓶数字到决策
记录诱导时的菌密度、温度、时间、诱导剂浓度。没有这些,下次无法复现。取样要同时留全菌、上清、沉淀,否则你不知道带去哪了。超声条件影响“可溶”定义:超声过猛把包涵体打碎成假可溶,离心条件一变又掉下去。
纯化标签有各自的坑。组氨酸标签在镍柱上会碰上宿主组氨酸丰富蛋白;咪唑梯度要做,不要一步高咪唑冲下来当纯品。GST 标签大,可能影响二聚。切标签的蛋白酶本身会留下疤痕氨基酸,有的蛋白在乎。
功能测定必须进计划。酶要用底物;结合蛋白要用对照蛋白;抗体要用抗原。没有功能读数的“高产量”只是生物量。冻存缓冲加甘油、避免反复冻融,是在保护已经花掉的翻译和折叠成本。
密码子优化工具会改掉隐秘剪接位点或 DNA 结构,偶尔伤害真核表达。优化完仍要测序和功能。不要把优化当成一定增产的咒语。
问题:无终止的融合蛋白一直翻译到哪里?
一直到载体上碰巧出现的终止。可能拖出一条又大又不稳定的怪物,胶上位置完全不对。图谱上必须看见终止策略:要么基因自带,要么标签后有。
问题:为什么加富含稀有 tRNA 的菌株有时仍没用?
如果瓶颈是折叠或膜插入,tRNA 不是瓶颈。先看带在上清还是沉淀,再决定是优化密码子还是降温换系统。工具要对准真正的限制步骤。
阅读框工具应成为克隆后的肌肉记忆。遇到融合蛋白,先数从标签起始到插入起始的碱基是否为三的倍数。酶切位点残留的额外氨基酸有时无所谓,有时正好毁掉氨基端信号肽。分泌蛋白在细菌周质或培养基里才有机会形成正确二硫,胞内表达则常需氧化还原酶工程菌株。膜蛋白的疏水跨膜段在 SDS 胶上迁移异常几乎是常态,不要用胶上位置否定序列。
诱导后取样的全菌裂解若粘稠,说明核酸没切碎,蛋白定量和上样都会假。加核酸酶或适当超声,是为了让胶诚实。包涵体复性需要溶解在高脲或胍里再透析或稀释,每一步都在赌。研究级功能验证能用可溶分数就不要赌。工业上有成熟复性的蛋白,那是工艺资产,不是你明天就能复制的操作。
密码子优化会改变 DNA 的限制酶图谱和引物结合,后续突变实验要用优化后的序列设计。优化也可能去掉或引入隐秘内部核糖体结合位点,造出截短带。看见偏小的带,除了降解,也要在序列上找第二个 AUG。翻译不是从你命名的那个起始唯一开始的。这是框和密码子之外的第三种“序列谎言”。
摇瓶装液量和通气决定溶氧,装太满的“高密度”常是无氧应激。挡板瓶能改善,剪切也会增加。记下装液比例。诱导时的浊度用同一台光度计,换杯子换光程会让“0.6”不再是 0.6。取样体积按后期生物量调整,让胶上蛋白量可比。标签抗体和目标抗体都要看,切标签后确认切口。镍柱的咪唑梯度比一步冲更费事,也更能把宿主蛋白留下。透析或脱盐后立刻测活性,放过夜再测会把折叠问题推迟成“储存问题”。空载诱导泳道永远占一张胶的位置。没有空载的漂亮带,默认可疑。把这句话印在表达记录本页眉。
稀有密码子簇常在氨基端,起始附近的停顿会让整条链产量崩。优化或共表达转运RNA对这类特别有效。膜蛋白加膜组分或降低温度,有时比换启动子有用。可溶标签切完沉淀,说明乘客自己不会游,标签是救生圈。决定是带着圈做功能还是换系统。氨基酸补料在高密度表达有帮助,摇瓶里效果有限。记录是否补料,避免跨实验比较。质谱确认条带身份,在宿主带靠近目标时值得做。只靠分子量会认错人。表达失败鉴别诊断按阅读框、诱导、折叠、降解的顺序走,不要从最贵的系统换起。
氨基端稀有密码子停顿要用序列眼睛看,不要等胶上没带才去优化。看到成串稀有密码子就先改或换转运RNA菌株。这是便宜的翻译课,比换发酵罐早十年该上。切标签后若乘客沉淀,说明救生圈不是骨架,决定带着标签做功能还是换车间。空载诱导泳道永远占位置,没有空载的漂亮带默认可疑。
阅读框、诱导、折叠、降解按这个顺序排查。从最贵系统换起是最慢的路。空载泳道、全菌与可溶分装、浊度计固定,三件都比新发酵罐先做。氨基端密码子用眼睛看完再摇。切标签后沉淀说明救生圈不是骨架。质谱认条带,分子量会认错人。装液量和通气写进记录。
排查顺序不可逆:框、诱导、折叠、降解。跳步去换最贵车间,只会把错误带到更贵的培养基里。空载、分装、固定光度计,是表达实验的空对三件套。氨基端密码子用眼睛看,切标签后看乘客会不会游。分子量认人会认错,必要时质谱点头。
密码子优化不是把所有稀有密码子都换成最常见那个。翻译过快会让结构域来不及折叠,大肠杆菌包涵体常常是折叠速度输给了合成速度。先降温诱导,再考虑换标签或换宿主。诱导过晚溶氧掉,过早则生物量不够,时间点比诱导剂品牌更常决定产量。
包涵体不一定是失败,有时是保护;但你要先证明它能复性,再把它写进产量。
要点速记
- 框错则全错:测序覆盖接头是翻译的入场券。
- 密码子表通用,密码子偏好不通用:优化是迁就 tRNA 池。
- 产量等于合成减损失:猛诱导可能增加损失。
- 有带 ≠ 有功能:修饰、辅基、亚基、折叠都可能缺席。
- 三种失败三种对策:无带查框,沉淀查折叠,梯子查降解。
- 空载泳道是礼貌:宿主带会冒充目标。
- 系统选型看修饰需求:细菌不是万能车间。
下一节把 RNA 翻回 DNA:逆转录酶怎么选引物,cDNA 又怎样把 RNA 问题变成 PCR 问题。