6.4 合成生物学回路怎么搭
6.4 合成生物学回路怎么搭
本节摘要:合成生物学把启动子、核糖体结合位点、编码序列、终止子当成可替换零件,按工程图搭出开关、振荡或代谢通路。动手时最小回路优于宏大图纸:先让一个诱导开关在你的宿主里正交工作,再叠加。串扰、负荷、进化丢失是默认敌人。底层仍是第 1 章的克隆和第 4 章的开关,只是零件数变多、测量必须更定量。
阅读收获
阅读完本节,你应当能够:
- 用零件清单描述一个诱导表达回路,而不是用口号描述“人工生命”
- 解释正交启动子和正交聚合酶如何减少串扰
- 把宿主负荷和质粒丢失写成必测项,而不是失败后的惊讶
- 判断何时该用基因组整合代替多质粒
先搭一个开关,再谈底盘
最小可发表的合成回路常常是:输入分子 → 转录因子占用变化 → 启动子输出荧光。测量剂量响应曲线,看本底、诱导倍数、是否饱和。这比画一张十个元件的网络更接近工程。十个元件的网络在论文里好看,在菌里会抢资源、串启动子、被进化拆掉。
把它当成用积木搭电路。先让一盏灯被一个开关控制,再并联第二盏。一开始就搭城市电网,保险丝(细胞资源)会跳。第 4.1 节的 IPTG 开关是积木;合成生物学是把积木标准化、测量曲线、尝试预测下一块怎么接。预测常失败,所以测量是主业。
零件层: 启动子 听谁的转录因子 RBS 翻译起始强度 CDS 输出蛋白或酶 终止子 别让转录读穿 绝缘序列 减轻上下文效应 复制子 拷贝数 即剂量
上下文效应:同一启动子接不同下游,强度就变,因为 DNA 结构、RNA 结构、距离都在变。绝缘子、固定间隔、表征时用同一下游,是为了让零件数字可迁移。完全迁移做不到,只能减少意外。声称“这个启动子在任何基因前面都是 1000 单位”的,多半没测过你的基因。
| 设计目标 | 更稳的做法 | 更脆的做法 |
|---|---|---|
| 开关 | 单输入、测全曲线 | 多层逻辑一次搭完 |
| 正交 | 异源聚合酶、少交叉的 TF | 多个 lac 家族挤在一起 |
| 稳定 | 基因组整合、降低负荷 | 五质粒抗生素维持 |
| 代谢 | 逐步加酶、测中间物 | 一次性倒入整条通路 |
| 预测 | 用自己底盘的表征数据 | 直接抄别的菌的强度表 |
负荷、串扰、进化:三种默认故障
负荷:表达大量无用荧光或核酸酶,生长变慢,回路行为随生长相改变。看起来像“逻辑变了”,其实是细胞在罢工。测生长曲线应与荧光一起记。串扰:两个启动子都漏听对方的转录因子,或终止子读穿让下游意外点亮。正交零件库就是为了减少串扰,不是为了好看的名字。进化:有毒或负担大的回路在传代中被突变关掉。质粒尤其容易。要长期功能,整合并降低表达,或接受必须在选择压下工作。
代谢工程把回路接到酶。中间产物有毒时,通量不是越大越好。动态调控(只在需要时开酶)比把所有酶拧到最大更像活的工艺。测量中间物,不要只测终产物和外源基因的 PCR 阳性。
⚠️ 常见坑:用不同质粒抗性“保证都在”,却不测拷贝数。抗生素浓度一变,剂量全变,曲线不可比。
💡 关键直觉:细胞不是面包板。每加一个零件都在改生长和进化压力。图纸守恒,细胞不守恒。
无细胞合成回路用于快速筛零件,没有进化丢失,也没有真实的资源分配。结论迁回活细胞必须重测。活细胞是底盘,底盘会还击。
图 最小回路与宏大图纸
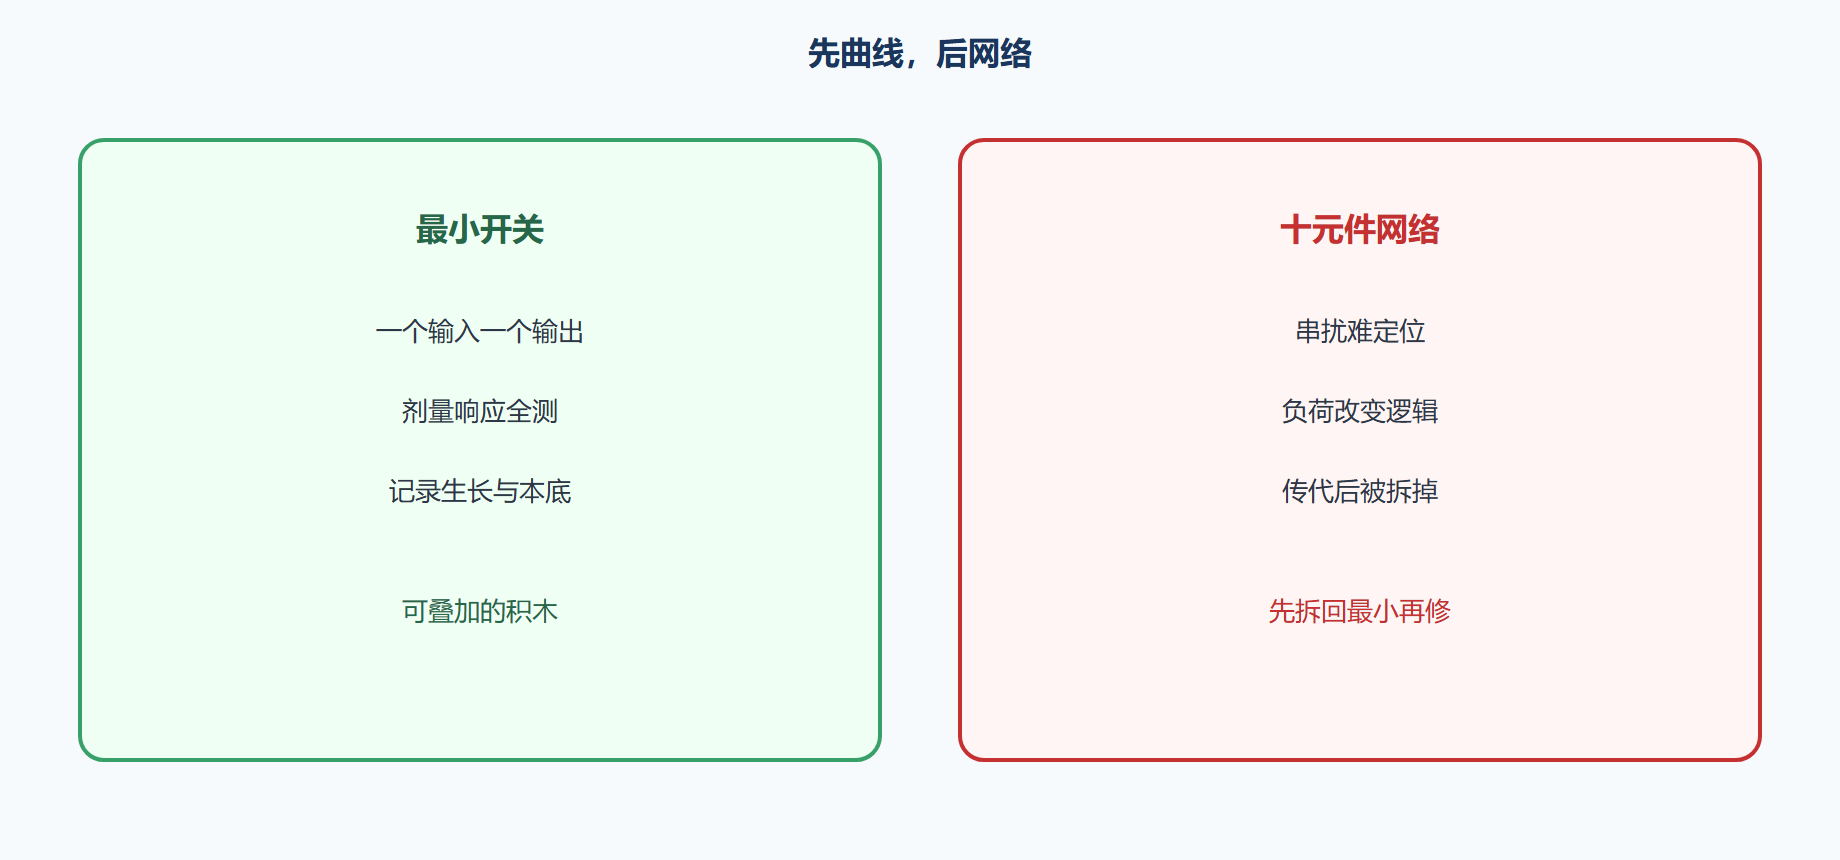
工程实践:表征协议比零件名重要
同一天同一培养基测曲线。绝对荧光随仪器变,报告倍数和本底更可迁移。标准化珠或参比启动子有帮助,仍要写仪器。零件注册表里的数字是别人的底盘,当你的起始点,不是终点。
多质粒维持用抗生素,整合用同源重组或位点特异酶。教学回路用质粒没问题。要做材料或活治疗底盘,整合和杀开关、营养依赖是另一层安全设计,见 6.5。
调试策略:不亮先查零件是否还在(测序、PCR),再查输入是否进细胞,再查输出蛋白是否有毒。全拆成最小开关定位,不要在十元件上同时改五个 RBS。
合成基因组、最小细胞是前沿,不是入门作业。入门作业是一张剂量曲线和一份告诉你本底从哪来的对照。
问题:能不能把真核增强子当细菌零件用?
多数不能直接用。物种的转录机器不同。跨域要换对应零件库。名字都叫启动子,识别蛋白不是同一国的。
问题:振荡器搭不出来是不是理论错了?
更常是延迟、噪声、负荷没按理论参数走。先测单开关的时间常数,再谈振荡条件。理论提供搜索方向,底盘提供否决。
绝缘子和终止子强度要用读穿报告来测:下游再放一个不同颜色的报告,看有没有漏光。漏光不是小事,逻辑门会因此变成“总是有点亮”。RBS 计算工具给出的强度在真实 5 端结构里会失效,最终仍靠测。把零件表征协议写死:菌株、温度、培养基、生长相、仪器增益。换其中一项就要重测基线。
进化实验可以故意取消选择压传代,看回路多久被拆。拆掉的位置告诉你负担在哪:常在有毒输出或强启动子。下一轮设计就降那一处。这比再画一张更复杂的网络更接近工程迭代。社区标准零件方便分享,但批次和突变会让“同一编号”不再同一。收到零件先测序。动手优先在合成生物学里,是测序和曲线,不是零件目录的收藏数。
真核合成回路还要对付染色质位置效应和剪接意外。整合位点不同,同一回路强度可以差很多。绝缘和位点特异整合是真核底盘的刚需。不要把细菌里调好的数字写进哺乳动物论文当已知。底盘换了,一切重测。这句话值得写在每一张回路图的图注里。
零件到货先测序再接入回路,突变零件会造成无法定位的逻辑错误。表征当天的生长相写死,平台期和对数期的启动子表现不同。荧光归一用 OD 或细胞计数,注明光程。剂量响应至少五个点加溶剂对照,两点连线不是曲线。读穿报告用不同光谱,补偿要做。多质粒的抗生素浓度滴定,过低丢质粒,过高增负担。整合后仍测拷贝,意外多拷贝会让数字不可比。传代实验取消选择压十代,看输出是否还在。不在则把突变位点测序,指导下一代减负。图纸保守、细胞不保守。把这句话写在回路图旁边,每次叠加元件时读一遍。最小开关能工作,再谈第二层逻辑。第二层失败先拆回第一层,不在十元件上同时改五个 RBS。
零件表征用同一报告基因,换报告等于换尺子。上下文效应用绝缘和固定间隔减轻,不能消灭,所以每个新下游仍要测两点确认。负荷用生长曲线和转录组里的应急基因当哨兵。应急明显时先减表达。进化丢失的突变常落在有毒编码序列或强启动子,测序几个逃逸株就能指导下一轮。杀开关在无选择压下会坏,开放释放不能靠开关口号。整合位点效应用多个独立整合株说话,单克隆漂亮可能是位置彩票。真核回路尤其如此。底盘换了数字作废,图注写明底盘。
换报告基因等于换尺子,零件强度要在同一尺子下重测。逃逸株测序能告诉你负担在哪。杀开关会坏,开放释放不能靠口号。图注写底盘,底盘一换数字作废。先最小开关的剂量曲线,再叠加第二层。负荷用生长曲线当哨兵。多质粒拷贝是隐藏变量,抗生素不是剂量计。别人的表征表只是起点。
同一尺子表征零件。生长曲线当负荷哨兵。逃逸测序指导减负。最小开关先于十元件。整合降丢失。图注写底盘。杀开关会进化失效。第二层失败先拆回第一层。读穿用第二颜色测。到货零件先测序。传代取消选择压,看是否被拆掉。
同一尺子、负荷哨兵、逃逸测序、最小开关、整合、底盘图注、杀开关失效、拆回第一层,八项迭代。读穿用第二色。到货先测序。无选择压传代看是否被拆。换报告即换尺。十元件失败先回到一盏灯。细胞不是面包板。
迭代八项:同一尺子、负荷哨兵、逃逸测序、最小开关、整合、底盘图注、杀开关会坏、拆回第一层。八项转一圈再叠加元件。读穿第二色。到货先测序。无选择压传代。换报告即换尺。细胞不是面包板。图纸守恒细胞不守恒。
把叠加权留给已经工作的最小开关。开关的本底、倍数、生长代价不清楚,网络只是把未知相乘。相乘之后你无法定位是哪一个零件在撒谎。定位能力比元件数量更接近工程。数量是海报,定位是工艺。
海报上的元件数量不能代替定位能力。不能定位的网络,调试时只会同时拧五个旋钮。
先让一盏灯听话,再并联第二盏。电网图纸不能代替保险丝还没测过的那盏灯。
保险丝没测过,图纸只是海报。
绝缘子和终止子写在图纸上,不等于在你的底盘里工作。先测每个元件的输入输出,再串联。一次组装五级回路,调试时你不知道该拧哪一颗螺丝。拷贝数、生长阶段和培养基都会改回路行为,把这些写成变量,不要写成意外。
重点提炼
- 最小开关先于网络:曲线是硬通货。
- 零件强度有上下文:换下游就重测。
- 正交减少串扰:同家族开关挤在一起会漏听。
- 负荷会改逻辑:生长曲线必须记。
- 进化会拆回路:长期用整合和降负担。
- 多质粒拷贝是隐藏变量:抗性不是剂量计。
- 别人的表征表只是起点:在自己底盘重测。
下一节把能做的事关进安全与伦理的栅栏:分级、知情、生殖系红线,以及数据怎样把人识别出来。