5.2 金属酶与金属蛋白
5.2 金属酶与金属蛋白
本节摘要:金属酶把金属离子的配位催化做到分子极限。本节从碳酸酐酶每秒十万次的催化讲起,拆解血红蛋白的协同载氧与波尔效应,看锌酶的路易斯酸催化与锌指结构模体,最后见识固氮酶在常温常压下合成氨的工业级难题。
一、每秒十万次的水合反应
二氧化碳进血液后要变成碳酸氢根才能被运输,不催化时这个水合反应慢到以秒计;碳酸酐酶把它催化到每秒十万次以上,加速百万倍。活性中心只是一颗锌:三个组氨酸氮撑住锌,第四个配位留给水。锌把结合水的氢拉向解离(相当于把水的酸度提高了约七个数量级),生成锌结合的氢氧根;氢氧根作为亲核试剂进攻二氧化碳生成碳酸氢根,产物离去、新水进入,循环重启。锌不动声色地当了一台「水质子泵」,d10 闭壳层让它不参与任何副反应,专司极化——这正是上一节说的「锌的分工」。
这个机理是金属酶催化的通用范式:金属结合并极化底物(或活化水等共底物),把原本高能垒的路径改写成低能垒的配位-解离循环。对比化工里的均相催化(3.3 节的威尔金森循环),逻辑完全同构,只是酶用蛋白链把活性中心的几何与微环境预组织到了完美。
二、血红蛋白:四个亚基的协同装卸
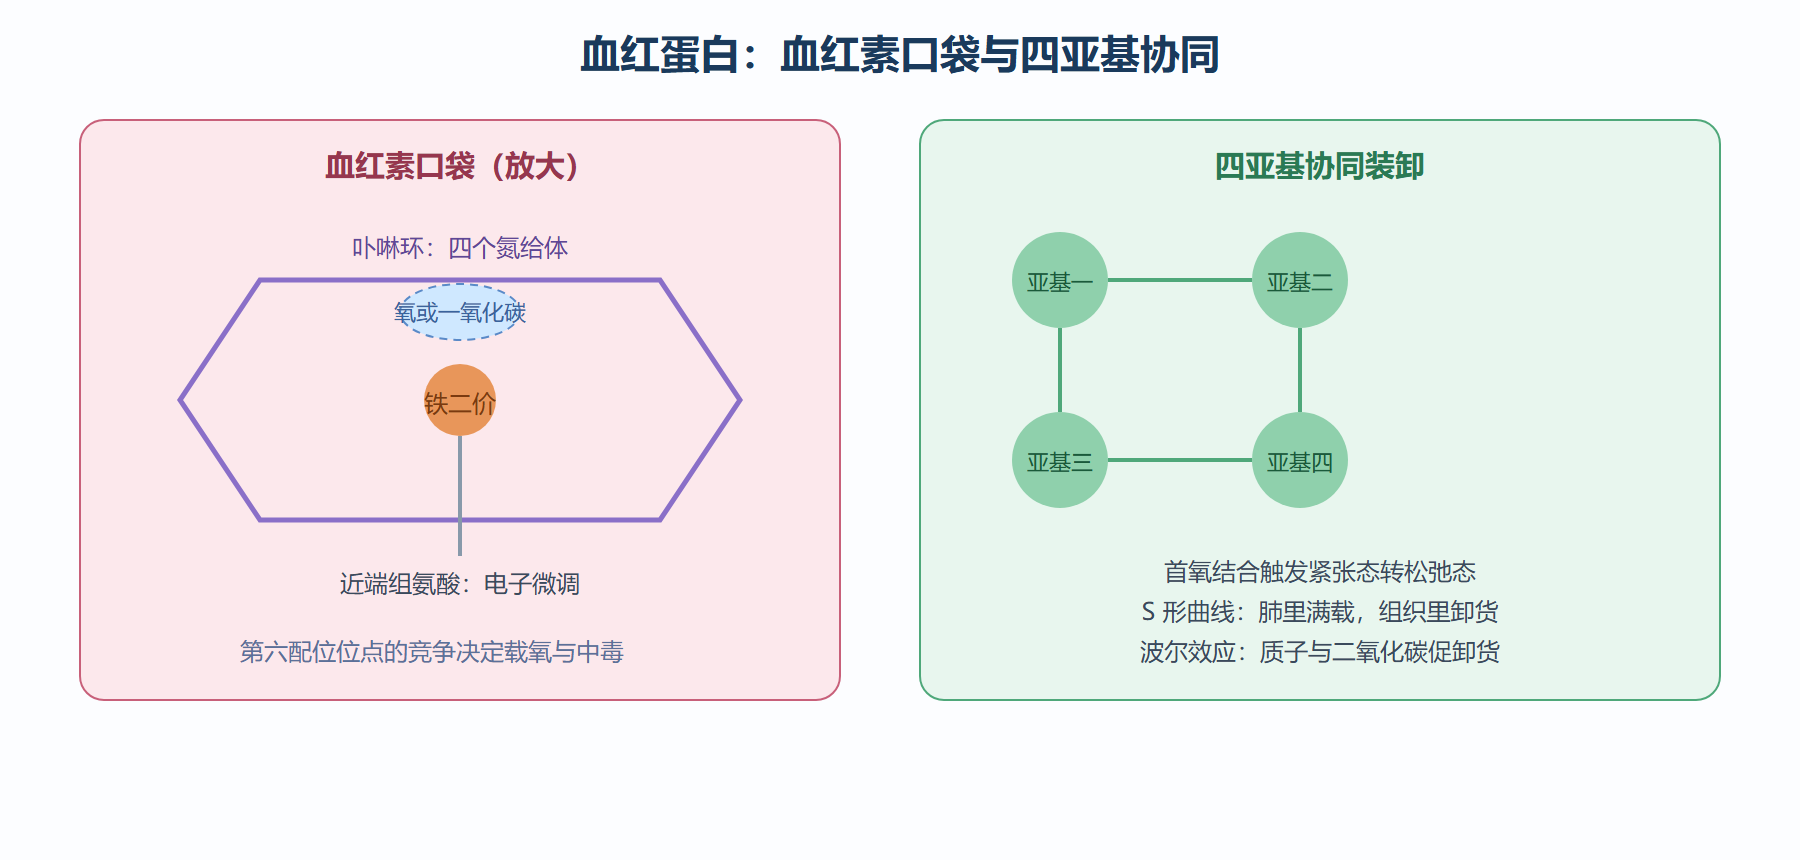
肌红蛋白是单亚基的储氧蛋白,血红素铁由卟啉环的四个氮加下方一个组氨酸氮配位,第六个位置留给氧。孤立的铁二价遇上氧容易被氧化成三价而失活(血红素模型化合物的老难题),蛋白链用近端组氨酸的给电子调控与远端残基的氢键稳定,让氧合可逆进行——蛋白不是被动容器,是电子微调器。
血红蛋白是四亚基版本,多出一层「协同开关」。第一个氧结合使铁移入卟啉平面约 0.06 纳米,拉动组氨酸与螺旋段,触发亚基从紧张态到松弛态的构象转变;越多的亚基处于松弛态,剩下的位点对氧亲和越高——于是结合曲线呈 S 形而非双曲线,在肺(氧分压高)快速满载,在组织(氧分压低)果断卸货。波尔效应再加一层调控:组织处二氧化碳与质子浓度高,质子化使蛋白偏向紧张态、促进放氧;肺处则反向。一支四亚基的蛋白车队,靠别构协同跑出了单亚基做不到的装卸效率。
一氧化碳中毒(上一节)之外,还有一处与无机原理直接挂钩:氰化物的毒性来自对细胞色素氧化酶里血红素铁的结合,阻断电子传递链末端的氧还原,细胞「窒息」而死。解毒用亚硝酸盐把部分血红蛋白铁氧化为三价,三价铁虽然不能载氧但能结合氰离子,形成氰化高铁血红蛋白把氰拖出酶位点——用配位平衡硬抢,化学原理与给氧解碳氧血红蛋白如出一辙。
血红蛋白活性中心与协同载氧
三、锌的两份工:催化与结构
碳酸酐酶之外,羧肽酶、碱性磷酸酶都是「催化锌」家族——锌全部干的是「极化底物」的路易斯酸活。锌的另一份工作是「结构锌」:锌指模体里,锌由两个半胱氨酸硫加两个组氨酸氮四面体配位,像一枚图钉把一段β折叠与一段螺旋钉在一起,钉出的指状突起正好插进 DNA 大沟识别碱基序列。转录因子中数百个锌指是基因调控的「读码器」。两类锌共用同一颗离子,差别全在配位环境——又一次印证配体决定功能的主题。
值得对比的是:锌酶催化的水解反应如果换成铁或铜,很可能会引发自由基副反应;蛋白选锌,选的就是它的「化学无聊」。而需要电子传递的场合(细胞色素、铁硫蛋白)交给铁,需要小分子活化的场合(细胞色素氧化酶的铜、过氧化氢酶的血红素铁)交给铜铁——金属酶的分布图,就是上一节选材三逻辑的分子级展开。
四、固氮酶:常温常压的合成氨工厂
工业合成氨要四百到五百度、两三百个大气压加铁催化剂( Haber 法,消耗全球约百分之一到二的能源);固氮酶在豆科植物根瘤里常温常压完成同一件事。活性中心是铁钼辅因子——一个钼加七个铁加九个硫组成的原子簇,结构直到上世纪九十年代才解析清楚。它一次接一个质子一个电子,六步八电子把氮气还原成两分子氨,每轮循环消耗十六个三磷酸腺苷,效率并不高(每秒几轮),但胜在温和条件。
化学家模仿固氮酶六十余年,常温常压的分子催化剂至今效率远不及天然酶——难点在于氮氮三键的 945 千焦每摩尔(2.2 节的数据)加单电子逐步还原的多步管理。这场「仿生竞赛」是无机化学与生物无机化学共同的前沿,也反过来说明:蛋白链对金属中心的微环境调控,目前仍领先最好的分子设计。
⚠️ 常见坑:把金属酶活性笼统归功于「金属催化」。金属是必要的,但第一配位层之外的残基(远端组氨酸、质子中继网、疏水口袋)承担了相当部分的催化贡献;人工脱去蛋白的金属-卟啉模型活性低几个数量级,就是直接证据。
💡 关键直觉:金属酶 = 金属的配位催化 + 蛋白的预组织与微环境。理解酶要先问三个问题:金属是谁、给体是什么、第二配位层做了什么。三问之后,机理往往自现。
本节要点回顾
- 锌是「水质子泵」:碳酸酐酶百万倍加速来自锌对水的极化活化,d10 闭壳层保证零副反应。
- 血红蛋白协同载氧:首氧触发的构象切换造就 S 形曲线与波尔效应,装卸效率来自别构。
- 氧与一氧化碳、氰化物之争全是第六位点的配位竞争,解毒策略是平衡反攻。
- 结构锌的锌指用硫氮四面体当图钉,读码 DNA 序列——催化与结构共用一种金属。
- 固氮酶是常温常压的合成氨厂,六十余年仿生未竟,反证蛋白微环境的不可替代。
最后一节看工程师接过这些原理造出了什么:抗癌药、锂电池、发光二极管与汽车催化剂。
金属酶:金属离子如何催化
金属酶把金属离子的配位化学与酶的催化活性结合起来:
金属在酶中的三种角色: 路易斯酸催化:Zn2+ 稳定负电荷中间体(碳酸酐酶) 氧化还原中心:Fe、Cu 传递电子(细胞色素氧化酶) 底物结合与活化:金属-底物配位(固氮酶 MoFe 簇) 典型金属酶: 碳酸酐酶(Zn):CO2 + H2O ⇌ HCO3- + H+,催化速度每秒百万次 细胞色素 c 氧化酶(Fe/Cu):呼吸链末端电子传递 固氮酶(Mo/Fe/S 簇):N2 → NH3(工业哈伯法的生物版)
| 金属酶 | 金属中心 | 反应 |
|---|---|---|
| 碳酸酐酶 | Zn | 二氧化碳水合 |
| 过氧化氢酶 | Fe | 分解 H2O2 |
| 固氮酶 | MoFeS | 固氮 |
| 超氧化物歧化酶 | Cu/Zn | 清除自由基 |
金属酶的启示: 模拟固氮酶 → 温和条件固氮(能源与农业革命) 设计金属配合物药物 → 铂类抗癌药(顺铂)
金属酶研究把无机化学推向生命科学的中心,是"化学-生物"交叉的前沿。