1.2 神经元的分子组成与信号转导
1.2 神经元的分子组成与信号转导
本节摘要:神经元的每一个功能——从静息电位的维持到突触可塑性的形成——都由特定的蛋白质分子执行。离子通道是膜电位变化的物理基础,受体蛋白将化学信号转化为细胞内响应,第二信使级联则将膜表面的信号放大并传递到细胞核,最终改变基因表达。本节以演化视角串联这些分子机器的工作原理。
学习目标
阅读完本节,你应当能够:
- 解释电压门控离子通道与配体门控离子通道的工作机制差异
- 描述G蛋白偶联受体(GPCR)激活后细胞内信号级联的基本流程
- 区分离子型受体与代谢型受体的信号特征和生理意义
- 理解为什么细胞内信号转导需要"级联放大"机制
从膜蛋白谈起:神经元的分子工具箱
如果把神经元比作一台计算机,那么它的"硬件"就是镶嵌在细胞膜上的各种蛋白质。这些膜蛋白大致可以分为三大类:离子通道(允许特定离子跨膜流动)、离子泵(逆浓度梯度主动运输离子)、和受体(识别特定信号分子并启动细胞内响应)。它们共同构成了神经元响应环境信号、处理信息和调整自身状态的分子基础。
离子通道:膜电位的调控开关
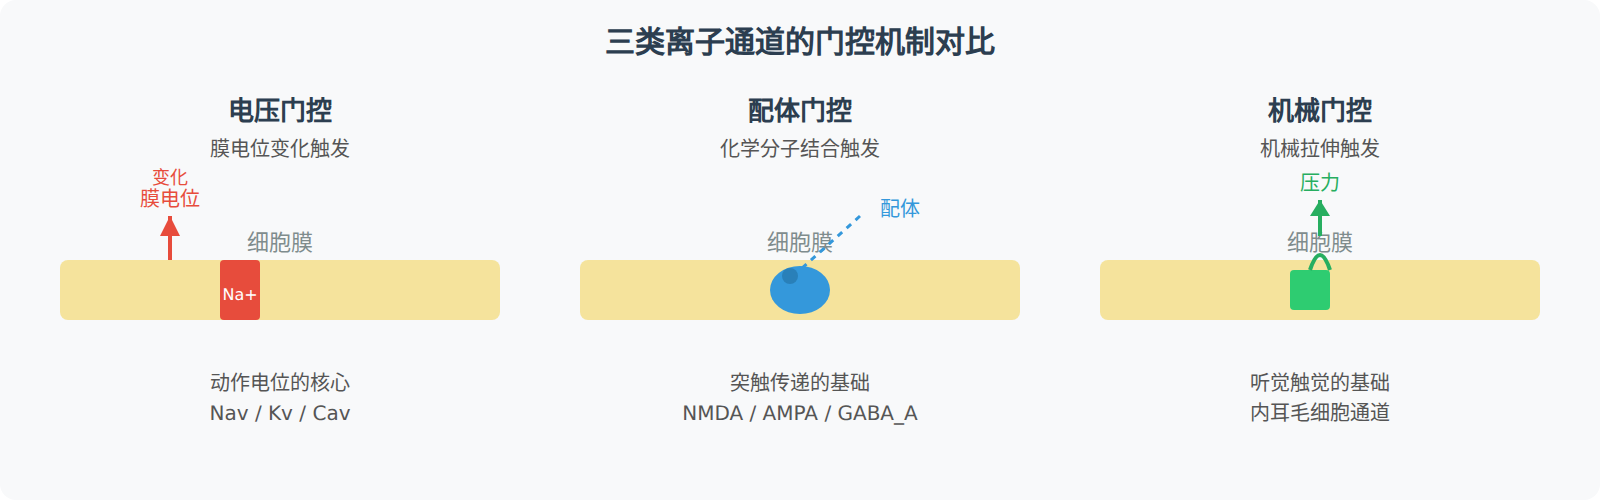
离子通道是贯穿细胞膜的蛋白质孔道,在特定条件下开放或关闭,允许特定离子沿浓度梯度被动流过。根据门控机制,离子通道可以分为以下几类:
电压门控离子通道对膜电位变化敏感。当膜电位达到特定阈值时,通道的构象发生改变而打开。电压门控钠离子通道(Nav通道)是动作电位去极化相的核心执行者——它在膜电位从-70mV去极化到约-55mV时快速打开,允许钠离子大量涌入细胞内。电压门控钾离子通道(Kv通道)在动作电位复极化阶段打开,让钾离子外流恢复膜电位。电压门控钙离子通道(Cav通道)则在突触前膜去极化时打开,让钙离子内流触发神经递质释放。
配体门控离子通道由特定化学分子(配体)的结合来控制开关。NMDA受体和AMPA受体是突触后膜上最重要的兴奋性配体门控通道——它们结合谷氨酸后开放,允许阳离子流入突触后神经元。GABA_A受体则结合GABA后开放氯离子通道,使膜电位超极化,产生抑制效应。
机械门控离子通道对机械拉伸或压力敏感。内耳毛细胞的机械门控通道能将声波引起的纤毛偏转直接转化为电信号——这是从物理振动到神经编码的最高效转换器之一。
离子泵:主动维持的电化学梯度
离子通道是"被动"的——离子顺着浓度梯度流动。但要维持这种梯度,需要离子泵"主动"做功。最关键的离子泵是钠钾泵(Na+/K+-ATPase),它消耗一个ATP分子的能量,将3个钠离子泵出细胞、2个钾离子泵入细胞。这个看起来"亏本"的交易实际上极其精妙:它维持了细胞内高钾低钠的基本状态,为动作电位的快速去极化储备了驱动力。
另一个重要的泵是钙泵(PMCA和SERCA),它们将钙离子从细胞质中清除(分别泵出到细胞外或泵入内质网),维持静息状态下极低的胞内钙浓度(约100nM,是细胞外的万分之一)。这种巨大的浓度差使得少量钙离子进入突触前末梢就足以触发神经递质释放。
细胞内信号转导:从膜到核的级联放大
受体蛋白的两种工作模式
当神经递质或激素与受体结合后,信号如何传递到细胞内部?这取决于受体的类型:
离子型受体(ionotropic receptor)本身就是离子通道。配体结合后通道直接打开,离子流动在微秒级内改变膜电位。这种方式快但"简单"——信号仅限于膜电位变化,没有放大效应。
代谢型受体(metabotropic receptor)不直接操控离子通道。它们通过激活细胞内的G蛋白、触发第二信使级联来间接影响离子通道活性和基因表达。这种方式慢(毫秒到秒级),但有巨大的放大效应:一个受体被激活后可以产生数千个第二信使分子,每个第二信使又可以影响多个下游靶蛋白。这是"慢而持久"的信号模式。
G蛋白偶联受体(GPCR)信号级联
GPCR是人体中最大的受体蛋白家族,约有800个成员,神经系统中大量关键受体(毒蕈碱型乙酰胆碱受体、多巴胺受体、代谢型谷氨酸受体等)都属于这一类。
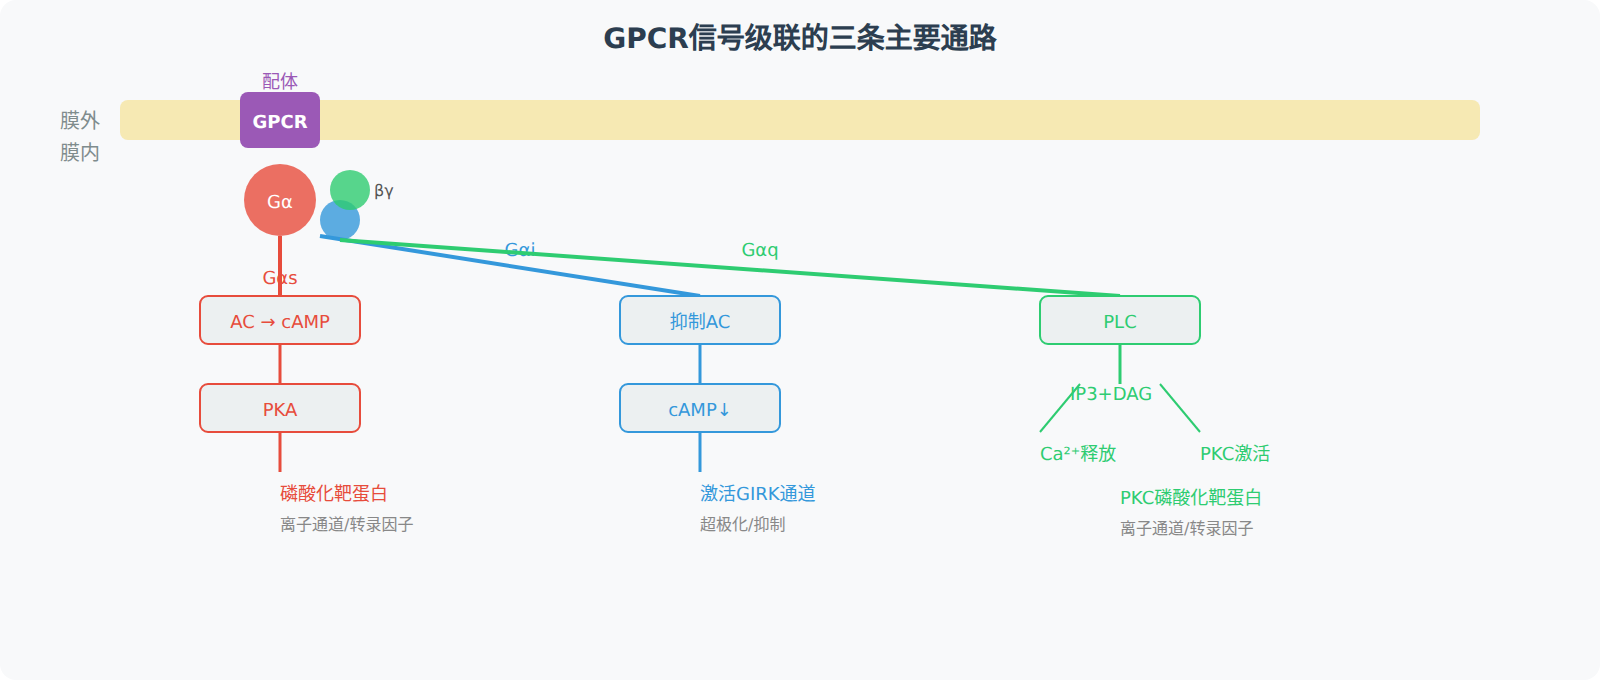
GPCR激活的基本流程如下:当配体(如多巴胺)结合到GPCR的胞外域后,受体构象发生改变,激活膜内侧的G蛋白三聚体(由α、β、γ三个亚基组成)。激活的Gα亚基从三聚体上解离,分别启动不同的下游通路:
- Gαs通路:激活腺苷酸环化酶(AC),将ATP转化为cAMP。cAMP作为第二信使激活蛋白激酶A(PKA),PKA磷酸化多种靶蛋白(包括离子通道和转录因子),改变神经元的兴奋性和基因表达。
- Gαi/o通路:抑制腺苷酸环化酶,降低cAMP水平,或直接激活钾通道(GIRK通道),使神经元超极化。这是GABA_B受体和多巴胺D2受体的主要工作方式。
- Gαq通路:激活磷脂酶C(PLC),将膜脂质PIP2水解为IP3和DAG两个第二信使。IP3动员内质网释放钙离子,DAG激活蛋白激酶C(PKC)。这条通路在代谢型谷氨酸受体(mGluR1/5)和毒蕈碱型受体中被广泛使用。
第二信使的放大效应
为什么需要这么复杂的级联?关键在于信号放大。一个GPCR被配体激活后,其激活的Gα蛋白可以在分解一个GTP分子的时间内反复激活下游效应酶。一个被激活的腺苷酸环化酶可以在一秒钟内产生数千个cAMP分子。每个cAMP分子又能激活一个PKA分子,每个PKA可以磷酸化多个靶蛋白。
这意味着一个神经递质分子与一个受体结合,最终可以影响成千上万个蛋白质的状态——这是一种极其高效的信息传递方式。代价是速度较慢(整个过程需要数十到数百毫秒),以及中间步骤多、调控点多的复杂性。
💡 关键直觉:离子型受体像电报——快而简洁,一个信号产生一个确定的效应。代谢型受体像报纸——速度慢但影响深远,一条消息可以传达到千家万户并引发后续讨论(基因表达的改变)。
细胞骨架与轴浆运输
除了信号转导蛋白,神经元还依赖一套精密的细胞骨架系统来维持形态和运输物质。
微管(microtubule)沿轴突纵行排列,充当货物运输的"轨道"。驱动蛋白(kinesin)负责从胞体向轴突末梢的顺向运输(运送蛋白质、线粒体、突触囊泡等),动力蛋白(dynein)负责从末梢回胞体的逆向运输(运送废弃物质、信号分子等)。一根轴突可能长达一米,但所有蛋白质都在胞体合成——没有这套高效的运输系统,轴突末梢就会"断粮"。
微丝(microfilament)主要分布在树突棘和突触部位,与突触可塑性密切相关。肌动蛋白的聚合与解聚可以改变树突棘的形态和大小,从而影响突触强度。
一节小结
- 离子通道有三类门控机制:电压门控(膜电位)、配体门控(化学分子)、机械门控(物理力),各自服务于不同的生理需求
- 离子泵维持电化学梯度:钠钾泵和钙泵不断做功,为通道介导的被动离子流储备驱动力
- GPCR通过三通路影响神经元状态:Gαs(兴奋)、Gαi(抑制)、Gαq(复杂调控),均通过第二信使级联实现信号放大
- 离子型vs代谢型受体是速度与深度的权衡:前者微秒级响应、无放大;后者毫秒到秒级响应、有巨大放大效应
- 细胞骨架是运输和形态的基建:微管轨道上的驱动蛋白确保长轴突的物质供应
下一章我们将从细胞层面上升到解剖学层面,看这些细胞如何组织成中枢和周围神经系统。
深入理解:离子通道的疾病关联
离子通道的基因突变与多种人类疾病直接相关。钠通道基因SCN1A的功能获得性突变导致Dravet综合征——一种严重的婴幼儿癫痫。钾通道基因KCNQ2/KCNQ3的突变导致良性家族性新生儿惊厥。钙通道基因CACNA1A的突变导致家族性偏瘫型偏头痛和发作性共济失调。
这些疾病关联揭示了一个重要原理:同样的分子机器在不同类型的神经元中执行不同的功能,因此同一种突变在不同脑区会产生不同的症状。钠通道突变在抑制性神经元中导致过度兴奋(癫痫),在感觉神经元中可能导致疼痛信号异常(阵发性疼痛)。理解突变如何改变通道的门控特性,是开发精准治疗的基础。
临床视角:靶向离子通道的药物
许多临床药物直接作用于离子通道:局部麻醉剂(利多卡因)阻断电压门控钠通道,阻止痛觉信号传导;抗癫痫药(苯妥英、卡马西平)通过使用依赖性阻断钠通道来抑制神经元的过度同步放电;钙通道阻滞剂(维拉帕米)用于心血管疾病但也在某些神经疾病中有应用前景。这些药物的共同特点是作用于通道的特定状态(开放态或失活态),而非简单地"堵死"通道——理解这种状态依赖性对于理解药物的作用机制和副作用至关重要。