4.2 听觉、平衡与躯体感觉
4.2 听觉、平衡与躯体感觉
本节摘要:内耳毛细胞将声波引起的机械振动和头部运动引起的惯性力转化为电信号,分别构成听觉和前庭平衡系统的基础。躯体感觉系统则通过多种特化的感受器将触觉、温度觉、痛觉和本体感觉分通道传递到脊髓和大脑。本节展示不同感觉通道如何共享相似的转导原理(机械门控通道)但服务于完全不同的功能目标。
学习目标
阅读完本节,你应当能够:
- 描述耳蜗的音位拓扑映射(tonotopy)原理
- 解释前庭系统检测线性加速和旋转加速的机制
- 区分快速适应和慢速适应触觉感受器的功能差异
- 阐述痛觉信号在上行通路中的调制机制
听觉系统:从振动到音调
耳蜗:频率的空间编码
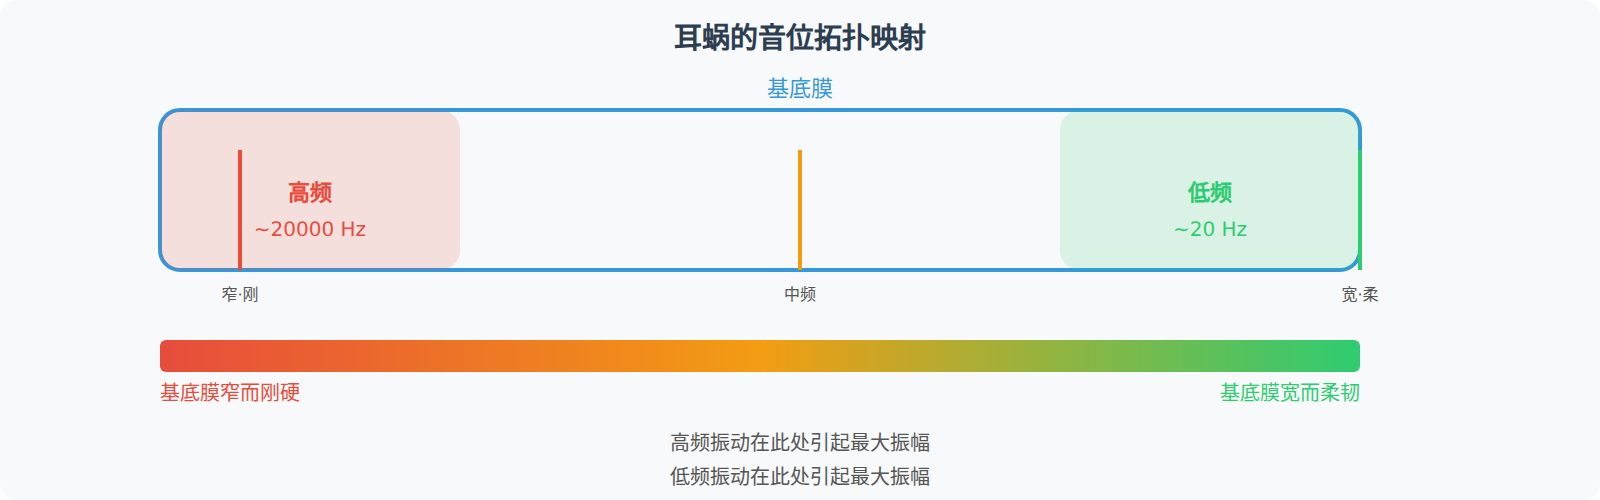
声音进入外耳道后引起鼓膜振动,振动经听小骨链(锤骨、砧骨、镫骨)放大后传递到卵圆窗,引发耳蜗内淋巴液的波动。这个波动使基底膜产生行波——基底膜的宽度从底端到顶端逐渐增加,刚度从底端到顶端逐渐减小。
结果是:高频声音在基底膜底端产生最大振幅,低频声音在顶端产生最大振幅。基底膜不同位置的毛细胞因此被不同频率的声音选择性激活——这就是音位拓扑映射(tonotopy)。听觉系统将频率信息转化为空间位置信息,这是非常优雅的编码策略。
毛细胞的机电转导
基底膜上的毛细胞(内毛细胞和外毛细胞)顶端有数十根静纤毛,排列成阶梯状。当基底膜振动使纤毛向 tallest direction 偏转时,纤毛顶端的机械门控离子通道打开,钾离子和钙离子进入细胞,引起去极化。偏转方向相反时,通道关闭,细胞超极化。
外毛细胞具有独特的能动性——它们的细胞体可以根据电信号主动改变长度(快闪运动),反向放大基底膜的振动。这种"主动放大"机制极大地提高了听觉灵敏度和频率选择性。外毛细胞的损伤是噪声性耳聋的主要原因。
内毛细胞是主要的听觉传感能手,它们将机械信号转化为神经信号,通过听神经纤维投射到脑干的耳蜗核。
听觉上行通路
从耳蜗核开始,听觉信息沿多条平行通路向上传递:耳蜗核→上橄榄核(负责声音定位的双耳比较)→下丘→内侧膝状体→初级听觉皮层(颞上回的Heschl回)。每级传递都保持音位拓扑映射——听觉皮层也按频率组织。
声源定位利用两个线索:高频声主要依靠两耳间的强度差(头影效应),低频声主要依靠两耳间的时间差(相位差)。上橄榄核中的神经元专门检测这些差异,实现精确的水平声源定位。
前庭系统:平衡的感知
内耳中除了耳蜗,还有三个半规管(检测旋转加速)和两个耳石器官(椭圆囊和球囊,检测线性加速和重力)。
半规管内充满内淋巴液,当头部旋转时,液体的惯性使其相对于管道流动,推动半规管壶腹嵴上的毛细胞纤毛偏转。三个半规管分别位于三个相互垂直的平面上(水平、前垂直、后垂直),覆盖了三维空间中的旋转方向。
耳石器官含有碳酸钙结晶(耳石),它们在重力或线性加速作用下对毛细胞纤毛施加剪切力,使纤毛偏转。大脑通过比较来自两侧前庭器官的信号,精确判断头部的位置和运动状态。
躯体感觉:多通道的信息网络
感受器分类
躯体感觉系统通过多种特化感受器检测机械刺激(触觉、压力、振动)、温度变化和伤害性刺激(痛觉)。
触觉感受器按适应速度分为两类:快速适应感受器(如Meissner小体和Pacinian小体)对刺激的变化敏感,适合检测振动和纹理变化;慢速适应感受器(如Merkel细胞和Ruffini末梢)对持续压力敏感,适合检测物体形状和手指位置。
上行通路
躯体感觉信息经后根进入脊髓后角,第二级神经元交叉到对侧后沿两条主要通路上行:
- 背柱-内侧丘系通路(DCML):传递精细触觉、振动觉和本体感觉。这条通路保持精细的空间分辨力,最终投射到初级体感皮层(中央后回)。
- 脊髓丘脑束(STT):传递痛觉和温度觉。这条通路的空间分辨率较低,但速度快,适合传递伤害信号的紧急警告。
痛觉调制
痛觉信号在上传过程中可以被调制。脊髓后角的"门控理论"认为:粗纤维(触觉)的传入可以"关闭"痛觉信号向脑的传递(激活抑制性中间神经元),而细纤维(痛觉)的传入则"打开"这个门。这解释了为什么揉搓受伤部位可以缓解疼痛。
脑干的中脑导水管周围灰质(PAG)可以向下调控脊髓的痛觉传递,激活PAG(如通过释放内啡肽)可以产生强大的镇痛效果。这也是安慰剂镇痛和应激状态下痛觉降低的神经机制。
⚠️ 痛觉是有用的:先天性无痛症患者由于无法感知伤害,经常在不知情的情况下严重受伤。痛觉系统的存在不是为了折磨我们,而是为了保护我们。
温故知新
- 耳蜗将频率编码为空间位置:基底膜的宽度梯度使不同频率的声音激活不同位置的毛细胞
- 声源定位依赖双耳差异:强度差检测高频,时间差检测低频,上橄榄核负责比较
- 前庭系统覆盖三维运动检测:三个半规管检测旋转,两个耳石器官检测重力和线性加速
- 躯体感觉分多通道上传:DCML通路传递精细触觉,STT通路传递痛温觉
- 痛觉可被门控机制调制:触觉输入和脑干下行通路都可以抑制痛觉信号的传递
下一章我们将看运动系统如何利用这些感觉输入来规划和执行动作。
深入理解:听觉皮层的层级处理
听觉皮层的处理并不止步于频率的拓扑映射。从初级听觉皮层(A1区)开始,信息流向两个方向:沿腹侧通路到达颞上回的更前方区域,处理越来越复杂的声学特征(音素、词汇、句子);沿背侧通路到达顶叶,处理声音的空间位置信息。这种腹侧-背侧双通路的组织方式与视觉系统的"是什么"与"在哪里"分离高度相似。
语言理解是听觉系统最复杂的功能之一。从声波的基本频率特征到音素的识别(声学-音素映射),再到词汇的识别和句子的理解——每一步都涉及皮层层级的信息整合。Wernicke失语症患者的语言理解障碍,揭示了这个层级处理链条上特定环节的受损如何导致选择性功能缺陷。
深入理解:疼痛的主观性
痛觉有一个独特的特征:同一个伤害性刺激在不同情境下可以产生截然不同的主观感受。战场上的士兵在肾上腺素大量分泌的情况下可能对严重伤口几乎不觉疼痛;而慢性疼痛患者可能在没有明显组织损伤的情况下经历持续的剧烈疼痛。这种主观性的神经基础在于:疼痛信号在上传过程中受到多个调节系统(脊髓门控、脑干PAG、前额叶认知评价)的调控。疼痛不单纯是伤害感受器的信号传递,而是一个由多层级调节网络参与的主观体验构建过程。