5.2 皮层运动规划与基底核小脑
5.2 皮层运动规划与基底核小脑
本节摘要:随意运动的执行需要三个紧密协作的系统:运动皮层负责将运动意图转化为具体的肌肉激活模式,基底核负责在多个可能的动作方案中选择最合适的一个并抑制其余方案,小脑负责比较运动指令与实际运动结果之间的误差并进行实时修正。三者中任何一个的功能障碍都会导致特定的运动障碍。
学习目标
阅读完本节,你应当能够:
- 描述运动皮层三个区域的层级关系(M1、PMA、SMA)
- 解释基底核的直接通路和间接通路如何实现动作选择
- 阐述小脑的误差修正机制及其在运动学习中的作用
- 将帕金森病和小脑损伤的症状与各自的神经机制对应
运动皮层:从意图到指令
三个运动区的分工
初级运动皮层(M1,位于中央前回)的运动神经元直接通过皮质脊髓束投射到脊髓前角运动神经元和脑干运动核。M1的神经元按身体部位有序排列(运动侏儒图),对身体各部有精确的"一对一"映射。
运动前区(PMA,位于M1前方)负责根据外部感官信息("看到目标在哪里")来规划运动,它将感觉信息转化为运动程序。
辅助运动区(SMA,位于大脑内侧面)负责基于内部记忆和意图的运动规划("我打算做这个动作"),它在序列性运动(如弹钢琴、打字)中特别重要。
皮质脊髓束
M1等区域的运动指令通过皮质脊髓束(又称锥体束)下行。约85%的纤维在延髓锥体交叉到对侧,控制身体对侧的肌肉——这就是为什么一侧大脑损伤导致对侧肢体瘫痪。
皮质脊髓束的纤维分为两类:直接(单突触)通路主要投射到控制手指等精细运动肌肉的运动神经元(灵长类特有),间接通路通过脊髓中间神经元控制躯干和近端关节肌肉。
基底核:动作的选择器
基底核的解剖环路
基底核由几个深埋在大脑半球深部的灰质核团组成:纹状体(尾状核+壳核,输入端)、苍白球(内段和外段,输出端)、黑质(致密部和网状部)和底丘脑核。
基底核的核心功能不是"发起"运动,而是选择动作并抑制不需要的动作。它的基本逻辑是:在大脑皮层产生的大量可能动作方案中,选择最合适的一个放行,同时抑制其余的竞争方案。
直接通路与间接通路
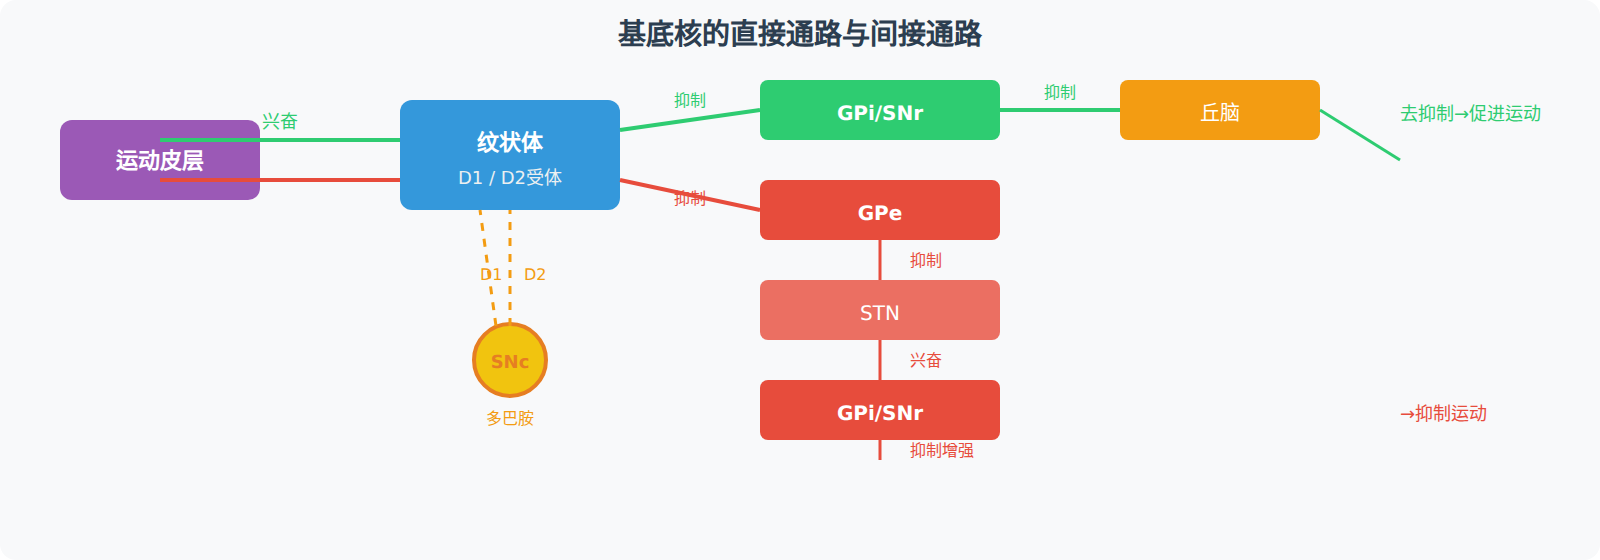
直接通路:皮层→纹状体→苍白球内段→丘脑→皮层。这条通路的正常效应是促进(去抑制)选定的运动方案。纹状体中的多巴胺D1受体被激活后,增强直接通路,促进运动。
间接通路:皮层→纹状体→苍白球外段→底丘脑核→苍白球内段→丘脑→皮层。这条通路的正常效应是抑制不需要的运动方案。纹状体中的多巴胺D2受体被激活后,抑制间接通路,减少运动抑制。
两条通路的平衡确保了运动的精确选择。当多巴胺能神经元(来自黑质致密部)退变时(如帕金森病),直接通路减弱、间接通路相对增强,结果是运动启动困难(运动不能)、静止性震颤和肌僵直。
小脑:运动的误差修正器
小脑的基本功能
小脑虽然只占脑体积的10%左右,却包含了超过一半的神经元。它接收来自运动皮层的"运动指令副本"(通过皮质-脑桥-小脑通路)以及来自外周的感觉反馈(通过脊髓-下橄榄核-小脑通路),将两者进行比较。
如果实际运动结果与预期运动指令之间存在差异(误差信号),小脑就通过齿状核向运动皮层发送修正信号,调整下一次运动的参数。这种误差驱动的学习机制使小脑成为运动学习(如学骑自行车、学打网球)的核心结构。
浦肯野细胞
小脑皮层的浦肯野细胞(Purkinje cell)是已知最大的神经元之一,它们的树突接收来自平行纤维和攀援纤维的两种截然不同的输入:
- 平行纤维(颗粒细胞的轴突):传递一般性的感觉和运动信息,单个平行纤维对浦肯野细胞的影响很弱
- 攀援纤维(来自下橄榄核):传递误差信号,单个攀援纤维就能强烈激活浦肯野细胞
浦肯野细胞通过GABA抑制小脑深核中的神经元,从而精细调节小脑的输出信号。这种"兴奋-抑制-兴奋"的复杂环路使小脑能够实现极其精确的时序控制。
小脑损伤的表现
小脑损伤不导致瘫痪(运动力量不变),但导致运动不协调(共济失调):动作幅度过大(辨距不良)、运动轨迹不规则、眼球震颤、平衡障碍。这完美符合小脑的功能定位——它不启动运动,而是修饰运动的精确性和协调性。
💡 关键直觉:基底核和小脑都不直接控制肌肉。基底核是一个"动作选择器"(从多个候选方案中选一个),小脑是一个"误差修正器"(比较预期和实际结果并调整)。只有运动皮层直接控制肌肉——但它的输出受到基底核和小脑的强烈调控。
一节小结
- 运动皮层按三个层级组织:SMA(基于意图)、PMA(基于外部信息)、M1(直接输出指令)
- 基底核通过直接和间接通路实现动作选择:直接通路促进选定的运动,间接通路抑制不需要的运动
- 多巴胺是通路平衡的关键调节因子:D1增强直接通路,D2抑制间接通路;帕金森病是多巴胺缺乏导致直接通路减弱
- 小脑通过误差修正优化运动精度:比较运动指令副本与感觉反馈,调整后续运动参数
- 基底核损伤→运动不能/震颤,小脑损伤→共济失调:两者的症状差异反映了功能定位的差异
下一章我们将进入认知领域,看大脑如何将感觉输入转化为记忆、情绪、语言和决策。
深入理解:小脑的预测编码
近年来,一个更精细的小脑模型逐渐获得支持:小脑不是简单的"误差修正器",而是一个"预测编码器"(predictive coder)。它利用内部模型(internal model)预测运动指令应该产生什么样的感觉反馈,然后比较实际反馈与预测反馈之间的差异。
当预测准确时(实际反馈与预测匹配),小脑的输出减小——它不需要发送修正信号。只有当出现预测误差时,小脑才发送修正指令。同时,预测误差被用来更新内部模型,使下一次的预测更准确。这种"预测-比较-更新"的循环本质上就是机器学习中的预测编码框架。
这个模型解释了为什么小脑损伤的症状是运动不协调(内部模型不准确,产生错误的预测和修正),而不是运动无力(运动力量由运动皮层和脊髓产生,与小脑无关)。
临床视角:深部脑刺激的进化
DBS最初(1997年获FDA批准)仅用于帕金森病的震颤控制,但适应症正在快速扩展:原发性震颤(1997)、肌张力障碍(2003)、强迫症(2009)、药物难治性癫痫(近年获批)。每个新的适应症都需要找到合适的靶点和刺激参数——这本身就是一个理解脑回路的过程。DBS因此不仅是治疗工具,也是研究工具:通过刺激特定脑区并观察行为变化,我们可以反过来验证脑回路的假说。