6.1 学习与记忆
6.1 学习与记忆
本节摘要:记忆是大脑对经验的编码、存储和提取过程。按照信息保持的时间和神经机制,记忆可以分为工作记忆、短时记忆和长时记忆三大类,长时记忆又分为陈述性记忆(依赖海马和内侧颞叶)和非陈述性记忆(依赖基底核、小脑和新皮层)。海马通过突触可塑性实现新记忆的快速形成,而记忆的长期巩固则涉及蛋白质合成和新突触形成。
学习目标
阅读完本节,你应当能够:
- 区分工作记忆、陈述性记忆和非陈述性记忆的类型与脑区
- 描述海马在空间记忆和情境记忆中的特殊作用
- 解释记忆巩固从海马到新皮层的逐步转移过程
- 分析遗忘的多种机制(干扰、衰退、主动抑制)
记忆的分类框架
记忆不是单一的系统,而是一个多组件的架构,不同类型的记忆依赖不同的神经结构和机制。
工作记忆是大脑的"在线操作平台"——它在几秒到几十秒内保持和操作少量信息。前额叶皮层的神经元通过持续放电来维持工作记忆中的信息。这种持续放电依赖NMDA受体介导的反复激活和GABAergic中间神经元的精确调控。
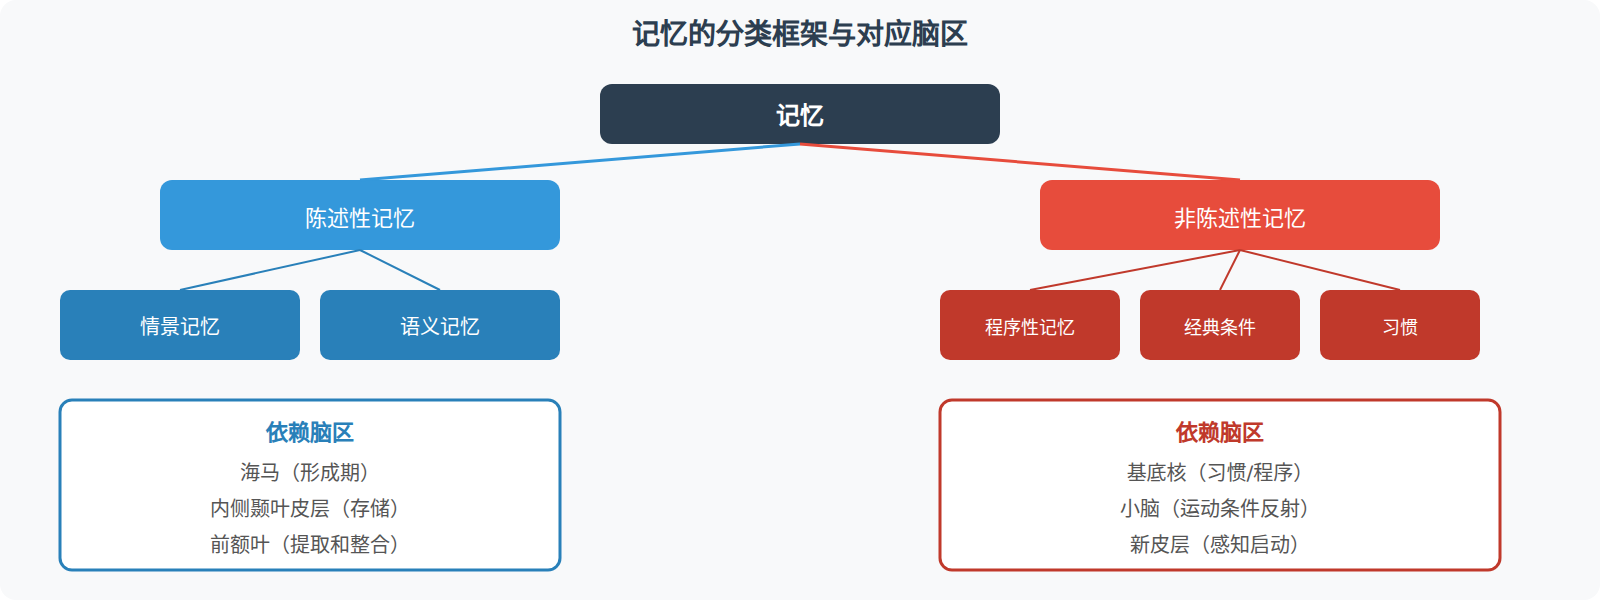
陈述性记忆(declarative memory)是可以用语言描述的记忆,包括情景记忆(个人经历,如"去年夏天我去过巴黎")和语义记忆(事实知识,如"巴黎是法国的首都")。陈述性记忆的形成高度依赖海马和内侧颞叶结构。
非陈述性记忆(nondeclarative memory)不能用语言直接描述,包括程序性记忆(运动技能,如骑自行车)、经典条件反射(如巴甫洛夫的狗听到铃声就分泌唾液)、启动效应和习惯形成。这类记忆不依赖海马,而是依赖基底核(习惯)、小脑(运动技能的经典条件反射)和新皮层(感知启动)。
海马:新记忆的形成中枢
海马的特殊地位
海马(hippocampus)是陈述性记忆形成的关键结构。这个发现来自一个经典的临床案例:患者H.M.(Henry Molaison)在1953年因严重癫痫接受了双侧内侧颞叶切除手术(包括海马)。术后,H.M.能够记住手术前的事情(旧记忆完好),但完全无法形成新的陈述性记忆——他可以记住一串数字几秒钟(工作记忆完好),可以学会新的运动技能(非陈述性记忆完好),但记不住几分钟前见过的人或做过的事。
这个案例清晰地揭示了海马在"将短期经验转化为长期陈述性记忆"中的不可替代角色。海马损伤不抹除旧记忆,而是阻断新记忆的形成。
海马的计算特性
海马CA3区的神经元通过密集的互连(recurrent collaterals)形成了一个自联想网络(autoassociative network),能够根据部分线索恢复完整的记忆模式。这就像看到一张脸的局部就能认出整张脸——这种模式补全能力是海马处理情景记忆的核心算法。
海马CA1区则作为"比较器",比较来自EC(entorhinal cortex)的直接输入和经CA3环路处理后的输入,检测新信息与已有记忆之间的差异。当出现完全新奇的输入时,CA1神经元表现出强烈的响应——这就是"新奇信号",驱动海马对新记忆的编码。
记忆巩固:从海马到皮层
新记忆最初在海马中形成,但在随后的数天到数周内逐渐转移到新皮层的分布式网络中存储(这个过程称为系统巩固)。睡眠期间的海马-皮层重放是巩固的关键机制:在慢波睡眠中,海马神经元按照白天学习时的顺序"重放"激活模式,同时与新皮层进行高频的同步交流,将记忆痕迹逐渐"写入"新皮层。
⚠️ 常见误区:认为记忆像电脑硬盘一样"存储在某个位置"。实际上,记忆是分布式编码在全脑范围内的——每个神经元参与多种记忆,每种记忆涉及大量神经元。记忆更像是一首歌的"曲调"(激活模式),而不是一本书的"印刷"(固定位置)。
遗忘的机制
遗忘不是记忆的"故障",而是大脑主动管理信息的重要功能。多种机制参与遗忘:
- 衰退:不使用的突触连接强度逐渐衰减(LTD的自然结果)
- 干扰:相似的旧记忆干扰新记忆的提取(前摄干扰)或新记忆覆盖旧记忆(倒摄干扰)
- 主动抑制:前额叶皮层可以主动抑制不相关记忆的提取,帮助聚焦当前任务
- 记忆重整:每次回忆都会改变记忆的神经表征,这既是更新也是潜在的错误来源(虚假记忆)
核心回顾
- 记忆是多组件系统:工作记忆(前额叶)、陈述性记忆(海马+皮层)、非陈述性记忆(基底核/小脑/皮层)
- 海马是陈述性记忆形成的中枢:损伤海马不删除旧记忆,但阻断新陈述性记忆的形成
- 记忆巩固是海马到皮层的逐步转移:睡眠中的重放机制是巩固的关键
- 遗忘是主动的信息管理过程:包括衰退、干扰和主动抑制等多种机制
- 记忆是分布式编码:不是"存储在某个位置",而是分布在全脑的激活模式中
下一节我们看大脑如何给记忆打上情绪标签、如何筛选注意力。
深入理解:记忆的重组现象
每次回忆都不仅仅是"读取"已存储的信息,而是重新构建记忆的过程。回忆时,提取的痕迹被暂时激活,然后与当前情境信息重新整合后再次存储——这个过程可能导致记忆的修改。心理学家称之为"记忆重组"(reconsolidation)。
重组在正常情况下是适应性的:它允许旧记忆被更新以反映新的情境信息。但在某些情况下,重组可能导致记忆的扭曲或虚假记忆的形成——法庭证词中的记忆错误、治疗中"植入"的虚假创伤记忆,都是重组过程被不当利用的例子。
Nader等人的经典实验证明:在记忆被重新激活后的短时间内(重组窗口),使用蛋白合成抑制剂(如anisomycin)可以阻断记忆的再存储,导致该记忆被永久擦除。这为创伤后应激障碍(PTSD)的治疗提供了新思路——在安全的治疗环境中重新激活创伤记忆,同时用药物或行为干预修改其情感效价,使创伤记忆不再引起强烈的情绪反应。
计算视角:记忆的分布式表征
单个海马神经元并不编码某个特定的记忆——每个神经元参与多个记忆,每个记忆涉及大量神经元。这种分布式编码类似于全息图:每块碎片都包含整体的部分信息,没有哪一块碎片存储了完整的图像。这就是为什么海马的部分损伤不会导致特定记忆的完全丧失,而是导致所有记忆质量的整体下降。