7.2 神经可塑性
7.2 神经可塑性
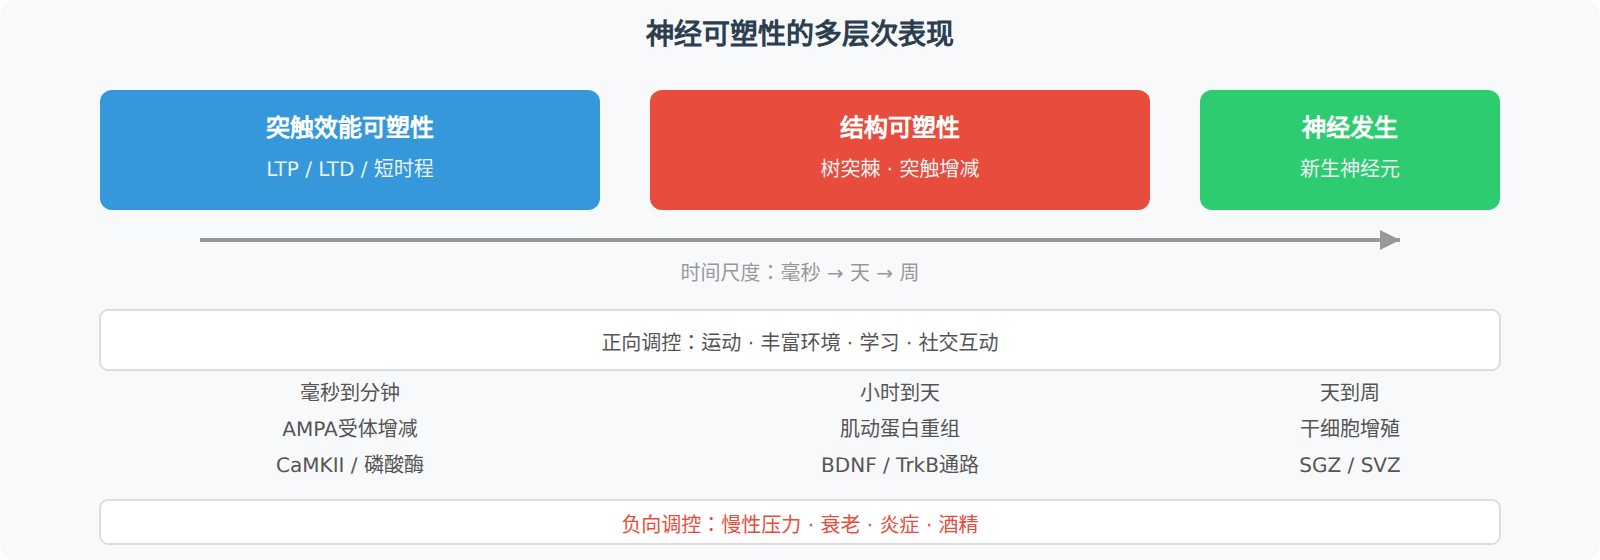
本节摘要:神经可塑性是大脑在整个生命过程中根据经验调整其结构和功能的能力。它可以在多个层面发生:突触水平的效能改变(LTP/LTD)、树突棘的形态变化、突触数量的增减、甚至新神经元的生成。这些不同层面的可塑性共同构成了学习、记忆、适应和恢复的生物学基础。
学习目标
阅读完本节,你应当能够:
- 区分功能可塑性和结构可塑性
- 阐述成人海马神经发生的过程及其功能意义
- 理解经验依赖可塑性的分子机制(BDNF信号通路)
- 分析可塑性在脑损伤恢复中的双重角色(适应性vs有害性)
突触可塑性:功能层面
突触可塑性是神经可塑性研究最深入的形式,包括我们在第3章讨论过的LTP和LTD。这里补充两个重要方面:
短时程可塑性(持续毫秒到分钟):包括突触易化(连续刺激使突触释放量增加)和突触压抑(高频刺激后释放量暂时减少)。这些短时变化不涉及蛋白质合成,主要源于突触前囊泡池的动态变化。它们在感觉适应和短时记忆中发挥作用。
稳态可塑性(homeostatic plasticity):神经元具有维持相对稳定活动水平的能力。如果一个突触被长期增强,神经元会增加整体抑制性输入来"降温";反之亦然。这种机制防止了突触可塑性导致的极端兴奋或沉默状态,维持回路的稳定性。
结构可塑性:形态层面
树突棘的可塑性
树突棘是突触后兴奋性连接的主要部位。学习经验可以直接改变树突棘的形态和数量:训练动物学习一项新运动技能后,相关运动皮层中的树突棘密度显著增加;反之,长期感觉剥夺导致树突棘减少。
树突棘的稳定性与其大小相关:大的蘑菇型树突棘通常更稳定(寿命可达数月),是长期记忆存储的候选位点;小的丝状伪足树突棘更不稳定(寿命仅数天),是探索性新连接的候选。
突触新生与消除
成年大脑中,新突触的形成和老突触的消除持续进行。新突触的形成涉及轴突末梢的新分支生长和突触前活性区的从头组装,以及突触后树突棘的从头生成。成年海马中每天约有1%-2%的树突棘是新生成的。
成人神经发生:从"不可再生"到"有限再生"
长期以来,人们认为成年哺乳动物大脑不能产生新神经元。这个观点在1998年被颠覆:Eriksson等人证明,成人海马的齿状回中存在新生神经元。这些新神经元由室下区/颗粒下区(SVZ/SGZ)的神经干细胞产生,经过约4周的不成熟阶段后整合到现有的海马回路中。
成人海马神经发生的功能意义仍在研究中,但目前的证据表明:运动、丰富环境和学习可以增加神经发生,而压力和衰老则减少它。新生神经元在模式分离(pattern separation)——区分相似但不完全相同的环境或经历——中可能发挥特殊作用,因为年轻神经元具有更高的可塑性和兴奋性。
BDNF:可塑性的分子引擎
脑源性神经营养因子(BDNF)是神经可塑性最重要的调节分子之一。BDNF通过与TrkB受体结合激活多条下游信号通路,促进突触形成、增强LTP、保护神经元免受损伤。
运动训练和认知训练都能增加海马中的BDNF表达,而压力和睡眠剥夺则降低BDNF水平。BDNF基因的一个功能性多态性(Val66Met)与记忆能力和精神疾病风险相关:携带Met等位基因的个体BDNF分泌效率较低,情景记忆能力略差,抑郁症风险略高。
⚠️ "可塑性是好事"不是绝对真理。在癫痫中,过度兴奋的可塑性导致异常同步放电回路的形成(致癫灶);在慢性疼痛中,痛觉通路中的LTP样机制使疼痛信号被异常放大;在药物成瘾中,奖赏通路的结构可塑性导致对药物线索的持久高度敏感。可塑性是中性工具,效果取决于方向。
要点串联
- 神经可塑性在多个层面发生:突触效能(毫秒到分钟)、树突棘结构(小时到天)、神经发生(天到周)
- 稳态可塑性维持回路稳定:防止突触增强或抑制导致的极端状态
- 成人海马持续产生新神经元:运动和学习促进,压力和衰老抑制
- BDNF是可塑性的核心分子引擎:运动和学习通过BDNF-TrkB通路增强可塑性
- 可塑性是双刃剑:正常可塑性支持学习和恢复,异常可塑性导致癫痫、慢性疼痛和成瘾
下一章我们看当这套精密系统出现功能障碍时会发生什么疾病。
深入理解:结构可塑性的分子机制
树突棘的新生和消除涉及复杂的分子调控。BDNF-TrkB信号通路是结构可塑性的核心驱动之一:BDNF与TrkB受体结合后,激活下游的PI3K-Akt-mTOR通路,促进局部蛋白质合成和细胞骨架重组。局部蛋白质合成的意义在于——它允许突触后位点快速获得新蛋白质来支持棘的生长,而无需等待胞体合成并运输。
Rho GTPase家族(Rac1, Cdc42, RhoA)直接调控肌动蛋白的聚合和解聚。Rac1和Cdc42的激活促进棘的生长和稳定,RhoA的激活则倾向于使棘回缩。这些分子在树突棘上的局部浓度差异决定了棘是生长还是回缩。
近年来发现的另一个重要调控因子是Arc蛋白。Arc是一种即时早期基因产物,它在突触后膜上形成笼状结构,选择性地内吞含AMPAR受体的突触后膜区域。这使Arc成为"突触遗忘"的分子中介——高水平的Arc表达会导致突触连接减弱,而Arc的缺乏则允许突触维持或增强。
案例:伦敦出租车司机
伦敦出租车司机需要通过一项被称为"The Knowledge"的严格考试——记住伦敦约25000条街道和20000个地标。研究发现,通过长期空间导航训练的伦敦出租车司机,其海马后部的体积显著大于对照组,且执业年限越长体积越大。这是成人经验驱动脑结构变化的经典证据之一。
补充:突触可塑性的时间尺度一览
神经可塑性在四个时间尺度上运行,每个尺度的机制、测量方法和行为意义各不相同。下面的示意清单可以帮助你在阅读文献时快速定位作者讨论的是哪一层可塑性:
突触可塑性时间尺度清单 ──────────────────────────── 毫秒-秒 短时程可塑性(突触易化/压抑) 机制: 突触前囊泡释放概率变化,无蛋白合成 行为: 感觉适应、短时记忆 分钟-小时 长时程增强/抑制(LTP/LTD) 机制: AMPA受体插入/内吞,CaMKII等激酶磷酸化 行为: 工作记忆、初步学习痕迹 小时-天 树突棘形态变化(棘增大/缩小/新生/消除) 机制: 局部蛋白合成、肌动蛋白骨架重塑 行为: 技能巩固、情景记忆稳定 天-周 神经发生与突触网络重构(海马齿状回新神经元) 机制: 神经干细胞增殖分化、整合入回路 行为: 模式分离、长期适应与恢复
值得强调的是,这四个尺度并非独立运转,而是级联衔接:高频刺激在毫秒级改变释放概率,若足够强则触发分钟级的LTP,LTP的持续又依赖小时级的结构变化来固定,最终在周尺度上通过神经发生和网络重构将经验写入大脑。这也是为什么"强化学习需要反复练习"——重复是把短时变化升级为长时结构变化的必要条件。
从临床角度理解这个级联有实际意义:脑卒中康复训练之所以强调高频、长期和循序渐进,正是因为在每一个时间尺度上重复刺激都在推动下一层可塑性。抗抑郁药物需要2-4周起效的滞后,也可以理解为药物触发的分子变化需要时间逐步累积成结构层面的可塑性改变,最终才表现为情绪行为的改善。反过来,一次性的强烈应激之所以能造成持久创伤,是因为它在短时间内驱动了多个尺度同时向"错误方向"重塑——这提示干预越早介入,逆转的成本越低。