2.4 轴模式建立与体节形成
2.4 轴模式建立与体节形成
本节摘要:轴模式决定了胚胎的前后、背腹、左右三个方向,而体节形成是"把时间变成空间"最经典的教科书过程:一群细胞靠内部时钟振荡、靠前方传来的成熟波锋,把身体前至后切成一条条可数的单元。本节用体节时钟的数值模拟与斑马鱼的真实实验,把"波锋 + 时钟"这套机制讲透,并说明它如何反哺我们对 Hox 前后轴的理解。
学习目标
阅读完本节,你应当能够:
- 说出轴模式要解决的前后、背腹、左右三个方向各自靠什么信号建立。
- 解释体节形成中的"时钟 + 波锋"双机制如何产出周期整齐的条带。
- 用模型理解什么时候体节周期失调会导致分段异常。
- 说明体节号与前后轴位置为何能被用作胚胎的"坐标尺"。
三根轴:胚胎怎么知道自己头尾、背腹、左右
一只还要发育多久才算"装了坐标"?——答案是几乎开篇就得装。轴模式是发育最早的读图题,三个方向各有牵头的信号:
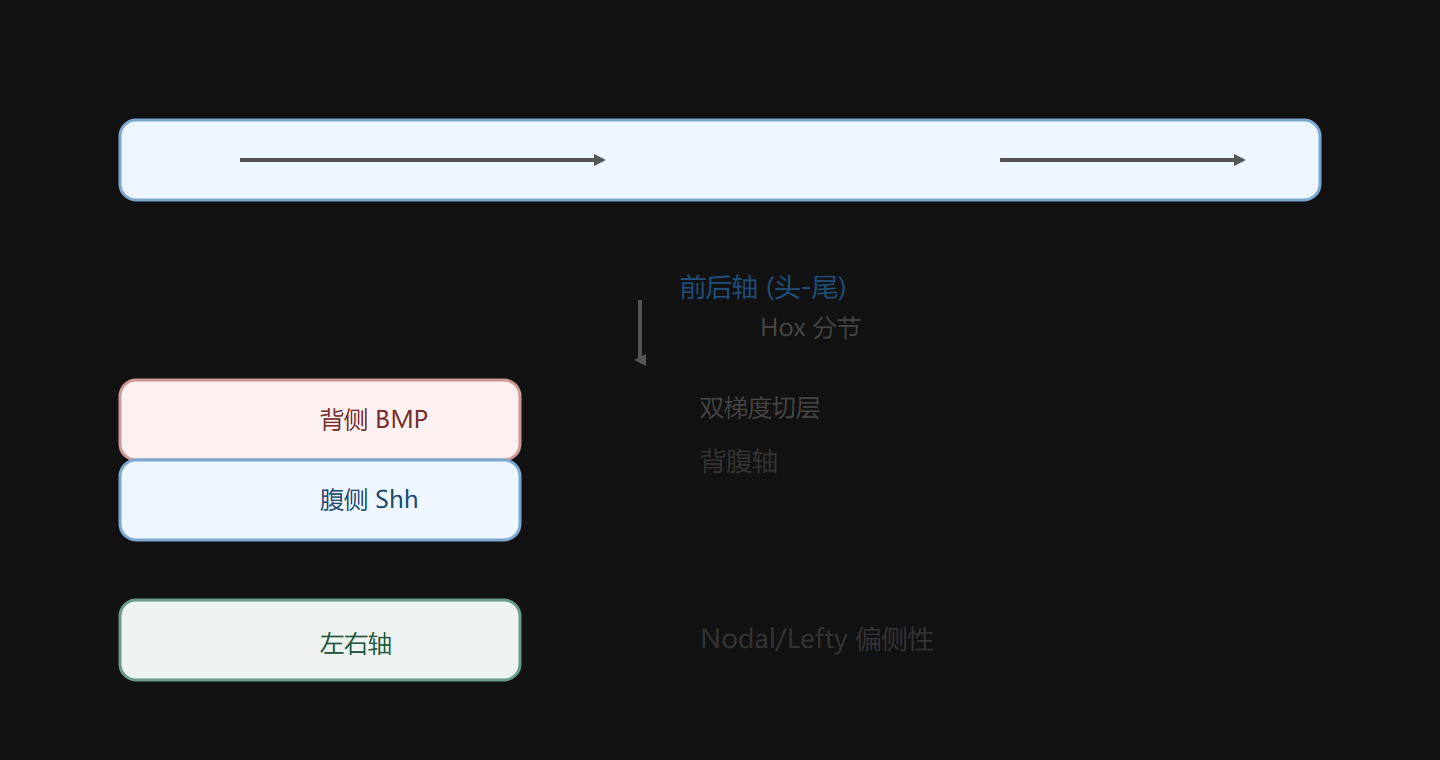
- 前后轴:靠 Hox 基因家族沿前后方向的嵌套表达(以及早期组织者贡献的梯度)把身体切成前中后疆域。Hox 的表达"地址"决定了一段将来是颈椎还是腰椎。这条线在第 7 章 Evo-Devo 还会作为"同源结构"的铁证回响。
- 背腹轴:主要由 BMP 类信号的梯度反向决定——腹侧给 BMP,背侧靠拮抗剂(如 Chordin、Noggin)压住 BMP,从而划分出神经/表皮、脊索/肌节的取舍。
- 左右轴:体内一小撮细胞打破对称,把偏置通过 Nodal 类的左右不对称信号放大,最终让心脏、内脏排到各自一侧。左右强调的是"率先破对称",否则连大肠都分不清落在哪侧。
三根轴不是孤立排布,而是互相关联地写在同一份立体几何上。记住"左右靠破对称、背腹靠 BMP 拮抗、前后靠 Hox 嵌套"这条硬骨头,第二章以后读什么都顺。
体节:一部被当成空间的钟
体节是脊椎动物胚胎从前往后一连串几乎一模一样的小块(将来形成脊椎、肌肉、皮肤),它们最迷人的地方是数量与周期性极其稳定。为什么果蝇的体节数固定,斑马鱼的也一样?答案藏在两股信号的合谋里:
一股是撤离的头端波锋——随着发育,有一条成熟波锋从头向尾推进,谁落到波锋之后就被"锁定"成一个体节单元;另一股是细胞内部自发的分子振荡时钟——靠 Notch/Delta 一类信号,该区域的细胞周期性地一起亮起来像心跳一样。两股叠加,就得到"钟一响、波一到、就刻一条"的节拍器,把时间切成了空间上的一条条。
这两个机制的配合可以用一个非常直观的 Python 波形模型来看清。让每个前体单元沿时间运行一个振荡器,波锋每过一个固定间隔把它"结算"成一条体节,于是时间上均匀的振荡在空间上就转变成等距的条带:
import numpy as np t = np.linspace(0, 1, 1000) phase = 2 * np.pi * 6 * t # 每单元内部的 6Hz 振荡时钟 wavefront = np.heaviside(t - 0.5, 0.5) # 头端波锋在中点撤离 strength = np.sin(phase) * wavefront # 计数在波锋配合下出现的“结算”点 peaks = (np.diff(np.sign(strength)) < 0).sum() if np.any(strength) else 0 print("强度波形在所有单元上的变化点:", peaks, "(对应的大致分节输入)")
这个玩具模型传递的是机制不必复杂:周期性的钟 + 一个逐渐通过的波锋 = 周期性的空间条带。真实的体节时钟不是一支每格独立振荡的管风琴,而是相邻细胞还互相耦合、同相振荡,因而能把单细胞级的时间噪声平均掉,保证整条带的整齐。这也是为什么斑马鱼体节每 30 分钟出一条、果蝇则用不同的级联——周期不同,但"振荡 + 波锋"的骨架一致。
真实案例:斑马鱼的体节时钟传奇
体节时钟从理论走向实验证据,最漂亮的一段发生在斑马鱼。研究人员观察到,在还没分化的尾端前体节区,一群细胞像节律灯一样周期性地表达 Notch 与 Delta 通路基因——荧光标记下会看到一条条弧状亮带从尾向头扫过,像涟漪。这套"涟漪"给"时钟"提供了直接的动态影像:不是静态的梯度,而是真的会随时间摆放的分子振荡。
进一步的意义在于:如果用药物或遗传手段破坏 Notch 耦合,这套涟漪就乱套,前体细胞无法整齐同步,产出的体节会变得混乱、边界模糊。这是用因果实验把"时钟 + 波锋"双机制钉死的教科书证据——你改坏同步,就改坏了空间节律。斑马鱼体节间距整齐的这些条带,还被当作胚胎的"坐标尺":数条带号就能估知道某个细胞处于前后轴的哪个位置、离头端还有多远的发育进度。这对研究者在活体里给细胞上户口极其有用。
这张轴标尺会带到哪去
体节与轴模式给出的"坐标尺 + 周期性"不只是早期的插曲。第 4 章的骨骼肌肉系统会讲到体节如何进一步分化成生骨节、生肌节、生皮节;第 7 章 Evo-Devo 会用 Hox 沿前后轴的嵌套表达解释颈椎为什么有七个无论物种大都相似(人、长颈鹿都是七节颈椎)这种跨物种的坐标一致性。轴标尺是整本教程反复回踩的一把尺。
⚠️ 常见坑:误以为体节就是"简单重复单元"。体节内部本身就存在前后极性(前沿表达一类基因、尾沿另一类),这种内部极性决定了将来每块椎骨的左右半边朝向。重复不等于同质——数出条带只是第一步,读出条带内的极性才是关键。
💡 关键直觉:体节让我放下"全胚胎都是分子图"的执念,改用"工程节拍"来看——胚胎非常擅长把一条规律的作用时间表,翻译成均匀的肉身刻度。任何时候你看到"很规整的重复结构",都可以先怀疑这背后有没有一套"时钟 + 波锋"或"振荡 + 梯度"。
本节要点回顾
- 三根轴:前后靠 Hox 嵌套、背腹靠 BMP 拮抗、左右靠早期破对称。
- 体节双机制:内部振荡时钟 + 头端撤离波锋 = 时间转空间的等距条带。
- 斑马鱼证据:Notch-Delta 的膜上涟漪 + 破坏同步即产出乱节,钉死双机制。
- 体节当坐标尺:条带号定位活体细胞沿轴的身位。
- 内部还有极性:重复不意味同质,条带内部仍有前后朝向。
第二章把我们带到了一个能"切出空间刻度"的成熟胚胎。下一章我们钻到分子层,看看这些信号到底是怎么一句话一堆地编码到细胞里的——那是执行蓝图的真正语法。
图 2-4 三条轴:前后/背腹/左右定义身体坐标