3.1 细胞通讯与信号转导
3.1 细胞通讯与信号转导
本节摘要:发育的本质之一是"细胞之间不断发合同",而签订合用的是一套数量不多却高度保守的短信通道:Wnt、Hedgehog、TGF-β、Notch。本节把它们当四套电路来拆——各自的发报、收信、转译、上下文语境,并解释为什么同一批通路能同时管轴、管肢体、管分化,却不出乱子。配合一个最简布尔网络模拟,看"信号与门控"如何决定细胞是否开出命运支票。
学习目标
阅读完本节,你应当能够:
- 列出四条主要信号通路各自的"发送-接收-下游命门"。
- 解释"上下文"为什么让同一通路在不同位置产生天差地别的效果。
- 用 Notch 的侧向抑制机制说明"邻居竞争"如何生成条带或棋盘式分布。
- 学会一眼判断一个文献里的"通路名词"大致怎么工作。
先放下"分子上课",把它当四套电路
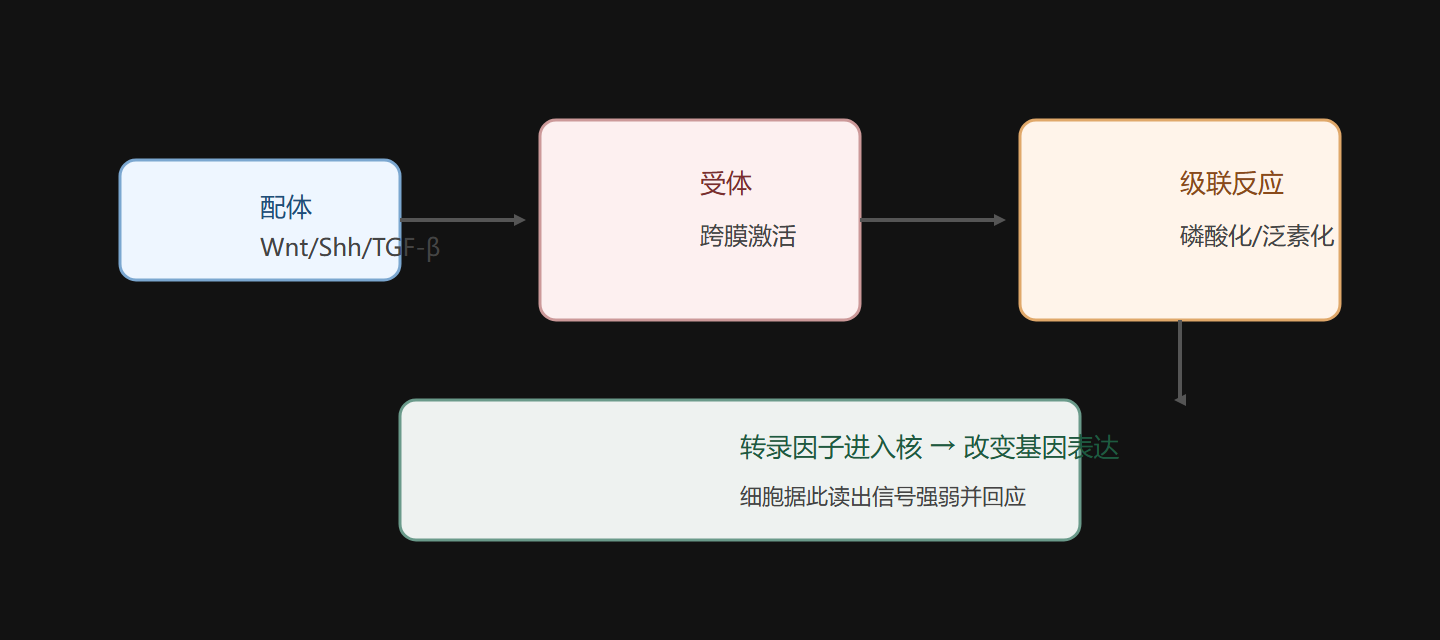
只要一进入分子发育,铺天盖地的缩写就会劝退很多人。我建议你换个心态:把它们想成四套可以互换的无线电收发机。所有通路都解决了同一个问题——"一个细胞怎么把一条指令传进核,让基因改变表达"。它们的差别只在收发和转译的细节。下面这张表是把四条通路塞进同一套"发-收-下游"模板里的速查:
| 通路 | 谁在发信 | 谁在收信 | 转译命门 | 典型活儿 |
|---|---|---|---|---|
| Wnt | 分泌的 Wnt 蛋白 | Frizzled 受体 | β-catenin 进核 | 轴侧重、干性维护、前后标尺 |
| Hedgehog(Shh) | 分泌的 Hh/Shh | Ptch/Smo 受体 | Gli 转录因子 | 背腹轴、肢芽极化、组织者下游 |
| TGF-β/BMP | TGF-β、BMP 家族 | Ser/Thr 受体 | Smad 入核 | 背腹拮抗、诱导、成骨 |
| Notch | 膜上的 Delta/Jagged | Notch 受体 | 胞内段切割入核 | 侧向抑制、条纹、神经命运 |
你会发现它们连"收发"的物理形式都不同:Wnt 是自由分泌的激素式信号,Notch 是贴脸细胞膜对膜的"握手式"信号。这决定了它们的行动半径也大不相同——那些能跨区扩散的(如 BMP、Shh 短程、Wnt)适合当梯度与远距离标尺,而那些只能推给邻居的(Notch)适合做局部的细颗粒决策。
同一套通路为什么能卖这么多货:上下文
初学者最大的困惑是:"Wnt 既管前后轴,又管肢体,还管干细胞,会不会太贪心?"答案是:通路的波长是通用的,但"读报的会议室"各不相同。 一个信号进入细胞后,能否给出一张特定命运的支票,取决于细胞里已经有哪些转录装置、处于什么染色质状态、有没有其它通路在并行发话。信号本身是通用的"关键词",真正的语义在上下文里。
这种"通用 + 上下文"的设计保护性极好:它让同一次进化里不必每次发明新通路;只要把同一套收发机搬到不同房子用就行。正因为稳定又通用,四条通路几乎在从水母到人的动物里都有同一套户口。这也是为什么学发育记通路,重点不该是背分子名,而是背"它会去哪、能听懂什么上下文"。
一个真能看懂的模型:Notch 的侧向抑制
对"上下文 + 邻域决策"最好懂的例子,是 Notch 的侧向抑制:一群初始一模一样的细胞里,谁多表达一点 Delta,谁的邻居就由 Notch 收到更强抑制、从而少表达 Delta。于是细胞相互使眼色,慢慢地"高的更高、低的更低",最终形成一种你们决定谁去当神经、谁留作表皮的分工。这种"局部竞争放大初值差异"恰是许多条带与均匀棋盘分布的底层引擎。
我用一个布尔网格模拟把这个"使眼色"过程显出来——每个细胞要么"发话"(高 Delta/被抑制者少),要么"受抑"(弱 Delta/被抑制),邻居之间互相咬合,几轮之后系统自己稳定成非均匀图案:
import numpy as np def lateral_inhibition(grid, rounds=12): g = grid.copy().astype(float) rows, cols = g.shape for _ in range(rounds): ng = g.copy() for r in range(rows): for c in range(cols): neigh = [ (nr % rows, nc % cols) for nr,nc in ((r-1,c),(r+1,c),(r,c-1),(r,c+1)) ] inhibit = sum(g[n] for n in neigh) / 4 # 邻居的平均“发话”量 # 被太多邻居发话 → 自我下调;否则 → 上调 if inhibit > 0.55: ng[r, c] = max(0.0, g[r, c] - 0.2) else: ng[r, c] = min(1.0, g[r, c] + 0.35) g = ng return g rng = np.random.default_rng(1) grid = rng.uniform(0, 1, (12, 20)) final = lateral_inhibition(grid) print("每行细胞左右的发话强度(1=高/去当神经,0=低/留作表皮):") print((final > 0.5).astype(int))
跑出来的 0/1 棋盘式斑块,就是"两两竞争放大的初值"的直观。现实中 Notch 侧向抑制控制果蝇两行感光细胞之间的排布、脊椎动物边界细胞的身份划分,这类"谁几乎相同的邻居里抢到唯一身份"的选角,靠的都是同一条电路。记住这个意象——竞争、差分放大、稳定成图案——它在很多器官里都以微妙形式循环出现。
真实案例与工程直觉
真实世界里这几条通路各领风骚:Wnt 在果蝇的节段极性里固定每段的极性方向,在哺乳干细胞里维护干性;Shh 在肢芽的后方区域分泌出浓度梯度,决定了五指各自的长短(第 4 章肢芽还会细讲);BMP 负责背部区域抑制、并被头部组织者用拮抗剂压住;Notch 则在神经与肌肉干细胞里做"邻居选角"。你要开始读发育论文,第一个动作就是把这四路信号的"发-收-命门"查清,再问一句它在这个上下文里管了什么。
⚠️ 常见坑:把"信号通路"当成"开关打开就是阳性"。真实信号常是强度与时长解码的——同样的通路,低剂量是一个意思、高剂量是另一个意思(造血里 BMP 剂量梯度管不同谱系就是经典)。所以读文献小心"通路过表达 = 一直开灯"这种简化,那常常掩盖了上下文与剂量。
💡 关键直觉:发育信号不是"传纸条",更接近"开会换座位"——每个细胞根据它收到的所有邻居声音与自身装备,重新摆位、发出下一轮声音。把"会议"(上下文)和"语音"(通路)分开记,是最省力的学习法。
本节要点回顾
- 四路电路:Wnt、Hh、TGF-β、Notch 共用"发-收-转译命门"模板,行动半径各异。
- 上下文语义:通用波长 + 不同的"会议室"= 同一通路多职多责。
- 侧向抑制:Notch 让邻居竞争把初值放大成稳定棋盘/条带。
- 剂量解码:同一通路低高剂量语义不同,别当简单开关。
- 读文献习惯:先查发-收-命门,再问上下文管了什么。
信号通了,细胞该表态了。下一节看表态怎么被写进基因组——基因调控与表观遗传怎么把一次"想法"焊成"长记忆"。
图 3-1 信号通路:配体 → 受体 → 级联 → 转录