4.1 神经系统发育
4.1 神经系统发育
本节摘要:神经系统把所有其他系统都甩在身后:它要在一卷会翻卷的神经板上,既定出前后脑区,又沿背-腹方向把几十种神经元落到正确层位,还要让它们大规模搬家和建立精确到对手指的突触。本节讲神经板成管、脑区前后化、背腹分工(BMP vs Shh),并用手套模式,看清神经元迁移动力如何把皮层搭成一层一层。
学习目标
阅读完本节,你应当能够:
- 描述神经板折叠成神经管的三个关键步骤。
- 说明脑区沿前后轴如何被分成前脑、中脑、后脑。
- 解释 BMP(背部) 与 Shh(腹部) 的梯度如何把神经管分区成挡。
- 描述皮层神经元迁移的方向顺序,以及突触如何被修剪成型。
从一卷板到一个管:神经管的闭合
神经系统的地基是一块神经板——外胚层沿背中线增厚成形的扁片。真正的成型动作是它的边缘上卷、两侧在背部中线缝合,把这块板卷成一根空心管(神经管),然后整根管沉入体下、与外表皮分离。
闭合不是全段同步,而是像拉链一样在几处"封口点"向两端去拉。人胚的神经管在受精后三到四周之间就应该在关键位置封死;若某段拉链没拉上,新生儿就出现神经管缺陷(如脊柱裂、无脑儿)——这是一类极少见却后果重的先天缺陷,叶酸等营养素在窗口期与之关系密切(第 5 章会再谈)。神经管闭合失败,数学上是"曲线缝合不收敛"的问题,物理上是上皮顶端收缩 + 中线汇合的动作,任一环出错都拉不上拉链。
前脑、中脑、后脑:大脑区域怎么来的
闭合后的神经管还是根"素管",它的前后两端要快速膨泡、分区成未来大脑的不同结构。一条主要线索是沿前后轴的信号与转录因子表达把神经管切成前脑、中脑、后脑若干大区,再接下去细化成小脑、脑干、皮层等地。
其中最重要的"分段器"之一是后脑的菱脑节(rhombomeres)——沿前后轴一排排的小块,很像体节但属于神经管。这种"前后分区 + 逐段细化"的思路,与你第 2 章看到的体节几乎同源:先靠嵌套表达定疆域,再在疆域内细分。脑之所以复杂,在于它把"分区"做得特别细、特别多层,并且让每个分区的神经元还有自己独特的分子名牌。
背腹分工:一根管里的"上下分家"
如果说前后轴是给脑管分部,那背腹轴就是把每一段再上下分层。每个局部,神经管的背部(接下来面对外表)由 BMP 信号标定成感觉神经元、背部中间神经元,而腹部由 Shh 标定成运动神经元、腹侧中间神经元。用一根 Shh 从底板的浓度梯度 + 一根 BMP 从顶板的反向梯度,就足以让中间一大片细胞按浓度读出"我是背、是腹、还是中间某层"。
我把这段"背腹分层"画成图,让你一眼看懂两根相反梯度如何在管道内切片:
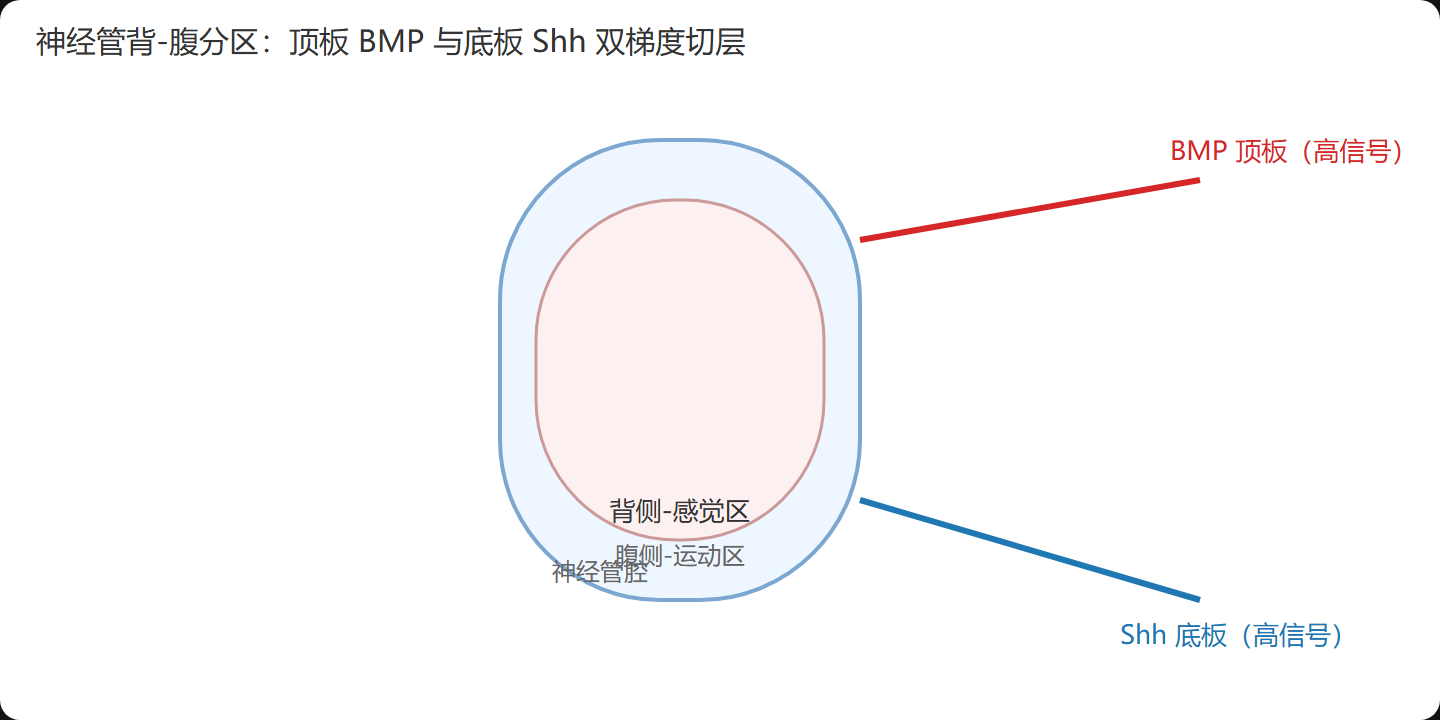
这里藏着区分神经发育的一个重要经验:要决定某个细胞的背腹身份,先看它离顶板还是底板近、读到的 BMP/Shh 谁更强。它不是非此即彼的回答,而是靠两条梯度叠加成的"坐标",落位后各居其所。这个"两条反向梯度切出中间层"的模式,提供了与第 2 章体节相近但不同于体节的结构法——体节靠振荡+波锋,这里靠稳定的双梯度切片。
我想确认"一个细胞到底靠读什么来决定自己的层位",于是写了个很小的数值实验:让一根做背侧标记的 BMP 从顶板往下衰减、一根做腹侧标记的 Shh 从底板往上衰减,然后在每个高度算"信号差",看不同位置的细胞是否能被干净地区分成背侧档、中间档与腹侧档。
# 双梯度定位:BMP 从顶部(位置0)向下衰减,Shh 从底部(位置1)向上衰减 def decode_position(pos): bmp = 1.0 - pos # 背侧(顶)强:越靠近顶(小的pos) Bmp 越强 shh = pos # 腹侧(底)强:越靠近底(大的pos) Shh 越强 diff = bmp - shh # 谁强谁弱的标准:背-腹差值 # 规则:diff>阈值→背侧神经元类型;diff<-阈值→腹侧(运动);中间→中间神经元 if diff > 0.30: return "背侧(感觉/中间上)" if diff < -0.30: return "腹侧(运动)" return "中间神经元(交界)" for p in [0.0, 0.2, 0.4, 0.5, 0.6, 0.8, 1.0]: print(f"位置{p:.1f} → 该处细胞身份:{decode_position(p)}")
跑完你会发现:位置 0.0 到 0.5 之间判成背侧或中间,0.6 之后判成腹侧——只看"两条梯度谁压过谁"就能把神经管切成连续的几层,而且切层是"大致看相对强度"的连续判断,不是一刀切。这正是我前面说的:背腹身份不是查一个基因,而是同时读两个反向梯度、算差值得来的"坐标"。 中间那一大片"交界"细胞读的是 diff 落在阈值中间——它们夹在两类极端之间,正是背上与腹侧神经元之间的海量中间神经元。
迁移与突触:把神经元送到位、再修剪出电路
身份定了,神经元还要去它该待的地方。皮层神经元先贴齐脑室面产生,然后像叠罗汉一样由内向外一层层迁移——先产生的神经元待在深层,后产生的越过它们到更表层,最终皮层按"由内向外"建成层状。这种"指路 + 加梯"式迁移,靠骨架马达与引导受体配合,稍乱层就错(某些发育异常即表现为皮层异位)。
突触形成之后也不是一劳永逸:神经回路要经过修剪(pruning)与取舍,把多余、冗余的连接剪掉,留下功能合适的路径。发育早期曾经"多多益善"生成的大量突触,在活动与竞争面前被筛选性保留——这一点和第 3.5 节的凋亡精神同源:神经系统同样靠"做减法"来精确成型。
⚠️ 常见坑:把神经系统的复杂性误解为"一条既定的基因脚本照着演"。很多神经网络的关键步骤要等活动依赖的竞争,还要等大量的凋亡修剪——头一回以"减少"为成型逻辑出现,就藏在神经层修剪与突触取舍里。别用写死的剧本思维去看神经发生。
💡 关键直觉:神经系统是"最像钻探与布线并存"的器官:钻探把神经管按轴切成区、又按背腹切成层;布线再把排除后的神经元与突触精确接好。分层像画等高线图,修剪像后期裁版,二者缺一不可。
本节小结
- 管的形成:神经板边缘上卷、拉链式闭合、沉入皮下。
- 前后分区:前-中-后脑按轴线切成大区,后脑再细分成菱脑节。
- 背腹切片:BMP 顶板 + Shh 底板双梯度把每段再上下分层。
- 皮层迁移:由内向外叠罗汉,绕开者爬到表层,层序错则发育异常。
- 突触修剪:用活动依赖的竞争与凋亡"减去"多余连接,电路才精确。
循环系统把物质与氧气送进来,神经系统已经把"指令系统"铺好了。下一节我们转到心与血管——看最早一台"泵"如何在胚胎前半程内完成从生心板到四腔心的胆大心细的改造。