5.1 干细胞生物学与再生医学
5.1 干细胞生物学与再生医学
本节摘要:干细胞是发育留给成年身体的"备用图纸柜"——它们靠自我更新维持供给、靠分化提供补员。再生医学则梦想着把这套备用图纸搬到病灶上,让受伤的心、坏死的神经、衰竭的器官能"按蓝图重建"。本节用“自我更新 vs 分化的对称分配”模型算清一支干细胞池怎么既不枯竭也不爆棚,并讲 iPSC 与类器官如何把"患者自己的细胞"变成可回输的再生产品。
学习目标
阅读完本节,你应当能够:
- 区分自我更新与分化的对称/不对称分裂如何决定干细胞池大小。
- 解释生态位 (niche) 如何同时防枯竭与防乱增殖。
- 说明 iPSC 在再生医学里的价值与它没解决的“分化谱系”问题。
- 描述类器官如何用干细胞在体外重现器官的早期成形。
干细胞面对的数学:既要有人守库,又要有人上前线
干细胞的根本矛盾是个"人力资源"题:它必须既保住自己能持续分裂的后备(自我更新),又不断产出要派去分化上任的下游细胞,还不能自己越生越多长成肿瘤。解决这个矛盾的是两类分裂:
- 对称自我更新:一个干细胞分裂成两个干细胞,纯粹扩容。
- 不对称/部分分化:一个变干细胞 + 一个变更分化的细胞;或一个变脑两个更分化的下游。
我用一个最简的"池子模型"看这个平衡怎么被保持——用一个参数 p 控制每轮分裂里"更新"与"产出"占比,看干细胞池数量是稳定、膨胀还是枯竭:
def stem_pool(initial, birth_self, start=10, rounds=200): n = initial for _ in range(rounds): n = n * birth_self # 每轮向外产出的比例体现在 birth_self 里 return n for p, name in [(1.0, "完美自我更新:恒定"), (1.03, "略有扩张"), (0.97, "逐渐枯竭")]: print(f"{name:<12} → {p:.2f} 每轮 → 200轮后约 {stem_pool(100, p):.0f}")
这个简化放大了现实里的归整感:只要"平均更新率"略小于 1,干细胞池迟早会萎缩;略大于 1,则会失控膨胀成问题(癌变)。真实的生态位就是那个把这一比例拨回"刚好 1"的调节器,靠信号与微环境把对称/不对称分裂的比例摁住。这也是为什么"离了生态位的干细胞"常在培养里下妖——它缺失了外界的拨盘。
生态位:让"守库"与"开支"各得其所
生态位不只是一个名词,它是一套管制机制:提供维持性信号让干细胞保持干性、用接触与空间约束避免它乱长、并在需要时释放分化指令。骨髓、肠道隐窝、毛囊底部都是这样的"漩涡"。理解生态位,是理解"再生能力为什么有的强有的弱"的关键——再生强的物种(如蝾螈)恰恰善于重新点亮这套生态位。
真实案例:iPSC 与类器官
再生医学的版图里,两件样品级工作与干细胞最相关:
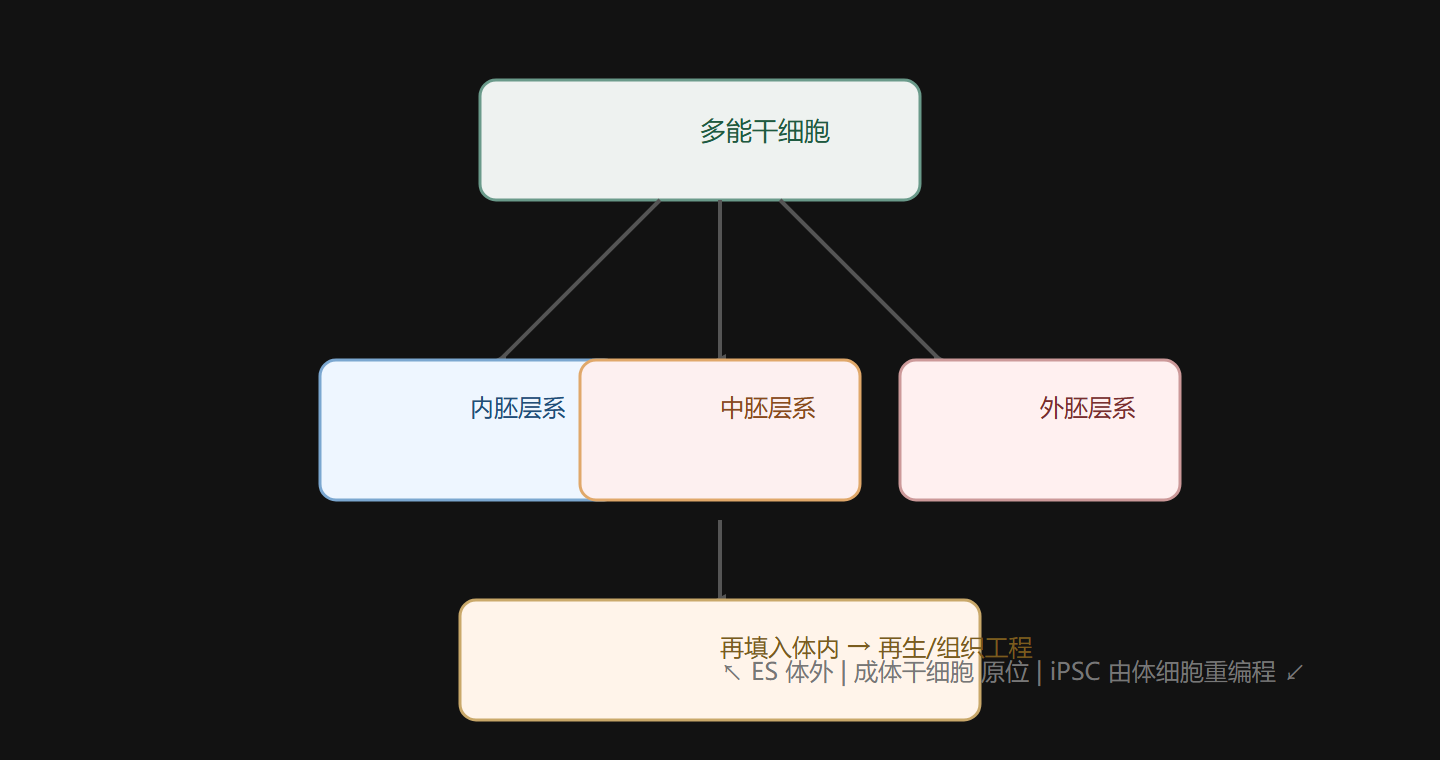
诱导多能干细胞 (iPSC):把患者本人成纤维细胞带回多能(第 3.3 节),再用分化工序让它变成心肌、神经元等"备件"。它的魅力在于"免疫配型友好 + 伦理好谈",但难点在于"回多久的分化、怎么确保它不变致癌"。它真正提供的不是万能,而是一个可用患者自己细胞造零件、绕过排异的长线平台。
类器官 (organoid):用成体干细胞或多能干细胞在体外 3D 培养出小肠、大脑、肝脏等微型器官,重现它们的早期成形。它把"我们能用人胚才看得清的发育"搬上培养皿——既能研究人发育中不便直接做的部分,又能代替动物模型做药物前的筛查。
两条线合起来,再生医学最现实的路线往往不是"凭空再造一个成体器官",而是"用患者的干细胞,在体外重建一个尺寸合适又匹配的初阶器官,再导回损伤地继续长"。
⚠️ 常见坑:期待"干细胞打进去就能治好一切"。真正卡点很多:分化谱系、免疫、致癌、血管化、以及体内是否允许它存活。别把关键词"干细胞"当成治疗保证,更要看"用哪类、走哪条分化路、在哪个生态位落脚"。
💡 关键直觉:把干细胞想成一支"常备维修队":真正值钱的不是它无限可分,而是它知道怎么把"更新"与"开支"拨到刚好不亏不燥。再生医学的每一记成败,几乎都能还原成"怎么把这个拨盘在病灶上重新拨对"。
本节要点回顾
- 对称 vs 不对称:自我更新守在库,分化上前线,各司其职。
- 拨盘≈1:生态位把更新率摁在 1,既防枯竭也防失控。
- iPSC 的边界:能造"患者自己的备件",但分化与安全才是难点。
- 类器官:把早期器官成形搬上培养皿,做研究/药物筛查。
- 现实路线:多半是"再造初阶器官 + 输回原位长",不是凭空造成体。
干细胞告诉我们"成体怎么备用、能修多少"。下一节把"调"与"老"的一体两面请上台——看变态与衰老如何证明,"改写程序"不只属于幼儿期,贯穿整个生命周期。
图 5-1 多能性来源:ES / 成体 / 重编程 iPSC