7.1 核心概念与研究内容(同源性、异时性、异位性)
7.1 核心概念与研究内容(同源性、异时性、异位性)
本节摘要:进化发育生物学(Evo-Devo)回答一个尖锐问题:既然动物形态千差万别,为什么大家的手在分子层面用的是同一套蓝图?本节立起三根支柱——同源性(共享蓝图)、异时性(同一事件在不同物种里时间的移动)、异位性(同一事件换了位置执行)。并用一个时间轴数值例子,体会"只是把同一个程序提早几小时"就能造出截然不同的身体。
读后能力
阅读完本节,你应当能够:
- 用"共享分母"而非"长得像"来刻画同源性,说清它与"类比"的区别。
- 定义异时性和异位性,并各举一个发育实例。
- 用相对时间刻度解释"发育时钟移动"如何造成表型差异。
- 说明 Evo-Devo 如何把"演化"与"发育"两把时间尺子接上。
同源性:长得不一样,也是同一个
"同源"起初指的是"结构上对应"(如人臂与蝙蝠翼、鲸鳍的骨头一一对应)。Evo-Devo 把它讲得更深:两个结构即便最终形态南辕北辙,只要它们由同一套保守的遗传蓝图(同源基因、同一信号模块)启动,就仍是同源。最著名的是眼睛——果蝇的复眼与人类的相机眼外观毫无关系,却都由同名的主控基因(Pax6 家族)拉起整套程序。还有Hox 基因:果蝇与小鼠几乎共用的那一排 Hox 基因,各自在沿身体前后轴的同一相对位置上决定分段身份。同源性≠塑形长得像,同源性≠组分完全一致,同源性=共享的发起程序。
这与"类比"(convergence,趋同)相反:鸟翼与蝙蝠翼功能近似,发起程序却各起炉灶。同源与类比的区别,是演化发育最常考的判题。
异时性:同一程序,换个时间点开演
形态差异常不来自新发明,而来自同一个程序被提前或推迟开演。把"长出关键结构/关键转变"的事件,在发育时间线上挪动,就足以改写最终形态。经典案例:某些两栖类的幼态延续(neoteny)——如墨西哥钝口螈把"变态"推迟甚至取消,成年体型却保留幼年性状,于是"永葆青春"的形态其实是异时性在作祟。另一个是提前性早熟(progenesis)——性成熟提早到幼体阶段,成体形态整个不再出现。发育时间线的移动看似缓慢,效果却是形态级的跳跃。
可执行的刻度:相对时间怎么被挪动
要在数值里体会"异时性",我们把两个物种胚胎的发育都归一成相对时间轴(0 为起点、1 为事件发生),再让同一事件在物种 B 里比物种 A 提前或推迟发生。下面这个小例子统计"若共 10 个里程碑事件、B 在时间上把前 3 个提前 30%",看整体的相对顺序如何被搅乱:
# 模拟异时性:把事件在相对时间轴上整体提前/推迟,看相对顺序怎么变 events = [0.10, 0.18, 0.25, 0.33, 0.45, 0.55, 0.68, 0.80, 0.90, 0.98] shifted = events.copy() for i in range(3): # 前3个事件被提前30% shifted[i] = max(0.0, events[i] - 0.30 * events[i]) print("事件 | 物种A(原时间) | 物种B(异时) | 相对顺序是否变化") for name in ["事件01","事件02","事件03","事件04","事件05"]: i = int(name[-2:]) - 1 a = events[i]; b = shifted[i] # 与"下一个事件"比较在B里的相对顺序:把列表排一下 order_a = sorted(events).index(a) + 1 order_b = sorted(shifted).index(shifted[i]) + 1 if shifted[i] != a else order_a flag = "→次序改变" if order_a != order_b else "稳定" print(f"{name} | {a:.2f} | {b:.2f} | {order_a}→{order_b} {flag}")
跑完你会看见:即使事件总数和内容完全没变,只要把前几个提前,某个原本靠后的事件就可能被"插队"——相对先后次序变了。发育学的关键取景是:次序与相对时间,常常比绝对时间更能决定谁影响谁(先出现的信号改变后续事件的前提)。异时性正是靠这种"次序重排"撬动形态。
异位性:同一个程序,换个地方跑
第三根支柱是异位性——同一个基因或程序换了身体位置去执行,赋予那个部位新的能力。例证极多:同一组骨形态发生/Hox 程序被复用在不同体节,让每一节长出略不同的附器(果蝇的触角、口器、腿各自由同一套模块微调而成)。异位表达实验(在第 6.3 节见过)正适合演示"换位置":把某基因在小鼠不常表达的部位强制打开,部位就被改写成它记忆里的命运。异位性的启示:蓝图被复制并粘到新岗位,是演化办「加新课」的廉价办法。
把三根柱子钉回同一张表
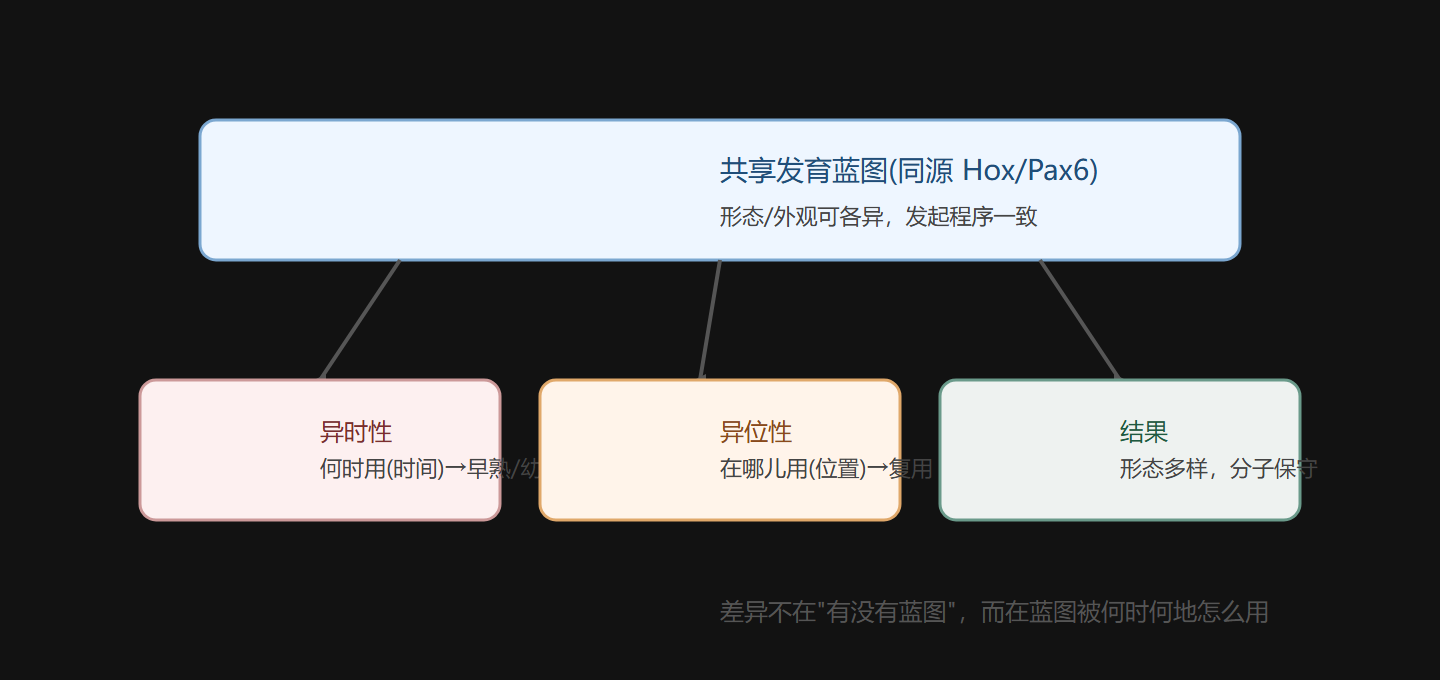
同源、异时、异位看似不同,底层一致——发育蓝图高度共享,差异来自哪儿用、何时用、在哪儿用:
- 同源 = 用同一张蓝图(shared architecture)
- 异时 = 何时用(timing)
- 异位 = 在哪儿用(location)
这三者合起来,正解释了为何形态多变而分子基础保守。要记住 Evo-Devo 不是"演化生物学+发育生物学"的简单相加,而是追问"基因程序在改动哪一挡(时间/位置/强度)换来新形态"的特殊视角。
⚠️ 常见坑:把"异时性"等同于"长得像的"或"胚胎像成人"。异时性是事件在发育时间轴上的相对时序,本质是定量的相对量,不是外表的相似度。看错了尺子,案例就会认错。
本节小结
- 同源性:共享发起程序(如 Pax6、Hox),≠长得像,≠趋同类比。
- 异时性:同一程序被提前/推迟,靠相对次序重排改写形态(如在幼态延续)。
- 异位性:同一程序换位置执行(复用的 Hox/主控模块、异位表达)。
- 数值直觉:事件全同、只调前几个的时序,也能显著改变相对先后。
- 统一视角:蓝图共享,差异来自何时用(异时)与在哪儿用(异位)。
图 7-1 三支柱同一表:蓝图在哪用、何时用、用在哪