7.2 生物会说话:生物标志物生物监测与生态风险
7.2 生物会说话:生物标志物生物监测与生态风险
本节摘要:化学仪器告诉你“环境里有什么”,而生物本身则告诉你“这些东西对生命意味着什么”。本节讲两条互补的路线:生物标志物(酶活性、金属硫蛋白、DNA 损伤)像装在体内的仪表,能读出污染物在个体层面留下的痕迹;生物监测则把鱼、贝、蚯蚓当哨兵,观测暴露现场的实际效应。最后我们从个体提升到生态尺度,看如何用敏感物种的 NOEC 推导保护整个系统的临界浓度。
本节应掌握
阅读完本节,你应当能够:
- 说出生物标志物的含义与几类典型例子。
- 解释生物监测如何用“哨兵生物”反映污染暴露。
- 用累积毒性模型估算生物体对污染物的响应。
- 说明 NOEC 与物种敏感度分布(SSD)如何支撑生态风险。
- 区分生物标志物、生物监测与生态风险评估的分工。
一、生物标志物:体内的预警仪表盘
生物标志物是污染物进入生物体后引发的可测生物学变化。常见的三类:暴露标志物(如重金属在壳中的累积量)、效应标志物(如乙酰胆碱酯酶被有机磷抑制、DNA 加合物增多)、易感性标志物(反映个体解毒修复能力的遗传差异)。它们比单纯的化学浓度更贴近“真正发生了什么”。
二、生物监测:让哨兵生物开口
与其等检测下次采样,不如让生活在现场的动物持续“记录”。河里的鱼、贝,土壤里的蚯蚓,都是现成的哨兵。生物监测关注种群、繁殖、行为与组织病变,它把一次环境超标翻译成“对一个生命长期累积的压力”。别把生物标志物和生物监测割裂:标志物给出个体机制层面的细节,监测给出群落层面的综合图景。
三、累积暴露的数值估算
污染物进入生物体不是瞬间平衡,而是摄入、清除两股力量的赛跑。用一阶动力学即可估算稳态时的体内浓度,这是理解“生物富集”与“超标暴露”的数值基础。
# 生物累积的一阶模型: 体内浓度随时间变化 C_body = 0.0 k_in = 0.020 # 摄入速率 每单位时间 k_out = 0.005 # 清除速率 C_env = 10.0 # 环境暴露浓度 time = 50 for t in range(1, time + 1): C_body += k_in * C_env - k_out * C_body if t in (1, 5, 10, 20, 50): print(f"t={t:>3d} 体内浓度 {C_body:6.2f}") # 稳态体内浓度 = k_in*C_env / k_out Css = k_in * C_env / k_out print(f"稳态体内浓度 = {Css:.2f} (清除慢→累积高)") # 富集系数 BCF BCF = k_in / k_out print(f"富集系数 BCF = {BCF} 倍")
富集系数越高,说明该生物越容易“攒毒”,也就越适合当敏感哨兵——这正好解释为什么鱼比水更能反映持久性污染物的长期风险。
四、从个体到生态:NOEC 与物种敏感度分布
单个物种受得了,不代表整个系统安全。生态风险评估常用 NOEC(未观察到效应浓度),即某个物种长期不出现显著效应的最高测试浓度。由于不同物种敏感度不同,把多种生物的 NOEC 画成**物种敏感度分布(SSD)**曲线,取保护 95% 物种对应的浓度,就得到能“保护整个群落”的临界值,再除以安全系数落实为水/土环境质量标准。
五、真实案例:用贝类哨兵还原一次港湾污染
某港湾常见养殖牡蛎壳中镉含量持续上升,单看水体浓度尚在限值内。生态监测人员以牡蛎为哨兵,用金属硫蛋白诱导与壳累积作为标志物,发现暴露梯度与上游历史冶炼排污一致,从而锁定了靠单纯水化学检测难以定位的“陈旧”污染源。这说明生物的长期记录,往往能补足瞬时水样看不到的真相。
六、一张“个体到生态”的监测金字塔
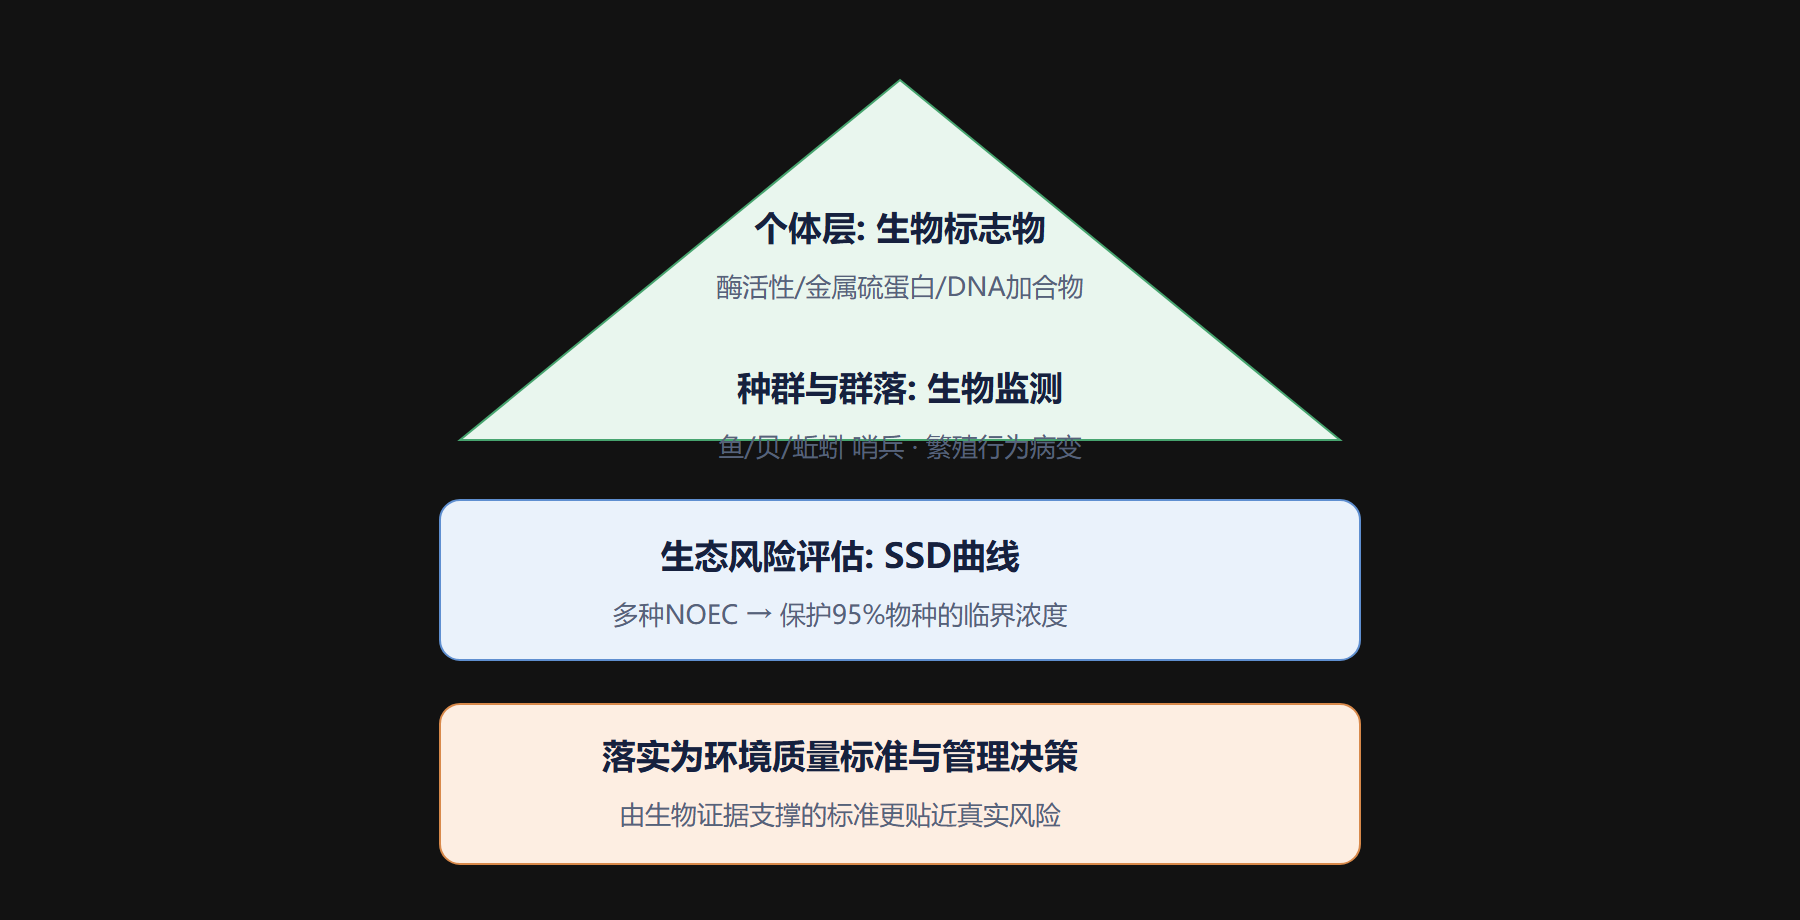
图:从个体标志物到生态质量标准的监测金字塔
底层个体读机制,中层监测读效应,上层 SSD 落实为标准,层层拔高。
实践中,单靠某一种标志物往往不够,更稳妥的做法是用一组“砝码”交叉印证:生物累积量、酶活性、组织病变各占一角,互相校准。同样地,生物监测要有固定的哨兵位点与基线,才能把正常波动和真实异常分开。生态风险的表征也因此常保留“证据权重”的口吻,而不是凭单一指标草率下结论——这既是对科学的敬畏,也是避免误判引发过度治理的护栏。
本节要点回顾
- 生物标志物分暴露、效应、易感性三类,是体内的“预警仪表”。
- 生物监测用哨兵生物的长期记录补足瞬时化学采样的盲区。
- 富集系数越高的生物越适合当敏感哨兵。
- SSD 曲线把多种 NOEC 翻译成保护生态系统的临界浓度。