3.1 自由能、氧化还原与生物能量
3.1 自由能、氧化还原与生物能量
本节摘要:生化反应朝哪个方向跑,不是看熵或焓,而是看吉布斯自由能变 ΔG。本节讲清 ΔG=ΔH−TΔS 的意义、标准态与实际状态的差别(ΔG = ΔG°′ + RTlnQ),并用算例判断葡萄糖磷酸化等在细胞浓度下实际能不能自发。接着转向氧化还原电位:电子往更高正电位的受体跑,半反应电位差决定放能多少,这也解释了氧为何是最终电子受体。
本节导读
阅读完本节,你应当能够:
- 说出自由能、焓、熵的关系并解释 ΔG<0 的意义
- 区分标准自由能变与实际自由能变,用反应商 Q 修正
- 用算例判断给定浓度下某个反应实际方向与放能
- 解释氧化还原电位与放能的关系,说明电子传递链为何有方向
- 指出"自由能决定方向、酶只决定速度"这一分工的边界
一、ΔG 是一切方向的判据
判断反应能否自发,要看过程的吉布斯自由能是否下降。ΔG = ΔH − TΔS,其中负熵(更有序)通常是不利的,而放热(ΔH<0)有利,二者综合才决定结果。生化书更喜欢标准态修正版:
ΔG = ΔG°′ + RT·ln Q
其中 Q 是反应商(实际浓度比),ΔG°′ 是 pH7、标准浓度下的参考值。化学反应若 ΔG<0 则能自发朝正方向,ΔG=0 则处平衡,K 与 ΔG°′ 的关系为 K = exp(−ΔG°′/RT)。下面的算例演示"标准态看似不能自发、实际却有反应可跑过去"这个反直觉点。
import math def dG(dG0, Q, T=310): R = 8.314e-3 return dG0 + R*T*math.log(Q) dG0 = 4.0 # kJ/mol,正值=标准态不自发 for Q in [0.1, 1, 100]: val = dG(dG0, Q) print(f"Q={Q:>5} → 实际ΔG={val:+6.2f} kJ/mol", "(可自发→)" if val<0 else "(←不可自发)")
当细胞把产物浓度压得极低(Q 远小于 1),即使标准态 ΔG°′ 是正的小值,实际 ΔG 也可以翻负,反应照样被"拖着走"。这就是为什么许多"热力学上山"的步骤能在活体里完成——靠不断抽走产物。
二、一个真实的"上山"算例:葡萄糖磷酸化
葡萄糖要被"激活"才能进入糖酵解,第一步葡萄糖 + Pi → 葡萄糖-6-磷酸的标准态 ΔG°′ 是正的(约 +13.8 kJ/mol),标准态下不可能自发。可是细胞里这步是自发完成的,原因在于后续反应立刻把葡萄糖-6-磷酸"抢走",让反应商被压得极低、且由 ATP 驱动的另一种磷酸转移(己糖激酶催化的葡萄糖 + ATP → 葡萄糖-6-磷酸 + ADP)负得很多。我们一次把两种都算出来。
def dG(dG0, Q, T=310): R = 8.314e-3 return dG0 + R*T*math.log(Q) # 己糖激酶式:葡萄糖 + ATP -> G6P + ADP, ΔG°'≈ -16.7 kJ/mol g0_hex = -16.7 Q_hex = 1e-2 # 细胞里产物被下游抽走,Q 被压小 print("己糖激酶一步实际 ΔG:", f"{dG(g0_hex, Q_hex):+.1f} kJ/mol(强自发)") # 对比:直接再加 Pi 的净磷酸化(正 ΔG°,Q 拉大也不够救) print("直接葡萄糖磷酸化标准 ΔG°': +13.8 kJ/mol → 标准态不可能")
两个数对照就很清楚了:细胞用"ATP 这种高能分子去当磷酸供体",直接把 ΔG°′ 从 +13.8 翻成 −16.7,从而把一场"热力学上坡"改写成源源不断的"下坡"。这正是 ATP 作为"能量邮票"的微观证据,也是下一节要展开的 ATP 高能键故事的起点。
三、氧化还原:电子愿意往"高电位"跑
生化里很多能量来自电子的搬运。判断电子往哪去看还原电位:还原电位更正的一对,越愿意接受电子(作为氧化剂);电位更负的一对,越愿意交出电子(作为还原剂)。电子从负电位流向正电位,两者之差越大,能做的功越多。
def emf(e_cathode, e_anode): return e_cathode - e_anode # 伏 pairs = {"NAD+/NADH": -0.32, "FAD/FADH2": -0.22, "琥珀酸/延胡索酸": 0.03, "细胞色素c(Fe2+/Fe3+)": 0.25, "O2/H2O": 0.82} print("常见电子载体标准还原电位(V):") for k, v in pairs.items(): print(f" {k:28s} {v:+.2f}") En = emf(0.82, -0.32) # NADH -> O2 n, F = 2, 96485 print("NADH→O2 电位差:", f"{En:+.2f} V;每对电子 ΔG:", f"{-n*F*En/1000:+.0f} kJ/mol")
这张"电位表"按从低到高排开,正是电子传递链沿线的台阶。NADH 到氧的电位差约 1.14 伏,换成自由能约 −220 千焦每摩尔电子对。这个"很充裕"的能量,就是电子传递链能逐级泵质子、最终合成多个 ATP 的来源。只要认得这张表,就能立刻判断"某个还原剂能不能把电子交给某个氧化剂"。
def will_transfer(e_donor, e_acceptor): return e_acceptor - e_donor > 0 # 例:NADH 能把电子交给 O2 吗;NADPH 呢 for d, a in [(-0.32, 0.82), (-0.32, 0.25), (0.25, -0.32)]: print(f"电子供体E={d:+.2f}V → 受体E={a:+.2f}V:", "自发传输" if will_transfer(d,a) else "不会自发")
用这两个函数,你可以任意拿两个载体做"会不会自发传电子"的判据实验。第 4 章氧化磷酸化会把这一格一格的台阶连起来细算账。
四、一个"为什么氧气不可替代"的推断
有机分子作为电子受体往往电位不够高,能抓到的电子少、放能也少,这就解释了厌氧(发酵)比有氧低效得多。人没氧气只能把葡萄糖发酵成乳酸,净赚两个 ATP;而有氧条件下同样一分子葡萄糖能赚约 30 余个 ATP——因为氧的电负性把电子"榨干"。氧的稀缺(缺血)导致的代谢骤降,根源也在这里:细胞一旦缺氧,电子堆在传递链上游无处可去,氧化磷酸化立刻熄火,只能转向低效的发酵勉强续命。
五、实验/临床落点:用 ΔG 看"堵在哪"
代谢病常是某个酶的缺陷让某一步过不去。若那一步本来是"强自发下坡",上游中间物就会被堵住堆积;若那一步是"需低 Q 才能下坡"的近平衡步,则影响更微妙。理解哪几步近平衡、哪几步远平衡(由 ΔG 的绝对值区分)正是临床代谢病降糖/降脂治疗"挑哪个酶下手"的根据——因为只有操控"远平衡的限速步骤"才谈得上真正改变整条通路的通量。这也是下一节代谢网络调控的预备知识。
图 3-1 氧化还原电位梯与水传递
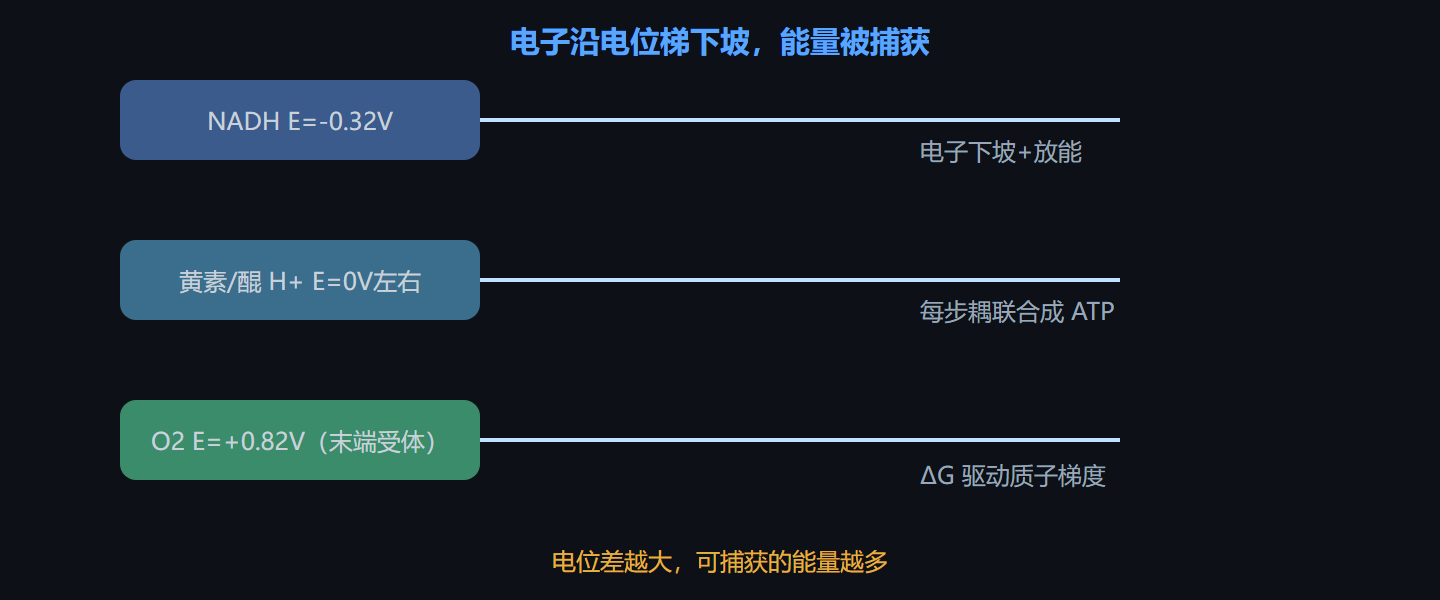
代谢把高能电子从还原载体交给氧化剂,沿正电位方向释放的能量被偶联用来合成 ATP。
本节要点回顾
- 方向看 ΔG:ΔG<0 才自发,标准态只是参考,实际受反应商 Q 摆布。
- 标准态≠实际:把产物抽走、把反应商压低,正 ΔG°′ 也能被拖着走。
- ATP 改写账号:用 ATP 作磷酸供体可把 +13.8 kJ/mol 改写成强自发的下坡。
- 电子看电位:电子从低电位往高电位流,电位差决定放能;一张电位表能当场判输赢。
- 氧的霸主地位:O2 电负性高,好氧放能远超发酵。
- 代谢病落点:挑"远平衡的下坡步骤"抑制,是现代降糖降脂的思路根。