7.2 主要信号传导通路
7.2 主要信号传导通路
本节摘要:G 蛋白偶联受体(GPCR)与受体酪氨酸激酶(RTK)是两条最主流的膜受体通路。GPCR 用 G 蛋白的 GTP/GDP 交换把信号"换挡",RTK 靠磷酸化把自己和下游蛋白串成级联(Ras→Raf→MAPK)。本节用算例把"逐级放大为何能有千万倍增益"讲清楚,用秒表量化 GPCR 激活 cGMP 的循环,并说明它们最终如何改变代谢酶或基因转录。
学习目标
阅读完本节,你应当能够:
- 描述 G 蛋白的 GDP→GTP 激活与水解"换挡"机制
- 说出 GPCR 经腺苷酸环化酶/cAMP 或磷脂酶C 的两条主要分支
- 复述 RTK 接信号后的受体二聚化与自身磷酸化
- 用算例估算级联放大的倍数数量级
- 说明这两条通路如何与代谢、细胞增殖、药靶关联
一、G 蛋白:把"开了"的状态用 GTP 锁住
GPCR 结合配体后改变构象,让受体去把 G 蛋白上的 GDP 换走、换成 GTP,α 亚基带着 GTP 松开去激活下游(如腺苷酸环化酶造 cAMP、或激活磷脂酶C)。等 GTP 被水解回 GDP,α 亚基又归位——一次响应的开关由 GTP 的来去精确定时。
def gprotein_cycle(t_gtp_seconds=2.0, t_gdp_seconds=1.0): # 每轮激活-水解需要的时间,反映"能开多久" return t_gtp_seconds + t_gdp_seconds print("G蛋白一轮激活-水解耗时约", gprotein_cycle(), "秒 → 可被反复触发") print("关键:GAP 加速水解、能让信号更快熄灭(关闭是受控的)")
整个过程是一种"绿灯亮一会就灭"的换挡器,而 GTP 酶的速度决定了这盏灯亮多久。细菌毒素之所以可怕,正是它们能锁定 G 蛋白停在激活态(如霍乱毒素让 Gαs 无法水解 GTP),让光照信号无限常亮。
二、其中一支:视觉的"光→电"
GPCR 最让人惊艳的例子是视紫红质:光即配体。光照射使视紫红质构象变化、激活转导蛋白 Gt,再激活 cGMP 磷酸二酯酶把 cGMP 拆掉,从而让阳离子通道关闭、细胞超极化。这一串把一光光子放大成很多个 cGMP 水解,正是"级联放大"的教科书示范。
def photon_amplify(photon, pde_per_G, cGMP_per_pde, channel_closed): return photon * pde_per_G * cGMP_per_pde * channel_closed print("单光子约引发 cGMP 水解数:", f"{photon_amplify(1, 500, 100, 1):,}")
一个光子算出能撬动上万个 cGMP 分子水解,让杆状细胞在微光下也能产生可度量的超极化——这就是"你怎么能在夜里看清东西"的分子量级。
三、RTK:磷酸化级联
受体酪氨酸激酶单个接信号时不易起效,配体往往使受体二聚化,让两条胞内尾互相磷酸化,再招募下游接头蛋白,把信号一路传到 Ras、Raf、MAPK……最终把转录因子送进核,改基因表达。这条链的不同之处在"每层都能把一个分子激活好多个下一层"——于是信号被指数放大。
def amplification(stage_gain, layers): return stage_gain ** layers for gain, layers in [(5, 3), (10, 4), (5, 6)]: print(f"每层{gain}倍 × {layers}层 → 总放大 {amplification(gain,layers):,.0f} 倍")
这个数量级正是"一个激素分子也能把细胞从'没反应'推到'大动作'"的物理来源。所谓"级联放大",说白了就是一小撮信号分子撬动成千上万效应分子。它同时也是数目繁多激酶抑制剂药物(伊马替尼、曲妥珠单抗)的死穴——既然放大靠这层层的磷酸化接力,掐住关键激酶就能截断整条链。
四、两条主流被测成药靶
- GPCR 家族占上市药半壁江山(β 受体、组胺、AT1 等)。
- RTK 家族则是肿瘤靶向药的焦点:许多癌靠 RTK(如 EGFR、HER2)过度信号驱动增殖,所以激酶抑制剂专门来"掐"这条链。
一旦看懂"谁在源头发信号、谁在链上被放大",你就会明白药物为什么常落到"受体"或"激酶"而不是下游某个非常住靶——越往源头,越能以最少的量关掉一片效应。
五、两条通路如何收束
GPCR 分支偏"快"(改 cAMP/钙离子→改酶活性),RTK 偏"慢但大"(改基因表达→重塑细胞状态)。两者又常常"交叉":一条通路的输出能影响另一条的输入(如 cAMP 影响 Raf),于是信号网络天生带"交叉耦合"的属性。
图 7-1 两条主通路示意
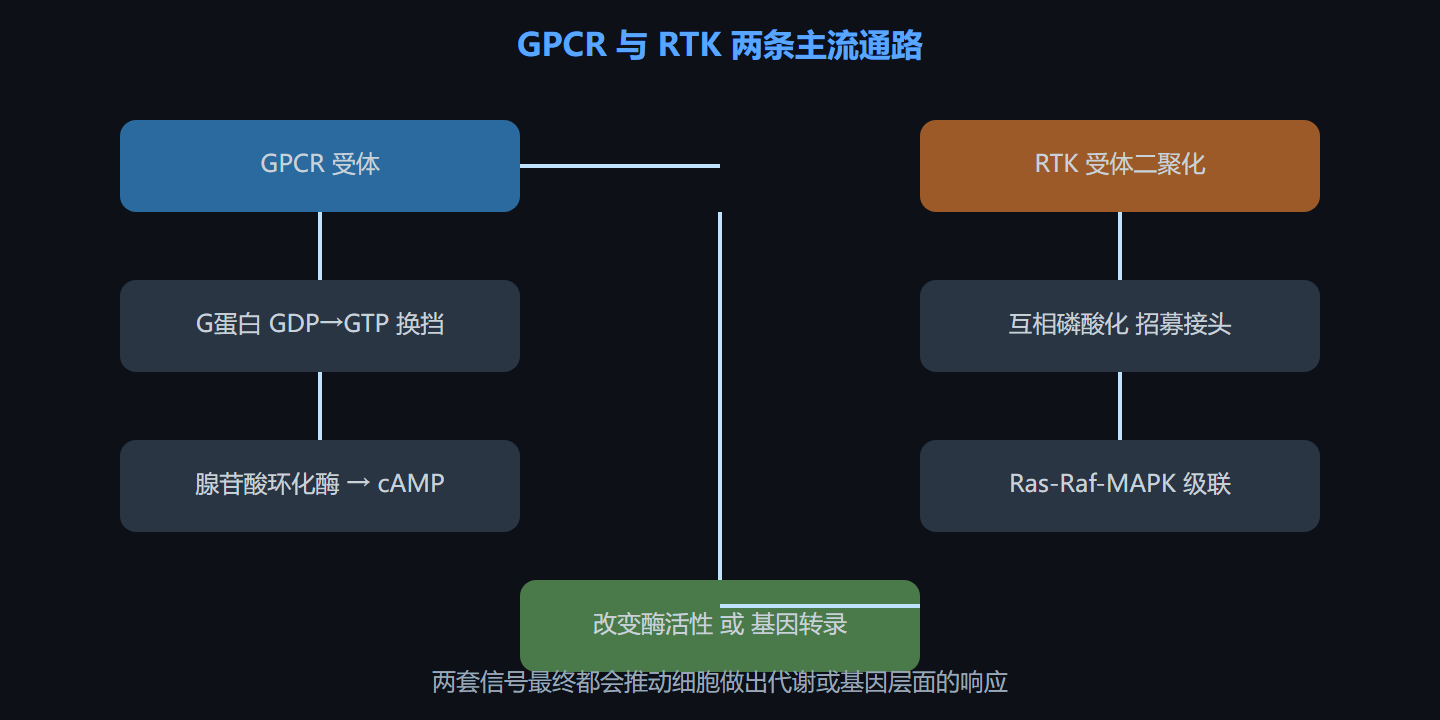
图中左右两列分别走"GPCR→cAMP"与"RTK→MAPK",汇于改变酶或基因这个共同出口。
本节要点回顾
- GPCR:配体→G 蛋白 GDP/GTP 换挡→激活下游(cAMP 或 PLC),海洋毒素可锁死点亮状态。
- 视觉示范:单光子→大号 cGMP 水解→可测定的超极化,是级联放大的经典。
- RTK:配体使受体二聚化、自身磷酸化,招募链串运至 Ras-MAPK。
- 级联放大可算:每层几倍、叠几层即可获得千百到千万倍增益。
- 药靶高度集中:GPCR 成首要药靶,RTK 系肿瘤靶向药焦点。
- 收束:快(改酶活性)与慢(改基因表达)两路最终汇合,还互相耦合。