3.1 细胞膜的结构模型与动态特性
3.1 细胞膜的结构模型与动态特性
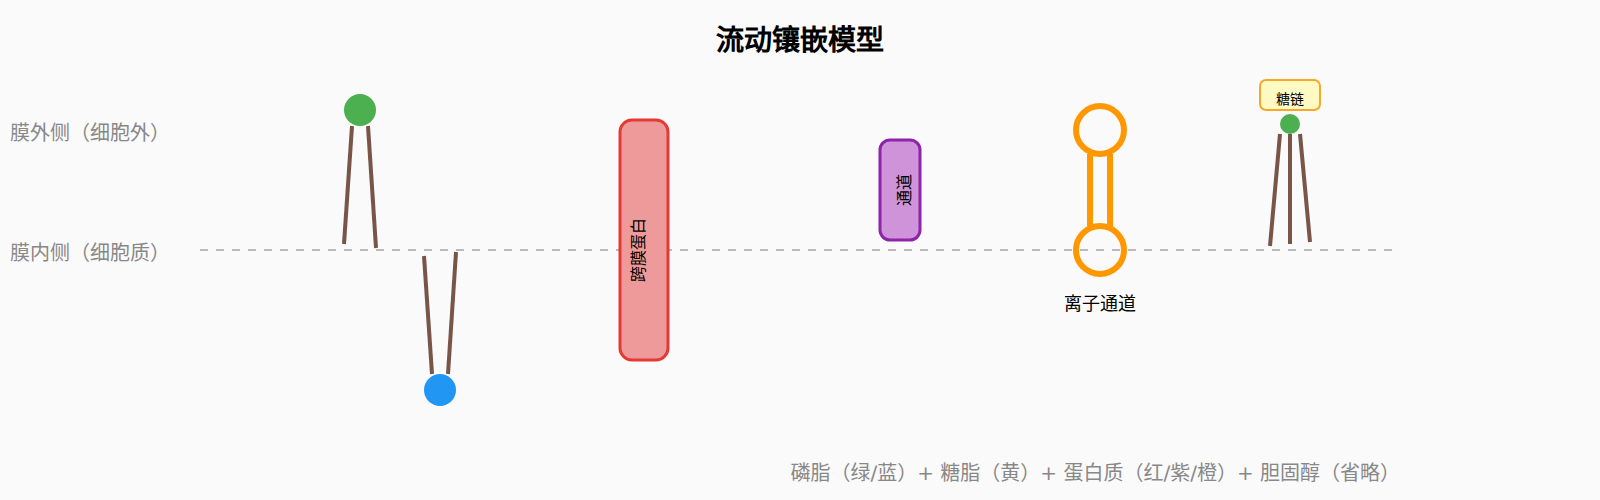
本节摘要:细胞膜的结构由1972年Singer和Nicolson提出的流动镶嵌模型描述:磷脂双分子层构成膜的基质,蛋白质以不同方式镶嵌其中,糖链朝向膜外侧。膜不是静态的结构,而是一种二维液体——脂质和蛋白质可以在膜平面内自由移动。
细胞膜是不是一层"皮"
如果问"细胞膜是什么",很多人会脱口而出"一层皮"。这个答案并不全错,但会误导你:皮是静态的、固定的,而细胞膜是动态的、分工的。膜上几百种蛋白质各有各的活法——有的当门卫(通道和泵),有的当天线(受体),有的当信号员(酶)。膜也不是均匀的,局部有脂筏这样的功能平台。把细胞膜当成"一堵墙",你会错过它作为信息门户的一面;把它当成"一片流动的海面",才算摸到了门道。
学习目标
阅读完本节,你应当能够:
- 描述流动镶嵌模型的三个核心特征
- 区分膜蛋白的六种功能类型
- 解释为什么膜的流动性对细胞功能至关重要
- 描述膜的不对称性及其功能意义
从三明治模型到流动镶嵌模型
在电子显微镜出现后,科学家看到细胞膜呈现"三暗一亮"的三层结构——两层深色电子密度高的层夹着一层浅色的中间层。这个观察催生了"单位膜"模型(Danielli和Davson,1935年):蛋白质-脂质-蛋白质的三明治结构。
这个模型在解释膜的多种功能时越来越吃力。1972年,Singer和Nicolson提出了流动镶嵌模型,三个核心修正:
- 膜的基本骨架是磷脂双分子层(不是脂质单层)
- 蛋白质镶嵌在脂质双分子层中,有些穿透整个双层(跨膜蛋白),有些只附着在一侧(外周蛋白)
- 脂质和蛋白质可以在膜平面内自由侧向移动——膜是二维流体
流动镶嵌模型后来又有所修正。1988年,Simons和Ikonen提出了脂筏假说:膜中富含胆固醇和鞘脂的微区域形成相对有序的"筏",某些特定的膜蛋白(如信号转导相关蛋白)倾向聚集在这些区域中。脂筏不是固定的结构,而是动态组装的功能平台。
膜蛋白的六大功能类型
根据在膜中的位置和功能,膜蛋白可以分为:
| 类型 | 与膜的结合方式 | 典型功能 |
|---|---|---|
| 跨膜蛋白 | 穿过脂质双层的α螺旋或β桶 | 离子通道、受体、载体 |
| 单次跨膜蛋白 | 一条α螺旋穿过 | 多数受体(如胰岛素受体) |
| 多次跨膜蛋白 | 多条α螺旋反复穿过 | G蛋白偶联受体、离子泵 |
| 脂锚定蛋白 | 通过脂肪酸或异戊二烯基团共价连接 | Src激酶、Ras蛋白 |
| 外周蛋白 | 通过非共价相互作用附着在膜表面 | 细胞骨架蛋白、血影蛋白 |
| GPI锚定蛋白 | 通过糖基磷脂酰肌醇锚定在膜外侧 | 许多免疫相关蛋白 |
一个典型的动物细胞膜含有数百种不同的蛋白质,它们的总重量可以占到膜重量的50%以上(线粒体内膜甚至可达75%)。膜蛋白的种类和比例因细胞类型而异——神经元的突触膜富含离子通道蛋白,而红细胞的膜则富含血型糖蛋白。
膜流动性的生物学意义
膜的流动性不是可有可无的性质——许多细胞功能直接依赖于它:
- 膜融合。囊泡与靶膜融合(胞吐、胞吞)、细胞融合(受精过程中精子与卵子的融合)都需要两层膜的脂质分子互相混合
- 细胞分裂。动物细胞分裂末期,两个子细胞通过膜在赤道板处的缢缩和融合而分开
- 信号转导。受体蛋白在膜上的聚集是很多信号通路激活的第一步——配体结合后,受体在膜上移动并形成二聚体或多聚体
- 物质运输。载体蛋白在膜上经历构象变化来转运物质,这个过程需要蛋白在脂质环境中具有一定的运动自由度
膜的流动性受温度影响显著。很多生物(特别是鱼类、两栖类等冷血动物)通过调节膜脂质的脂肪酸组成来适应环境温度:低温环境中增加不饱和脂肪酸的比例来保持膜的流动性,这叫恒温适应。
膜的不对称性
膜的两个半层在脂质组成和蛋白分布上都不是对称的。
在脂质方面,大多数动物细胞的膜中,磷脂酰胆碱和鞘磷脂主要分布在外层(面向细胞外),而磷脂酰丝氨酸和磷脂酰肌醇主要分布在内层(面向细胞质)。这种不对称性由专门的翻转酶维持。
在蛋白质方面,几乎所有糖蛋白的糖链都朝向膜外侧——这使糖被只出现在细胞表面而不出现在细胞质一侧。
膜不对称性有明确的功能意义:磷脂酰丝氨酸通常只出现在膜内侧,当细胞发生凋亡时,它被翻转到膜外侧——这正是巨噬细胞识别和吞噬凋亡细胞的信号。
图:流动镶嵌模型结构示意
一个直观的实验:膜蛋白能"漂移"
流动镶嵌模型最有说服力的证据之一是细胞融合实验。科学家用两种细胞——一种用红色荧光标记膜蛋白,另一种用绿色荧光标记——诱导它们融合。刚融合时,红绿荧光各自待在原来的半边;几分钟后,两种颜色均匀混合,说明膜蛋白确实在膜平面上自由移动。
这个实验还有一个容易忽略的细节:膜蛋白的移动不是完全自由的。有些蛋白被细胞骨架"拴住",只能在特定区域内活动;脂筏区域的蛋白移动也相对受限。所以更准确的描述是:膜蛋白能在膜平面内移动,但移动的自由度受细胞骨架和脂筏的调节。这解释了为什么细胞能既保持膜的流动性,又维持膜蛋白在特定区域的分布——比如上皮细胞顶面和基底面的蛋白组成截然不同。
要点回顾
- 流动镶嵌模型:磷脂双层是基质,蛋白质镶嵌其中,脂质和蛋白质可自由移动
- 膜蛋白有跨膜、锚定、外周等不同结合方式,承担运输、信号、识别等功能
- 膜流动性是膜融合、细胞分裂、信号转导和物质运输的物理基础
- 膜两侧在脂质组成和蛋白分布上不对称,由翻转酶等专门机制维持