5.1 细胞骨架的组成与动态组装
5.1 细胞骨架的组成与动态组装
本节摘要:细胞骨架由三类蛋白质纤维组成:微管(直径约25nm)、微丝(约7nm)和中间纤维(约10nm)。微管由α/β-微管蛋白异二聚体组装而成,具有动态不稳定性;微丝由肌动蛋白组装,参与细胞皮层和运动;中间纤维提供机械强度,是最稳定的骨架组分。三者共同构成了细胞的内部支撑和运输网络。
没有骨头,细胞怎么站住
动物细胞没有细胞壁,却能在组织里维持形态、承受挤压、改变形状。答案就是细胞骨架——一套由蛋白质纤维构成的内部"脚手架"。它比真正的骨头灵活得多:可以快速组装、拆解、重组。细胞之所以能爬、能分裂、能运输货物,全靠这套动态骨架。本节从三类纤维讲起,看看它们各自的本领。
学习目标
阅读完本章,你应当能够:
- 比较三类骨架纤维的直径、组成亚基和动态特征
- 解释微管动态不稳定性(踏车现象)的分子基础
- 说明微丝正端和负端的不对称性及其功能意义
- 描述中间纤维的组装特点(无极性、无核苷酸依赖)
三种纤维,三种性格
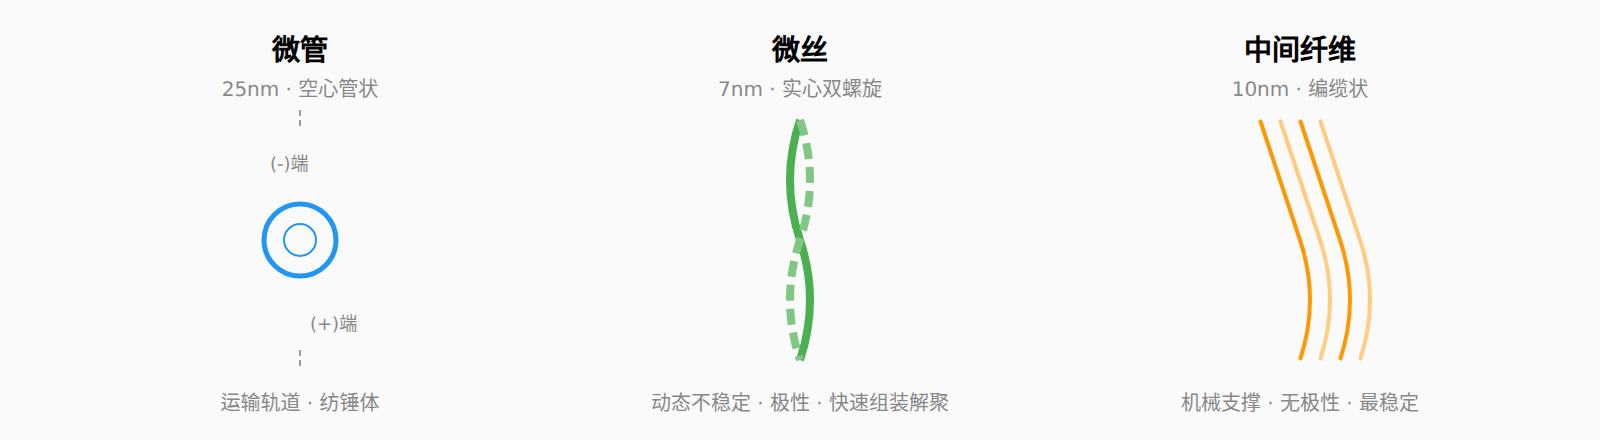
| 特征 | 微管 | 微丝 | 中间纤维 |
|---|---|---|---|
| 直径 | 约25 nm | 约7 nm | 约10 nm |
| 亚基 | α/β-微管蛋白异二聚体 | 肌动蛋白单体 | 各种中间纤维蛋白 |
| 结构 | 空心管状 | 实心双螺旋 | 编缆状 |
| 极性 | 有(正端/负端) | 有(正端/负端) | 无 |
| 动态 | 动态不稳定,快速周转 | 较快,受多种调控蛋白影响 | 最稳定,很少解聚 |
| 功能 | 运输轨道、纺锤体、中心体 | 细胞皮层、迁移、收缩 | 机械强度、核纤层 |
图:三类细胞骨架纤维比较
微管的动态不稳定性
微管由α-微管蛋白和β-微管蛋白组成的异二聚体首尾相连,形成原丝。13条原丝围成一个空心管。微管有极性:α-微管蛋白暴露的一端是负端(通常锚定在中心体上),β-微管蛋白暴露的一端是正端(朝向细胞边缘,生长较快)。
微管在体内外都表现出动态不稳定性:在GTP结合状态下微管倾向于生长(因为GTP-tubulin加到正端),但已经组装的亚基中的GTP会逐渐水解为GDP。GDP-tubulin之间的亲和力较低,使微管倾向于解聚。当正端同时存在GTP帽(顶端几个亚基的GTP还没水解)时,微管继续生长;如果GTP帽丢失(解聚速度偶尔超过了GTP-tubulin的添加速度),微管会快速缩短——这就是"灾难"事件。缩短到一定程度后,微管可能重新获得GTP-tubulin并恢复生长——"救援"事件。
这种动态不稳定性不是缺陷,而是功能所需。细胞分裂时,微管需要快速寻找并附着到染色体上——动态不稳定性使微管能在短时间内"探索"大量空间。
微丝的组装调控
微丝(肌动蛋白纤维)由球状肌动蛋白(G-actin)聚合而成纤维状肌动蛋白(F-actin)。与微管一样,微丝也有极性:正端(plus end)生长更快,负端(minus end)更稳定。
微丝的组装受多种蛋白调控:
- 成核蛋白(如Arp2/3复合物):帮助形成新的微丝分支,在细胞皮层和迁移前缘形成致密的微丝网络
- 加帽蛋白:结合在微丝末端阻止进一步聚合或解聚
- 解聚因子(如cofilin):促进微丝解聚
- 交联蛋白(如filamin):将微丝连接成三维网络
微丝在细胞皮层(紧贴细胞膜内侧的一层致密网络)中特别丰富,为细胞提供形状支撑。在细胞迁移过程中,前缘的微丝网络不断聚合推动膜向前延伸,后部的肌动-肌球蛋白收缩拖动细胞体前进。
中间纤维:最坚固的骨架
中间纤维与前两者不同:没有极性(两端对称),组装不依赖于核苷酸水解,也没有动态不稳定性。一旦组装完成就非常稳定,半衰期可达数小时甚至数天。
中间纤维的蛋白亚基种类很多——核纤层蛋白(核纤层)、角蛋白(上皮细胞)、波形蛋白(间充质细胞)、神经丝蛋白(神经元)等。不同类型的细胞表达不同的中间纤维蛋白,这在中枢神经系统和肿瘤病理诊断中有实用价值——通过检测中间纤维蛋白的类型可以判断肿瘤的组织来源。
核纤层是中间纤维的一个特殊形式——位于核膜内侧,由核纤层蛋白A、B、C组成。核纤层为细胞核提供结构支撑,参与染色质组织和核膜重建。
靶向细胞骨架的药物:双刃剑
微管和微丝的动态组装是细胞分裂的命门,这也让它们成为抗癌药物的经典靶点:
- 秋水仙碱和长春碱:结合微管蛋白,抑制微管聚合,使纺锤体无法形成,细胞停滞在有丝分裂中期。
- 紫杉醇(Taxol):反过来稳定微管,阻止微管解聚,同样阻断纺锤体功能。两种机制殊途同归——都干扰微管的动态不稳定性。
- 细胞松弛素:抑制微丝聚合,常用于实验研究;鬼笔环肽稳定微丝,常用于荧光标记实验。
这些药物的选择性来自一个事实:快速分裂的肿瘤细胞比正常细胞更依赖微管的动态重组。但副作用也随之而来——化疗引起的脱发和神经毒性,正是因为毛囊细胞和神经元也依赖微管运输。理解细胞骨架的动态性,才能理解这些药物的疗效与毒性为何并存。
中间纤维突变与疾病
中间纤维的"稳定"特性在临床上意义重大。角蛋白是上皮细胞的主要中间纤维蛋白,编码角蛋白的基因突变会导致表皮松解——皮肤在轻微摩擦下就起疱、剥脱,因为上皮细胞缺少了机械强度。核纤层蛋白突变则导致核纤层蛋白病(第4章提到)。神经丝蛋白的异常聚集与肌萎缩侧索硬化等神经退行性疾病相关。
这些疾病有一个共同点:突变破坏的是"结构性"蛋白而非"功能性"蛋白,所以病变主要表现为组织脆弱、细胞形态异常,而不是某个代谢途径失灵。这提醒我们,细胞骨架首先是细胞和组织的"承重结构",它的稳定与动态必须同时得到保障。
要点回顾
- 微管(25nm空心管)、微丝(7nm实心螺旋)、中间纤维(10nm编缆)构成细胞骨架
- 微管具有动态不稳定性:GTP帽决定生长/缩短的切换
- 微丝受Arp2/3、加帽蛋白、cofilin等多蛋白调控,在细胞迁移和皮层支撑中发挥核心作用
- 中间纤维无极性、最稳定,核纤层是其特殊形式