8.1 信号接收与转导通路
8.1 信号接收与转导通路
本节摘要:细胞信号转导分为信号接收、信号转导和细胞响应三个阶段。信号分子可以是蛋白质(激素、生长因子)、小分子(类固醇、NO)或离子。细胞表面的受体主要分为G蛋白偶联受体、受体酪氨酸激酶和离子通道型受体三大类,各自激活不同的胞内信号级联。
饿意来袭时,全身细胞如何同步响应
你饿了几个小时后,血液里的血糖开始下降,胰脏的α细胞分泌胰高血糖素,肝脏细胞接收到信号后分解糖原、释放葡萄糖。这个看似平常的生理过程,背后是一整套信号转导装置在几秒钟内完成工作:激素分子(信号)、膜受体(接收器)、胞内级联(放大器)、代谢酶(执行器)。本节带你拆解这套装置的各个部件。
学习目标
阅读完本章,你应当能够:
- 区分四类细胞间信号传递方式(旁分泌、内分泌、突触传递、接触依赖)
- 描述GPCR通路的配体结合→G蛋白激活→效应酶→第二信使→细胞响应的完整链条
- 解释RTK-Ras-MAPK通路中的信号放大机制
- 举例说明离子通道型受体在神经信号中的快速响应
四种信号传递方式
细胞之间的信号传递不只有一种方式,各有不同的空间尺度和时间尺度:
旁分泌。信号分子分泌到细胞外液中,只作用于附近的细胞。生长因子和细胞因子大多属于这类。作用范围有限(几微米到几毫米),持续时间较短。
内分泌。信号分子(激素)进入血液循环,被运送到全身。作用距离远(全身),持续时间长(小时到天)。胰岛素、甲状腺激素、皮质醇都是内分泌信号。
突触传递。神经元在突触间隙释放神经递质,只作用于突触后膜上的受体。信号传递速度极快(毫秒级),作用范围极精确。
接触依赖。信号分子固定在细胞膜表面,只有当两个细胞直接接触时才能传递。Notch信号通路就是接触依赖的经典例子——对胚胎发育中的细胞命运决定至关重要。
G蛋白偶联受体:细胞膜上最庞大的受体家族
GPCR是细胞膜上数量最多的受体家族——人类基因组编码约800种GPCR,占全部药物的约30%的作用靶点。
GPCR的结构特征:7次跨膜的α螺旋(7TM结构),N端在膜外(结合配体),C端在膜内(与G蛋白互作)。
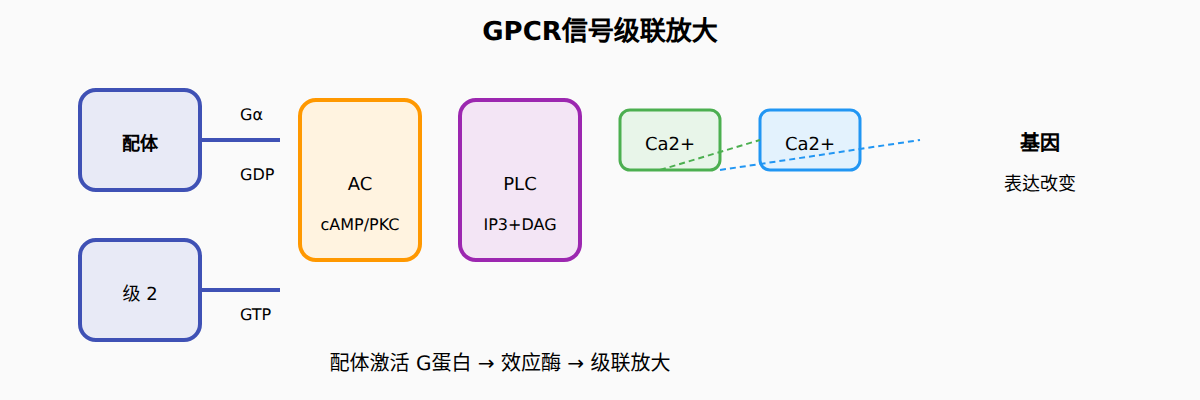
GPCR信号通路的基本步骤:
- 配体结合到GPCR的胞外域,引起受体构象变化
- 受体胞内侧激活异三聚体G蛋白——GDP被GTP替换,Gα亚基与Gβγ解离
- Gα-GTP激活下游效应酶(如腺苷酸环化酶产生cAMP,或磷脂酶C产生IP3和DAG)
- 第二信使(cAMP、IP3、DAG、Ca2+等)激活蛋白激酶或打开离子通道
- Gα的GTP酶活性水解GTP为GDP,Gα重新与Gβγ结合,信号关闭
cAMP是最经典的第二信使之一。一个激活的GPCR可以激活多个G蛋白,每个G蛋白可以激活多个腺苷酸环化酶,每个腺苷酸环化酶可以产生大量cAMP——这种级联放大使一个信号分子最终可以激活数千甚至数百万个效应蛋白。
受体酪氨酸激酶:生长因子的开关
RTK在细胞增殖、分化和存活中起关键作用。经典的例子是胰岛素受体和表皮生长因子受体(EGFR)。
RTK激活机制:配体(如EGF)结合导致两个受体单体二聚化→胞内激酶域相互磷酸化(自磷酸化)→磷酸化的酪氨酸残基成为下游信号蛋白的停靠位点。
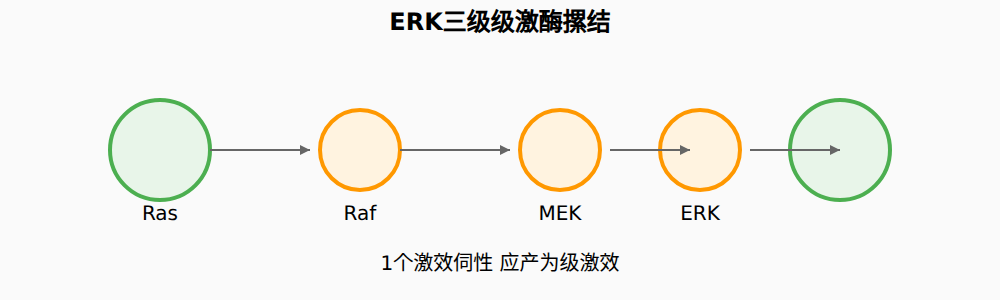
Ras-MAPK级联是RTR最常见的下游通路:Grb2-SOS复合物结合磷酸化的受体→SOS激活Ras(Ras-GTP替代Ras-GDP)→Raf(MAPKKK)→MEK(MAPKK)→ERK(MAPK)→ERK进入细胞核激活转录因子→改变基因表达。
这个三级激酶级联提供了巨大的信号放大:每个激活的Raf可以磷酸化多个MEK,每个MEK磷酸化多个ERK。同时每一级都提供了额外的调控点。
离子通道型受体:毫秒级响应
这类受体本身就是离子通道。配体结合直接打开或关闭通道,离子流动在毫秒内改变膜电位或细胞内离子浓度。
神经肌肉接头的乙酰胆碱受体是经典例子:运动神经元释放乙酰胆碱→结合突触后膜的nAChR→通道打开→Na+流入→膜去极化→肌肉收缩。
这类信号传递的特点是速度快(毫秒级)但不具有放大效应——一个受体打开只允许特定数目的离子通过,不像GPCR/RTK那样可以级联放大。
信号通路的交叉对话
不同的信号通路不是互相孤立的管道,而是交织的网络。一条通路中的蛋白可以影响另一条通路的蛋白——这就是"交叉对话"(crosstalk)。比如cAMP-PKA通路可以磷酸化并调控RTK-Ras-MAPK通路中的蛋白;Ca2+信号可以影响多种激酶和磷酸酶。
交叉对话使得细胞可以对多种信号进行整合,产生精确的、依赖上下文的响应。也正是因为这种复杂性,信号转导网络的扰动可以导致广泛的疾病——癌症就是信号通路失调的典型后果。
信号通路药物:从靶点到临床
对信号通路的理解直接转化为药物。最著名的例子是伊马替尼(格列卫):它靶向BCR-ABL融合蛋白的酪氨酸激酶活性,这种融合蛋白是慢性髓系白血病的驱动突变。伊马替尼使这种白血病的5年生存率显著提高,是"靶向治疗"时代的标志性药物。
另一个例子是EGFR抑制剂。EGFR在多种实体瘤中过度激活(突变或扩增),吉非替尼、厄洛替尼等小分子抑制剂竞争性结合EGFR的ATP口袋,阻断下游Ras-MAPK和PI3K通路。但耐药几乎是必然的——癌细胞可以通过EGFR二次突变(如T790M)、激活旁路通路(如MET扩增)来绕过抑制。这提醒我们,信号通路是网络而非单线:阻断一条,细胞会尝试另一条。
药物靶点总结
| 通路 | 关键节点 | 代表药物 | 适应症 |
|---|---|---|---|
| BCR-ABL | 酪氨酸激酶 | 伊马替尼 | 慢性髓系白血病 |
| EGFR | 受体酪氨酸激酶 | 吉非替尼 | 非小细胞肺癌 |
| BRAF/MEK | MAPK级联 | 维莫非尼 | 黑色素瘤 |
| 免疫检查点 | PD-1/PD-L1 | 帕博利珠单抗 | 多种实体瘤 |
这张表展示了"信号转导知识到药物靶点"的转化链条:理解受体如何激活、信号如何放大、如何被负反馈关闭,就能找到干预的节点。
图:ERK三级激酶级联的信号放大
要点回顾
- 四种细胞间信号方式:旁分泌(局部)、内分泌(全身循环)、突触传递(快速精确)、接触依赖(直接接触)
- GPCR激活G蛋白→效应酶→第二信使(cAMP/IP3/Ca2+)→蛋白激酶→细胞响应
- RTK二聚化→自磷酸化→Ras-MAPK三级激酶级联→核内基因表达改变
- 离子通道型受体:配体结合直接开门,毫秒级响应,无级联放大
- 信号通路之间存在广泛的交叉对话,使细胞能整合多种信号
图:GPCR信号转导的级联放大