1.3 适应、适合度与自然选择
1.3 适应、适合度与自然选择
本节摘要:适合度不是形容词,而是一个计数——某基因型个体在特定环境中平均留下的可育后代数。本节用深色甲虫在火烧林地中的经典情境,把自然选择完整跑成一个可复现的模拟实验,并区分"当前适应"与"适应性进化"、个体选择与群体利益这两对极易混淆的概念。
从一个场景开始
英国工业区的桦尺蛾是教科书常客,这里换成数据更完整的虚构变体以便演示:一片火烧后的黑色林地里,浅色甲虫被鸟发现概率 0.6,深色仅 0.2。问题不是"哪种颜色更好",而是:**两种表型的繁殖成功率差多少?这个差额要多少代才能改变整个群体的构成?**适合度理论给出的答案是精确的,而且可以跑出来。
适合度:从计数到相对值
绝对适合度记为该基因型每个个体平均存活到繁殖期的后代数。为方便比较,通常除以最优基因型的值,得到相对适合度 w;劣势一方的损失量叫选择系数 s = 1 - w。上面的场景里,若浅色甲虫被吃概率 0.6、深色 0.2,存活比 0.4 : 0.8,标准化后浅色的 w = 0.5,s = 0.5——这在自然界属于非常强的选择。
⚠️ 适合度的三个坑:① 它是环境依赖的,换一片没烧的林地,深色反而暴露;② 它衡量的是繁殖产出而非"强壮",一种早熟多产的寄生螨可能胜过长寿少产的大型动物;③ 个体适合度与种群长期存续无关,过度掠夺资源的类型可以适合度极高同时把种群推向崩溃。
演练一:甲虫选择模拟
import random def beetle_selection(N=500, p_dark=0.1, w_dark=1.0, w_light=0.5, gens=40, seed=3): """w_light 由捕食差异折算而来;返回每代深色频率""" rng = random.Random(seed) freq = [p_dark] for _ in range(gens): n_dark = round(N * p_dark) dark = ["D"] * n_dark light = ["L"] * (N - n_dark) # 亲本池:按相对适合度加权存活 pool = [g for g in dark if rng.random() < w_dark] + \ [g for g in light if rng.random() < w_light] if not pool: break p_dark = sum(g == "D" for g in pool) / len(pool) freq.append(p_dark) return freq freq = beetle_selection() for g in (0, 4, 8, 12, 16, 24): print(f"第{g:>2}代 深色频率 {freq[g]:.3f}")
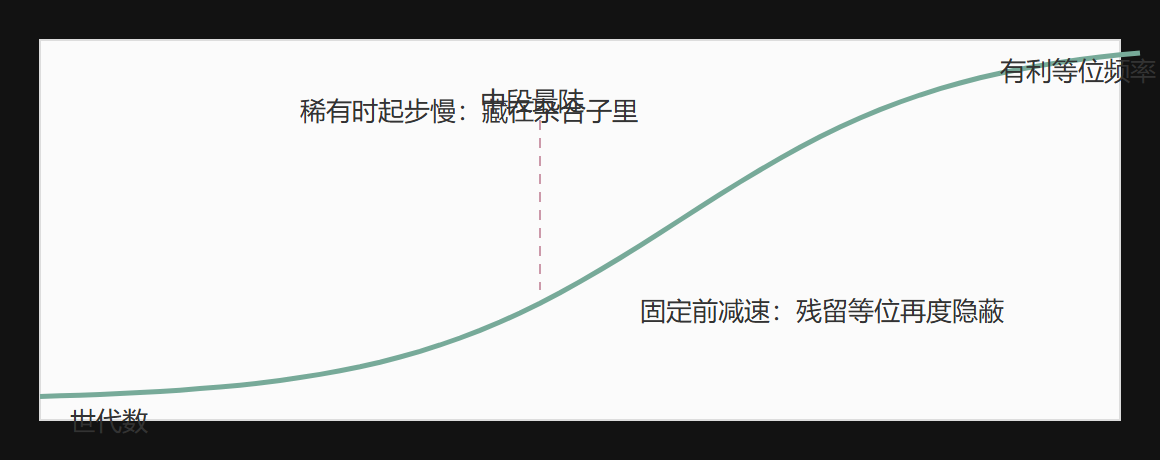
典型输出显示:深色频率从 0.1 出发,约 12 代过半,20 代上下逼近 0.9 后减速——这就是选择的 S 形曲线,先慢(稀有)、中间最快(频率居中时频率改变量最大)、后慢(浅色稀少)。第 3 章的确定性方程会解释为什么中间最快。
演练二:把环境翻过来
同一份代码,把参数换成未烧林地(w_dark=0.55, w_light=1.0),看反向选择:
import random random.seed(3) rev = beetle_selection(N=500, p_dark=0.9, w_dark=0.55, w_light=1.0, gens=30) print("反向选择下深色频率:", " ".join(f"{rev[g]:.2f}" for g in (0, 5, 10, 20, 30)))
深色从 0.9 一路被压回。两段实验合起来说明:适应是"当前环境下的匹配",不是属性。所谓"退化"的器官(洞穴鱼的眼睛)在节能与感染风险的角度上同样是适应。这也是"进化 = 进步"这一直觉最坚实的反驳。
适合度与适应的对照
| 概念 | 定义 | 时间尺度 | 常见误用 |
|---|---|---|---|
| 个体适应 | 当前环境下表型与功能的匹配 | 当代 | 当成永久属性 |
| 适应性进化 | 选择导致群体构成改变 | 多代 | 与个体适应混用 |
| 适合度 | 平均可育后代数的相对值 | 特定环境 | 当成"强壮/高级" |
| 前适应 | 原有性状在新环境中偶然有用 | — | 误当作定向进化 |
本节要点回顾
- 适合度是计数:相对适合度 w 与选择系数 s = 1 - w 是后续所有模型的基本参数
- 选择曲线呈 S 形:频率居中时改变最快,两端减速,模拟可直接复现
- 适应环境依赖:同一性状换环境即成负担,"进步"叙事在定义上不成立
- 个体选择不照顾群体利益,群体层面的解释需要额外机制(第 4 章亲缘选择)
第 1 章到此完成概念地基。第 2 章下沉一层:变异这个"原材料"在 DNA 层面如何产生、如何遗传、又如何被调控系统改写。
图1-3 选择驱动的频率S形轨迹
变式与延伸
把甲虫模拟改成两处,观察选择动力学如何变形。变式一:令浅色与深色的适合度差缩小到 w=0.95,跑 100 代——频率几乎不动,s 与 1/N 的比值决定"选择能否压过噪声",这个比值在第 3 章有正式名字(选择的效率判据 4Ns)。变式二:加入频率依赖——深色稀有时鸟还没学会搜索它,w 随其频率上升而下降,结果是两色稳定共存而非单方固定,负频率依赖是自然界维持多态的主力机制之一(第 8 章红皇后模型是其动态版)。
另一个值得动手的核算:若选择系数 s=0.01(典型野外值),从 p=0.01 走到 0.9 需要多少代?按方程粗算约一千代上下。对照第 6 章桦尺蛾的 s=0.3 只需几十代,可以体会"进化速率"的跨度完全由 s 与 N 的组合决定,不存在统一的"进化速度"。
再补一个容易忽略的对照维度:适合度的三个测度并不等价。存活率只数到繁殖前;交配成功率要乘上繁殖前存活才完整;最终口径是"终身繁殖成功"(lifetime reproductive success),它把存活、交配、育幼全部折成一个数。野外研究里三个测度常给出不一致的排序——交配最成功的雄性可能寿命最短。这提醒我们:文献里"更适合"三个字必须追问口径,否则讨论会在三个不同变量之间打转。