7.2 适应辐射与大灭绝
7.2 适应辐射与大灭绝
本节摘要:多样性的大起大落由两种相反事件驱动:适应辐射在空旷生态位中爆发式成种,大灭绝则周期性清空赛道再给幸存者让出空间。本节讲辐射的两个必要条件与三个经典现场(加拉帕戈斯地雀、维多利亚湖慈鲷、哺乳动物崛起),统计化石记录中的"五次"大灭绝,最后讨论间断平衡之争——长期停滞与快速更替交替的模式。
辐射的两个必要条件
适应辐射要发生,需要同时满足:
- 生态空间空着:新岛屿、新湖盆、竞争对手大灭绝之后;
- 形态可塑性:辐射谱系的关键性状要有足够的变异空间(喙形、颌骨、体型的模块化发育,第 8 章的 Hox 系统是底层供给)。
三个现场:加拉帕戈斯地雀在几百万年内分化出十几个种,喙形横跨小种子钳到树皮昆虫镊,喙的大小与体内等位 ALX1 的变异直接挂钩——辐射停在"生态位填满"为止。维多利亚湖慈鲷更是惊人:一万五千年左右的时间爆出数百种,食藻、刮鳞、咬鳍各占其位(近年基因工作定位到调控颌骨的 svcp/ctif 区域的古老杂交变异——辐射的"原料"可以是预先备好的杂交遗产)。哺乳动物则上演了"等待型辐射:侏罗纪就已小型化起步,但在恐龙阴影下一亿年只维持边角生态位,白垩纪末大灭绝清场后的一千五百万年内才真正铺开目级多样性。
大灭绝:赛道的重启键
化石记录里的属级灭绝率显示出 五 个 尖峰(奥陶纪末、泥盆纪晚期、二叠纪末、三叠纪末、白垩纪末),其中二叠纪末最烈——约八成以上海洋物种消失,其后的恢复用了数百万年。进化含义有两层:其一,灭绝的选择压力可以与日常适应无关(大撞击、大火山省的"环境推土机"效应),生存靠的是运气与宽生态耐受;其二,每次清场都启动新一轮辐射——多样性的历史是"辐射—灭绝—再辐射"的锯齿,不是平滑爬升。
演练一:空生态位填充模拟
import random def adaptive_radiation(n_niches=8, founding=1, gens=60, colonize=0.05, split=0.08, seed=0): """从1个祖先种出发:占领空生态位,已占生态位内再分裂出新种""" rng = random.Random(seed) niches = {i: [] for i in range(n_niches)} # 每个生态位的物种列表 niches[0].append("S0") next_id = 1 timeline = [] for g in range(gens): for i in range(n_niches): for sp in list(niches[i]): # 未占生态位被随机殖民 for j in range(n_niches): if not niches[j] and rng.random() < colonize: niches[j].append(f"S{next_id}"); next_id += 1 # 已占生态位内竞争促分裂 if rng.random() < split / (1 + len(niches[i])): niches[i].append(f"S{next_id}"); next_id += 1 timeline.append(sum(len(v) for v in niches.values())) return timeline tl = adaptive_radiation() print("物种数轨迹(每6代):", " ".join(str(tl[g]) for g in range(0, 60, 6))) print(f"最终物种数 {tl[-1]}(生态位容量 8)")
典型轨迹是先指数窜升、随后被生态位容量压平——增长的刹车不是"不会变",而是"没有空位"。把 n_niches 调大重跑,锯齿形的多样性曲线更明显;这正对应真实化石记录里"机会窗口打开则辐射爆发"的模式。
演练二:间断平衡的最小演示
import random def punctuated_equilibrium(steps=2000, p_evo=0.02, jerk=0.08, drift_mag=0.003, seed=1): """平稳期:微小漂变;稀有事件:大幅跳变。统计形态轴位置""" rng = random.Random(seed) x = 0.0; record = [] for _ in range(steps): if rng.random() < p_evo: x += rng.choice((-1, 1)) * jerk # 成种事件的大步 else: x += rng.gauss(0, drift_mag) # 平稳期小步 record.append(x) return record rec = punctuated_equilibrium() seg = max(rec) - min(rec) long_flat = sum(1 for i in range(1, len(rec)) if abs(rec[i]-rec[i-1]) < 0.005) / len(rec) print(f"形态轴跨度 {seg:.2f}, 其中约 {long_flat:.0%} 的步子处于近似停滞")
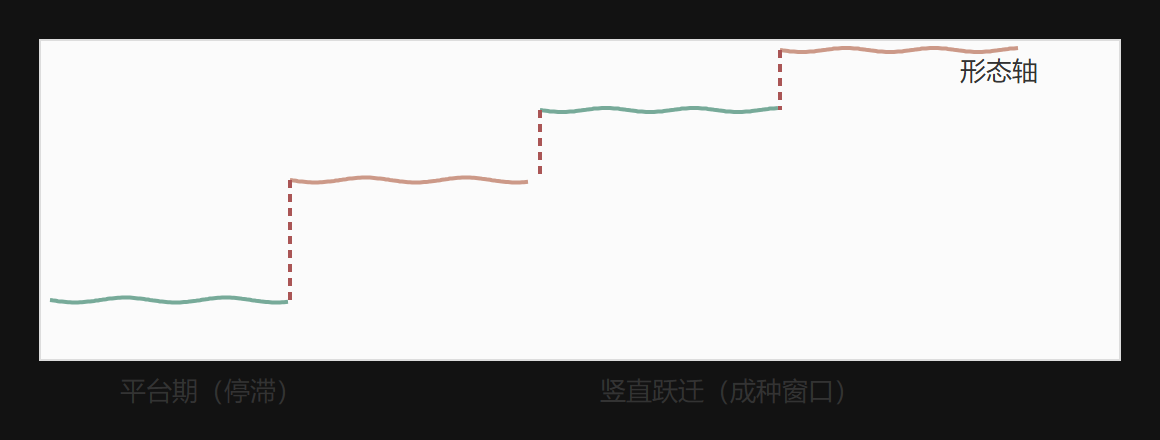
绝大多数时间步在原地小幅徘徊,少数大步贡献了几乎全部位移——这就是 Eldredge 与 Gould 1972 年"间断平衡"(punctuated equilibrium)的数学形象:物种长期形态稳定(stasis),变化集中在成种的短暂窗口。论争的调和点在于:渐变与间断并不互斥——频率层面始终渐变(第 6 章实验可见),形态层面因发育约束与稳定选择而呈现平台;两种描述是不同放大倍率下的同一过程。
辐射与灭绝的对照账
| 维度 | 适应辐射 | 大灭绝 |
|---|---|---|
| 时间尺度 | 数十万至数百万年 | 地质上近乎瞬时(万年级) |
| 驱动 | 空生态位 + 可塑性 | 环境剧变 |
| 选择相关 | 适应主导 | 耐受与运气主导 |
| 对多样性的作用 | 上行 | 下行后反弹 |
💡 关键直觉:把多样性的账本想成"辐射记收入、灭绝记支出"的复式记账。只看收入(渐进堆积)会误判趋势;锯齿形的净值才是真实的宏观演化史。
本节要点回顾
- 辐射 = 空位 × 可塑性,三个经典现场模式一致:先爆发、后撞容量上限
- 杂交可以预置辐射原料,慈鲷的古老变异是例证
- 大灭绝是环境推土机,其后的恢复与再辐射塑造了现代生物区系格局
- 间断平衡与渐变是放大倍率之争,频率层渐变与形态层平台并不矛盾
第 7 章完成宏观图景。第 8 章折回个体发育:形态变化在发育程序里如何被"编程"。
图7-2 间断平衡:平台与跃迁交替