2.3 细胞周期敏感性与同步化
2.3 细胞周期敏感性与同步化
本节摘要:同一种细胞,处在分裂周期里的位置不同,对同样的照射反应可以差两三倍。本节复盘 1963 年第一个年龄响应函数的诞生,梳理各时相敏感性的排序与双螺旋之后的机制解释,并说明实验室如何同步化细胞、这条曲线又如何反过来解释了分次放疗"再分布"原理——定量传统在此获得时间维度。
某天凌晨的离心机旁:同步化技术如何起步
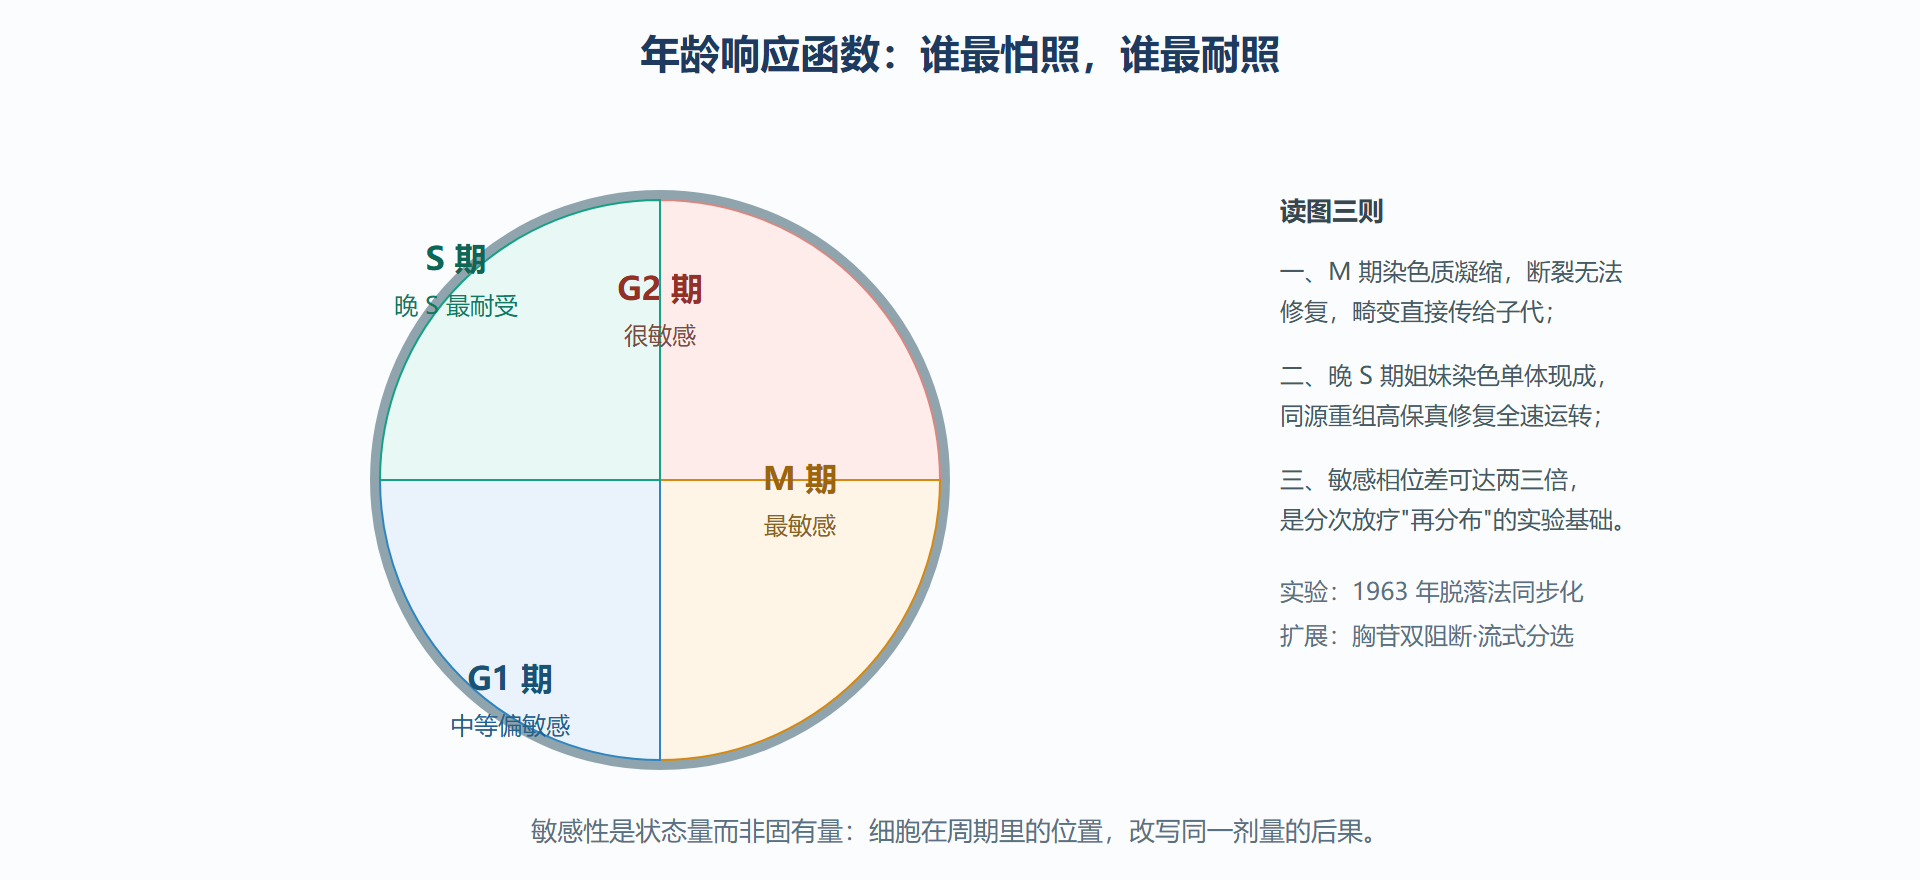
1963 年,特雷西马与托尔马赫发表了一个看似简单却极其难做的实验:让一批海拉细胞"齐步走",停在同一时相,然后在不同时刻照射,分别测存活分数。他们用的是脱落法——分裂期的细胞会暂时变圆、与培养皿的黏附变松,轻轻摇晃培养瓶就能把 M 期细胞收集出来,再放回培养箱让它们以分裂为原点同步推进,此后每隔几小时取一批照射。结果得到一条形状陡峭的曲线:刚分裂完的 G1 期细胞敏感性中等,进入 S 期后抗性逐渐爬升,晚 S 期最耐受,G2 与 M 期最敏感——M 期与晚 S 期的存活分数差距可达两三倍。这条"年龄响应函数"宣告了一件事:辐射敏感性不是细胞的固有常数,而是随生命周期波动的状态量。此后同步化技术不断扩充:过量胸苷双阻断把细胞卡在 G1 与 S 的交界,秋水仙素把细胞拦截在中期,流式分选按 DNA 含量把不同时相的细胞物理分开——每一代技术都把年龄响应曲线描得更细。
为什么分裂期的细胞最脆弱?双螺旋之后的解释链条相当清晰。M 期染色质高度凝缩成染色体,DNA 双链断裂在这团"压缩包裹"里既难被修复机器定位,也难找到同源模板;更关键的是,带损伤的染色体进入分裂会直接导致子代细胞获得致死性的染色体畸变——分配错误、桥接、断片丢失。而晚 S 期恰恰相反:DNA 复制刚完成,同源重组所需的姐妹染色单体现成可用,同源重组这个高保真修复通路正处于"营业高峰",且细胞还有时间在下次分裂前完成修复。机制与现象在分子层面闭合,这是"黑箱定量学"走向"分子机制学"的过渡性时刻——第 3 章的主角们(双链断裂、修复通路)已经在这条曲线背后排队入场。
图:细胞周期年龄响应——各时相的敏感性地图
从实验室到临床:年龄响应如何变成再分布
年龄响应曲线的临床价值,藏在分次放疗的间隙里。一个处于晚 S 期(耐受相)的肿瘤细胞躲过今天的照射,几小时到十几小时后会推进到 M 期(敏感相),等下次照射时恰好站在了刀口上——分次之间的时相流动让耐受细胞不断"轮换上岗",这个现象被称为再分布,是第 6 章 4R 原理的成员之一。再分布对快速增殖的肿瘤有利而对更新缓慢的晚反应组织影响有限,这也是分次治疗"损敌利己"效应的组成部分。当然,现实比模型复杂:肿瘤内部大量细胞处于静止期(G0),不参与时相轮换,也正因如此它们对常规分割相对耐受,成为复发与远处转移的种子库之一。
同步化研究的另一重启示是方法论的。实验室里把细胞卡在单一时相,是为了画出干净的年龄响应曲线;但临床上从未有过"全肿瘤同步"的操作能力,任何同步化药物的毒性都压过了潜在收益。于是这条研究线的落地方式不是"把细胞同步起来再照",而是"承认时相异质性,用多次照射去覆盖所有相位"。这是一个典型的转化模式:实验设计追求变量隔离,临床应用追求异质性覆盖,两者的差距本身就是信息——它告诉你再分布的收益上限在哪里(快速增殖肿瘤受益大、慢增殖组织受益小),也告诉你为什么单靠再分布无法根治乏氧与静止期细胞这两个更顽固的难题,后两者分别由第 7 章的再氧合与综合治疗章节接手。
数字锚点与常见误读
补几个能落地的数字锚点。典型人体细胞周期的量级:G1 约十小时上下(变异最大,很多肿瘤细胞此期缩短),S 期约七八小时,G2 约三到五小时,M 期最短,不到一小时——这也是脱落法只收集 M 期细胞时产率很低的原因,一整瓶细胞里同一时刻处于分裂期的不过百分之几。潜在倍增时间与实际倍增时间的差值(细胞丢失因子)是肿瘤动力学的常用参数:不少肿瘤每天有大量细胞死于凋亡与脱落,实际增殖远慢于产能,这让"时相轮换"的速度在方案间差异极大,也解释了为什么再分布红利必须在具体瘤种上实测而不是想当然。常见误读也有两条。误读一:"同步化治疗"是把患者细胞同步后再照——临床上从未可行,同步化是实验手段不是治疗手段。误读二:"晚 S 期耐受所以肿瘤照不死"——耐受是相对的,多给剂量照杀不误,问题只是剂量窗变窄;年龄响应改变的是方案的收益结构,不是生死判决。
问题:静止期细胞完全不参与时相轮换,它们后来怎么被解决的?
G0 细胞确实是再分布框架外的钉子户。它们的解法不在时间维度而在 recruitment(招募)与联合:肿瘤被照射后细胞丢失,生长压力下降,部分静止细胞会被"招募"回增殖池——这正好接上分次的再氧合与再分布的动态;对残余的静止储备,则交给综合治疗:化疗药对非增殖细胞本就不敏感,但抗血管、免疫与靶向策略不挑分裂状态(第 7 章的接力)。换句话说,年龄响应曲线管"在跑的细胞",静止细胞由另外两条战线包抄——这正是分章讲述的体系知识第一次显出合围的形状。
机制细节补遗:为什么 G2 期比 G1 期更敏感
年龄响应里还有一个值得单独解释的落差:同为分裂准备期,G2 的敏感性明显高于 G1。原因在两个时间账户上。第一是修复预算账户:G1 细胞刚经历分裂,还有整个 S 期的时长可以修复损伤——预算充足;G2 细胞距分裂仅剩几小时,修复机器必须在极短窗口内清场,任何延误都意味着带着断链进入 M 期。第二是通路可用性账户:G1 期没有姐妹染色单体,同源重组关闭,只剩 NHEJ 一条腿走路,错修率上升;G2 虽然两条通路都在,但时间预算已经耗尽。两个账户合起来,把 G2 推向了仅次于 M 期的敏感位。这个细节的临床投影在检查点研究里很有分量:用药物把细胞"扣"在 G2 期再照射,或反过来强制细胞跳过 G2 检查点带伤入 M,都是活跃的增敏策略——时相敏感性不只是描述性知识,它的每个落差都对应一个潜在干预点。
本节要点回顾
- 年龄响应函数是时间维度的定量地图:M 期最敏感、晚 S 期最耐受,G1 中等,差距可达两三倍;
- 同步化技术的三件套:有丝分裂脱落法、胸苷双阻断、流式分选,分别利用黏附差异、代谢拦截与 DNA 含量差异;
- 机制已闭合:凝缩染色质阻断修复与畸变致死解释 M 期敏感,姐妹染色单体支持同源重组解释晚 S 耐受;
- 再分布是曲线的临床投影:分次间隔让耐受细胞轮换进敏感相位,快速增殖肿瘤受益最大;
- 静止期细胞是曲线之外的问题:G0 细胞不参与时相轮换,其解决要等综合治疗与靶向策略登场。
下一章我们跨过 1953 年:双螺旋结构揭晓后,"靶"有了分子实体,"修复"有了通路细节,放射生物学被彻底重塑成一门以 DNA 为中心的机制科学。