2.2 生化改造车间:生物转化与代谢活化
2.2 生化改造车间:生物转化与代谢活化
本节摘要:生物转化(biotransformation)是机体对外源化学物的酶促改造,分 I 相(氧化、还原、水解——暴露功能基团)与 II 相(葡萄糖醛酸化、硫酸化、谷胱甘肽结合等——增加水溶性促排)。大众直觉认为代谢就是解毒,毒理学的答案更冷峻:代谢是改造,方向可解毒也可活化。本节以对乙酰氨基酚肝毒性、苯并芘致癌活化、双硫仑样反应三个案例拆解这套车间的双面性,并解释酶诱导与酶抑制如何让"同药不同命"。
上一节毒物跨膜入血,本节它被送进肝脏——身体里最忙碌的化工厂。这一节解释的机制,将在第 5 章(肝损伤)与第 4 章(化学致癌)被反复调用。
一、两相反应:先暴露把手,再装上钩子
I 相反应由细胞色素 P450 酶系(CYP)主导,通过氧化(少数情形还原或水解)给分子插入氧原子或暴露羟基、羧基等极性基团——化学上更"活泼"了,但未必更安全。II 相反应则把葡萄糖醛酸、硫酸、谷胱甘肽、氨基酸等内源分子接上去,分子量与水溶性大增,便于经尿或胆汁排出。两相通常是流水线:先 I 后 II。
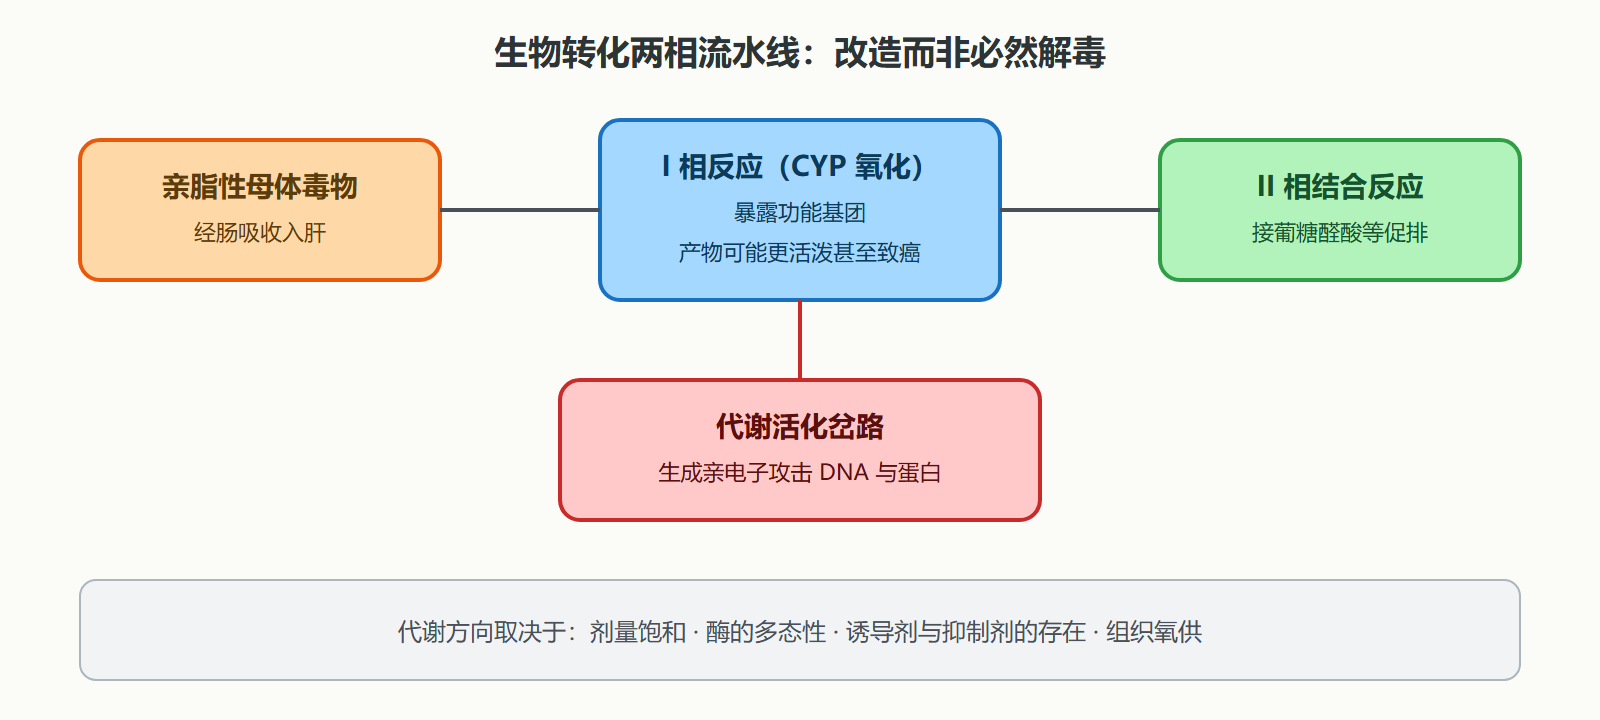
CYP 酶系是一个超家族,人体肝脏中 CYP3A4、CYP2D6、CYP2E1、CYP1A2 各管一批底物。治疗剂量的多数药物由 2-3 种 CYP 负责清理,酶的遗传多态性(1.3 节的伏笔)由此直接改写毒性结局。
二、三桩名案
案一:对乙酰氨基酚——解毒通路饱和后的毒性爆发
背景:全球使用最广的解热镇痛药,安全窗口大,却是欧美急性肝衰竭的头号药物原因。操作与过程:治疗剂量下,它大部分经 II 相(葡萄糖醛酸化与硫酸化)清除,小部分经 CYP2E1 氧化成强亲电子的代谢物,后者随即被谷胱甘肽结合中和。单次超量(成人约 7.5–10 克起,个体有差异)后,II 相通路饱和,CYP2E1 通路占比升高,谷胱甘肽储备被耗竭,剩余代谢物与肝细胞蛋白的巯基共价结合,引发线粒体损伤与肝坏死(机制细节见 3.1 与 5.1)。结果:中毒后 24–72 小时转氨酶飙升。解读:这不是"毒物变毒",而是"解毒容量被剂量击穿"——剂量决定毒性的教科书演绎。变式与救治:特效解毒剂 N-乙酰半胱氨酸是谷胱甘肽的前体,在中毒后 8–10 小时内给药效果最佳,本质是给耗竭的解毒库"补货"。
案二:苯并芘——活化后才成为致癌物
苯并芘本身不直接致癌。经 CYP1A1/1B1 环氧化、再经环氧化物水化酶作用,生成二醇环氧化物——这个终致癌代谢物与 DNA 鸟嘌呤共价加合,启动第 4 章的致癌多阶段进程。香烟烟雾中苯并芘的"罪",是在肝和肺的组织里"现场作案"完成的。凡是需要代谢活化才显毒性的物质,其毒性都受活化/解毒两条通路的速度比调节——这正是 1.3 节"物种差异"的生化底座。
案三:双硫仑样反应——酶抑制的即时课堂
双硫仑本是戒酒药,它抑制乙醛脱氢酶,饮酒后乙醛蓄积,出现潮红、心悸、低血压。部分头孢菌素(如头孢哌酮)有类似抑制活性——"头孢配酒,说走就走"这句急诊俗语,机制就是乙醛这个 I 相氧化中间产物的急性蓄积。这个案例同时展示了酶抑制作为联合作用(1.3 节的协同)最常见的发生机制:抑制别人的代谢酶,等于放大别人的剂量。
三、诱导与抑制:酶车间的人事变动
- 诱导:利福平、苯巴比妥、长期饮酒等上调 CYP 表达。 smokers 的 CYP1A2 活性更高,咖啡因代谢更快;慢性饮酒诱导 CYP2E1,使人对乙酰氨基酚的活化产物更多——饮酒人群的解热镇痛药肝毒性风险因此上调。
- 抑制:西柚汁中的呋喃香豆素抑制肠道 CYP3A4,可使某些钙拮抗剂的生物利用度翻倍以上——"食物-药物相互作用"栏目背后的毒理学。
# 用一个两通路模型量化"剂量击穿解毒库"的思路(数值演示) glutathione = 8.0 # 谷胱甘肽当量(相对单位) dose = 15.0 # 代谢当量进入车间 phase2_capacity = 10.0 # II 相每单位时间可清除量 cyp_product = max(0.0, dose - phase2_capacity) * 0.15 # 溢出部分经CYP产生活性代谢物 bound = min(cyp_product, glutathione) # 被谷胱甘肽中和的部分 escape = cyp_product - bound # 逃脱中和、攻击蛋白的部分 print(f"逃脱攻击量 = {escape:.2f}") # dose=5时输出0;dose=15时输出>0
这段两行算术抓住急性肝毒性的阈值感:低于饱和剂量,谷胱甘肽全部兜住;超过后,伤害随剂量非线性放大。真实过程当然更复杂(谷胱甘肽合成、再生、线粒体通路),但"容量击穿"是这个现象的第一近似。
💡 关键直觉:代谢酶不是解毒酶,是改造酶。 判断一个代谢产物的善恶,要看它离开车间时的化学形态,而不是"代谢了"这个动作本身。
本节要点回顾
- I 相暴露基团、II 相促排,两相流水线以 CYP 酶系为枢纽。
- 代谢双向性:对乙酰氨基酚的活化伤肝、苯并芘的活化致癌、乙醇的中间产物乙醛蓄积,都是"改造"而非"解毒"的证据。
- 剂量饱和击穿解毒通路是急性药物性肝损伤的通用剧本;N-乙酰半胱氨酸补货谷胱甘肽是对应解法。
- 诱导与抑制使联合暴露的毒性偏离简单相加,西柚汁与头孢配酒是日常版案例。
- 酶的多态性把 1.3 节的"个体差异"落到分子层面,也是第 7 章人源化替代模型的立论基础。
改造之后,毒物与它的代谢产物需要撤离现场。下一节讲三条排泄通路、肠肝循环的"二进宫",以及毒代动力学模型如何把 ADME 压缩成几个可计算的参数。
常见问答
问:为什么"解酒药"解不了酒? 乙醇的清除受 ADH 酶的零级动力学限制——速率恒定,不因药物提速。市面产品的多数成分只对症(缓解头痛、补充电解质),血液酒精曲线本身不变。"喝酒脸红"人群的乙醛脱氢酶变异还使乙醇毒性中间物蓄积更久,风险更高而非更低。
问:葡萄柚汁的影响有多大? 对肠道 CYP3A4 底物(部分钙拮抗剂、他汀类),一杯常规量可使生物利用度成倍上升,效应持续约一天(酶再生需要时间)。这是食物-药物相互作用里最经典且可复现的案例,机制正是本节的酶抑制。
问:代谢活化能被阻断吗? 理论上可以(CYP 抑制剂),但 CYP 家族管理着大量内源物质与药物,全局抑制的代价太大。现实策略是反向的:给解毒端补货(N-乙酰半胱氨酸补谷胱甘肽)——这也是案一给出的标准答案。