3.1 第一次接触:毒物与靶分子的相互作用
3.1 第一次接触:毒物与靶分子的相互作用
本节摘要:毒效动力学的起点是毒物(或其活性代谢物)与靶分子的结合,靶分子主要有四类:受体、酶、载体(转运蛋白)与 DNA。结合方式分三种——可逆占领、不可逆共价修饰、竞争性伪装。本节逐一拆解,用有机磷抑制乙酰胆碱酯酶、甲基汞伪装蛋氨酸、二硫化碳交联微管蛋白三个案例演示"作案手法",并用一段可运行的占领分数计算说明生物放大级联:为什么纳摩尔级的结合能造成器官级的后果。
第 2 章追到靶部位的"毒物抵达现场",本节看它与谁接触、如何下手。这是把"剂量"翻译成"效应"的分子环节。
一、四类靶分子与三种手法
毒物分子找到靶分子后,手法不外乎三种:
| 手法 | 结合性质 | 后果特征 | 代表案例 |
|---|---|---|---|
| 占领激动/拮抗 | 可逆,非共价 | 效应随浓度升降,可被竞争剂顶替 | 苏曼毒蕈碱受体激动;箭毒阻断乙酰胆碱受体 |
| 共价修饰 | 不可逆 | 靶分子需要重新合成才能恢复 | 有机磷磷酰化乙酰胆碱酯酶 |
| 伪装底物 | 借用转运/代谢系统 | 被主动运进本不该进的区域 | 甲基汞-半胱氨酸复合物伪装蛋氨酸过血脑屏障 |
四类靶分子中,受体与离子通道负责信号开关,酶负责化学转换,载体负责物流,DNA则既是靶又是遗传账本(第 4 章专场)。
案一:有机磷——酶的不可逆"锁死"
有机磷农药(第 6 章名录常客)的磷原子对丝氨酸羟基有强亲和力,与乙酰胆碱酯酶活性中心的丝氨酸共价磷酰化,酶被锁死。乙酰胆碱无法水解,在突触间隙蓄积,表现为毒蕈碱样症状(瞳孔缩小、流涎、支气管分泌)、烟碱样症状(肌颤)与中枢症状(昏迷)。三个毒理学要点:其一,酶失活是不可逆的,恢复依赖新酶合成(数周),所以"血药浓度正常但症状持续"在此完全合理;其二,共价结合有时间维度——"老化"概念指磷酰基在酶上发生脱烷基后,肟类复能剂(氯解磷定)再也无法把它摘下来,因此复能剂有明确时间窗;其三,诊断本身利用了靶分子:测全血胆碱酯酶活性,就是直接测"被害者"的状态而非"凶手"的浓度。
案二:甲基汞——载体系统的"假通行证"
甲基汞在体内与半胱氨酸形成复合物,空间构象酷似蛋氨酸,被氨基酸转运体主动运过血脑屏障与胎盘屏障(2.3 节的屏障规则在这里被攻破)。这是"伪装底物"手法的范本:毒物不攻击屏障,而是出示伪造证件。镉-金属硫蛋白复合物经肾脏近曲小管重吸收也是同一套路,解释了镉的肾靶向蓄积(5.2 节)。
案三:二硫化碳——交联细胞骨架
二硫化碳(粘胶纤维工业溶剂)的代谢产物碳二硫代氨基甲酸酯与蛋白氨基交联,尤其是神经微管蛋白,形成共价交联物。轴浆运输依赖微管轨道,交联直接瘫痪"物流系统",导致中枢与周围神经病变。此案说明靶分子不必是经典受体——任何对细胞生存关键的蛋白都可能中招。
二、占领分数与生物放大:纳摩尔撬动器官
可逆结合服从占领分数关系:受体被占领的比例 = 游离配体浓度 除以 (解离常数 + 游离配体浓度)。当一个激动剂只占领了 5% 的受体,效应却可能接近一半——因为下游是级联放大。亲手算一遍最直观:
# 毒蕈碱受体激动剂的占领分数与效应强度(数值演示) Kd = 5e-9 # 解离常数 5 nM(亲和力度量) for conc in [1e-9, 5e-9, 5e-8]: occ = conc / (Kd + conc) eff = occ ** 0.4 # 级联放大:效应随占领的超线性增长(示意指数) print(f"浓度 {conc*1e9:4.0f} nM -> 占领 {occ*100:5.1f}% 效应 {eff*100:5.1f}%") # 输出:1 nM -> 16.7% 47.6%;5 nM -> 50% 65.9%;50 nM -> 90.9% 96.2%
浓度仅升高 50 倍,效应就从约 48% 冲到 96%;而占领只有 17% 时效应已近半。生物放大由此得名:受体下游的酶级联(G 蛋白、第二信使、蛋白激酶链条)每一级都在放大信号。这解释了毒理学里大量"极低剂量强效应"的现象,也是内分泌干扰物低剂量争议(第 8 章)的机制背景——非单调剂量-反应曲线多见于带级联与反馈的靶系统。
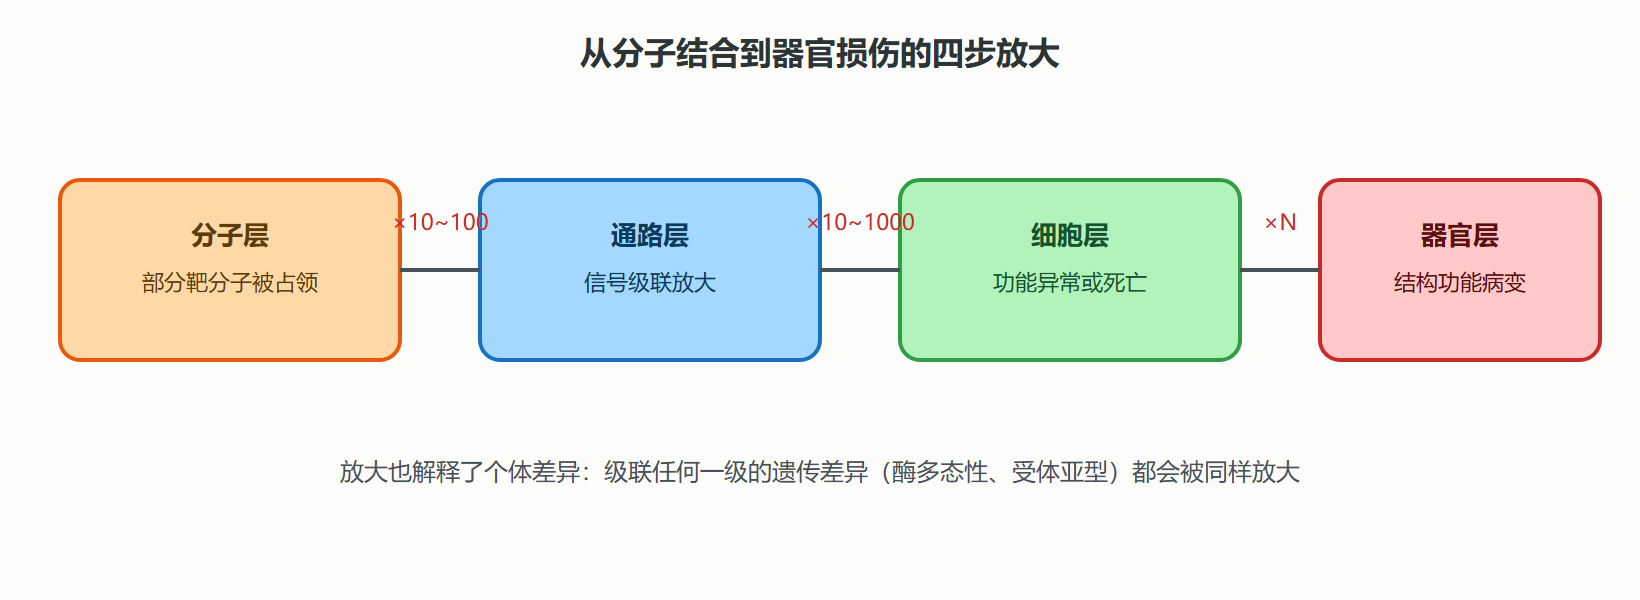
⚠️ 常见坑:见到"测不出血中毒物浓度但症状明显"就否定中毒诊断。靶分子是"被害者",凶手可以早已离开(2.3 的长半衰期反面:短半衰期毒物如某些硫化氢暴露)。正确的取证对象是靶分子的状态(如胆碱酯酶活性、碳氧血红蛋白)。
本节要点回顾
- 三种结合手法:可逆占领、不可逆共价、伪装底物;手法决定恢复方式与时间窗。
- 四类靶分子里 DNA 单列第 4 章,受体/酶/载体是本章主角。
- 有机磷案展示了不可逆抑制、酶老化与"测被害者"的诊断逻辑。
- 生物放大级联让低占领产生高效应,是非单调剂量-反应的机制土壤。
- 靶分子状态(而非毒物浓度)常常才是正确的生物标志物——这一思想贯穿第 7、8 章。
靶分子被扰动后,细胞面临命运抉择。下一节看四张"死亡证明"如何签发。
常见问答
问:可逆结合的毒物中毒为什么停暴露后恢复快? 因为靶分子本身未受损,配体解离后功能即恢复;而不可逆共价修饰(有机磷)必须等新酶合成。这个差别直接决定了治疗窗口的长度与随访计划。
问:受体储备是什么意思? 很多组织拥有的受体数远超产生最大效应所需,部分占领即可满效——这正是生物放大的另一面。它解释了为何低占领即高效应,也解释了为何某些组织对激动剂毒性特别敏感(储备少的组织先失守)。
问:靶分子不明的新毒物怎么研究? 标准路线是反向的:从表型(细胞死亡方式、氧化应激标志)回溯通路,再用活性导向的化学蛋白质组学捕捉共价结合的蛋白。本节的三种手法分类在这类研究里就是检索框架。
延伸思考
从占领分数到受体亚型:同一递质家族常有多个亚型,分布在不同组织、下游接不同级联。毒物对亚型的选择性决定了它的靶器官谱——这是"为什么偏偏伤这个器官"在分子层的答案之一,也解释了同类药物副作用的差异分布。
靶分子数量也是剂量-反应的一部分:酶、受体、载体的体内丰度决定了"打满靶位"所需的分子数。丰度高的靶(如红细胞内的血红蛋白)需要大剂量才见效应,丰度低的信号分子则一触即发——第 5 章器官选择性的又一层解释。