1.2 从滤器到冷冻电镜:病毒学如何学会追踪
1.2 从滤器到冷冻电镜:病毒学如何学会追踪
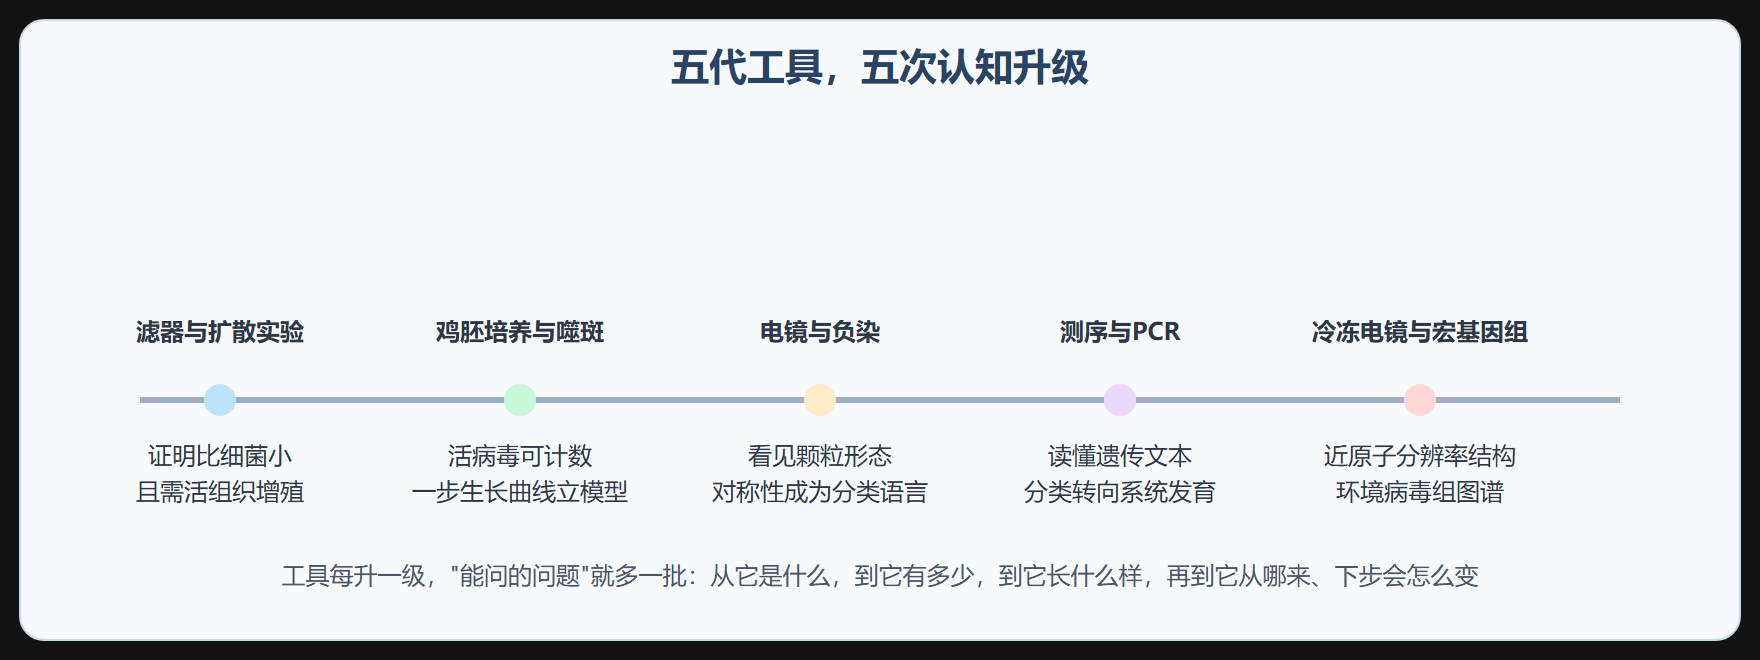
一句话结论:病毒学史几乎等于一部工具进化史——滤器证明"它比细菌小",噬斑让"数得清"成为可能,电镜让"看得见"落地,测序与冷冻电镜让"读得懂、算得出"成为现实。本教程后面所有知识,都是这五代工具的产物。
故事从一次"过滤失败"说起。1892 年伊万诺夫斯基处理烟草花叶病榨汁时,用张细菌滤器过滤,滤液依旧能让健康烟叶发病。按当时范式,病原要么是细菌要么是毒素;他倾向于 toxin,并在论文里猜测滤器有裂缝。六年后贝杰林克重复实验,做了个关键的对照:滤液在琼脂凝胶中扩散时,致病因子能随扩散前沿移动——毒素是小分子,不该这样"爬";他又证明该因子只能在活的植物组织里增殖。贝杰林克给它起名 contagium vivum fluidum,活的传染液。这两位一个错过了新世界,一个敲开了门,差别不在手艺,在于谁肯让证据推翻范式。
第二代工具:培养与计数,让病毒学变成定量科学
光知道"有个东西"不够,要能数。二十世纪上半叶两项技术解决了计数问题。一是鸡胚培养:流感病毒能在鸡胚尿囊腔里扩增,疫苗生产至今仍在用这条产线。二是噬斑试验:把病毒稀释液铺在单层细胞上,加盖琼脂限制扩散,一个感染性颗粒的后代会在单层上"吃"出一个透明斑。数斑块,就等于数出了活病毒颗粒——噬斑形成单位这个概念沿用至今,是滴度、疫苗效价、药物半数抑制浓度测量的基础。配套的血凝试验利用流感病毒凝集红细胞的可见现象,把检测变成肉眼可读。
一个常被低估的细节:噬斑试验还给了一场著名论战提供了弹药。 Ellis 与 Delbruck 用"一步生长曲线"证明噬菌体感染存在潜伏期,随后爆发式释放,而不是匀速出芽——病毒复制的"装配线"模型由此确立。这直接决定了本教程第 4 章讲复制周期时"先合成部件、后集中组装"的叙事顺序。
第三代与第四代:看见形状,读出序列
电子显微镜在 1930 年代末第一次拍到烟草花叶病毒的照片,杆状颗粒清清楚楚;随后负染技术让噬菌体的头尾结构、二十面体衣壳的几何对称逐一显形。形态曾在半个世纪里充当分类主角——"有包膜还是裸露、螺旋还是二十面体"至今仍是描述病毒的常用词。
真正的分水岭是测序。1977 年桑格等人测完噬菌体 phiX174 的全长基因组,只有五千余个碱基,却是第一次完整读出一个物种的全部遗传信息。此后分子克隆、PCR、宏基因组测序接连到来,分类学从"看形状"转向"比序列":International Committee on Taxonomy of Viruses(ICTV)如今按基因组和蛋白的序列同源性划realm、kingdom、class,与宿主共分化历史也能从序列里读出来。第 6 章的族谱完全建立在这条工具线上。
第五代:冷冻电镜与结构生物学时代
X 射线晶体学时代(1980 到 2000 年代)解析了大量衣壳与酶的结构,但包膜病毒的表面糖蛋白既难结晶又不稳定。冷冻电镜把蛋白溶液速冻在薄冰层里,单颗粒重构绕开了结晶瓶颈;2010 年代直接电子探测相机带来"分辨率革命",如今刺突蛋白、聚合酶复合体都能在近原子分辨率下被捕获,还能排出构象变化的连续帧。新冠疫苗设计里"把刺突稳定在融合前构象"的策略,完全建立在结构生物学给出的原子级图纸之上——第 8 章会回到这个案例。
与此同时,宏基因组测序让病毒学进入"看不见也能研究"的阶段:直接从海水、土壤、粪便宏基因组数据里拼装病毒基因组,已经把已知病毒的种类放大了几个数量级。海洋中噬菌体的数量级在每升十亿以上,它们每天都在调节浮游生物种群、驱动碳循环——"病毒学等于病原学"的印象,在生态尺度上根本站不住。
方法论遗产
回看这条工具链,有三条经验贯穿本教程。第一,对照实验设计决定结论质量:贝杰林克的凝胶扩散对照、一步生长曲线的同步感染设计,都是低成本高回报的典范。第二,测量手段定义学科边界:没有噬斑就没有定量,没有测序就没有系统学,没有结构就没有理性药物设计。第三,范式滞后于工具是常态——"活的传染液"这种别扭的名字能沿用几十年,正说明旧框架装不下新实体。你后面在任何一个章节卡壳时,不妨退一步问:这个问题是哪一代工具打开的?当时的证据能支撑到哪一步?
一个值得记住的数字观:噬斑测的是"有感染性的颗粒数",电镜数的是"颗粒总数",两者之比(对流感常低到几十比一)说明大多数子代颗粒存在装配缺陷。读任何滴度数据时先想清楚它测的是哪一个。
方法史的三条横向规律
把五代工具并排看,能提炼出三条超越病毒学的规律。第一,测量精度决定争论的分辨率:滤器时代只能争论"是不是细菌",电镜时代开始争论"是不是晶体样的颗粒",测序时代才能争论"种内准种结构"——很多旧争论不是被说服终结的,是被新工具的分辨率"蒸发"的。第二,间接推断常先于直接观察:贝杰林克靠扩散与增殖两个间接性质就锁定了"可滤过活病原"的核心特征,比电镜直接看到颗粒早了四十年;今天宏基因组学的"序列推断病毒存在"仍在重复这个模式——先有影子,后有实体。第三,工具普及速度决定学科民主化程度:噬斑技术把病毒学从少数实验室扩散到各国公共卫生系统,测序价格下降又把它进一步扩散到中学与社区实验室——技术史同时是一部参与史。
读者可以用这三条规律对照自己的领域:你所在学科的当前争论,有多少其实是工具分辨率的暂时局限?这个问题本身,就是科学史训练最实用的产出。
给读者的工具史时间轴速记
压缩版时间轴供复习:1890 年代滤过性病原(贝杰林克)、1935 年烟草花叶病毒结晶(斯坦利)、1939 年首张电镜照片、1940 到 50 年代噬菌体学派与一步生长曲线、1975 到 77 年测序起点(噬菌体基因组)、1980 到 90 年代 PCR 与分子克隆普及、2000 年代宏基因组兴起、2010 年代冷冻电镜分辨率革命、2020 年代结构辅助的疫苗快速设计。十个节点对应十次能力跃迁,每个节点之后的十年都是"新工具批量产出新知识"的丰收期——记住这个节奏,比记住任何单个年份更重要。
最后补一句关于"测量与实体的差距":噬斑计数假设"一个斑等于一个活颗粒",但两个颗粒共感染同一细胞也只产一个斑、缺陷颗粒辅助共感染则放大斑数——计数从来不是"数东西",而是"数事件"。带着这个意识读任何病毒定量数据,你会比多数初学者多问出一层正确的疑问。