3.1 吸附:受体识别的分子握手
3.1 吸附:受体识别的分子握手
一句话结论:吸附分两步——低亲和的随机撞接(可与任何带电荷的表面发生)与高特异的受体锁定;受体配对决定病毒能感染谁、感染哪个组织,也是中和抗体拦截病毒的第一道关卡。
先讲一个真实场景。2020 年初讨论新冠为何比 SARS 更易传播时,结构生物学家做的第一件事是比较两种冠状病毒刺突的受体结合结构域与同一受体(血管紧张素转化酶二)的结合面。结论之一是新冠的受体结合结构域具有"摇摆开放"的构象灵活性,且接触面关键残基变了几个,亲和力提高;再加上病毒载量动力学与上呼吸道嗜性的差异,传播链就此改写。这个场景说明:吸附这一步,是病毒与宿主关系中最"分子决定论"的一环。
两步吸附动力学
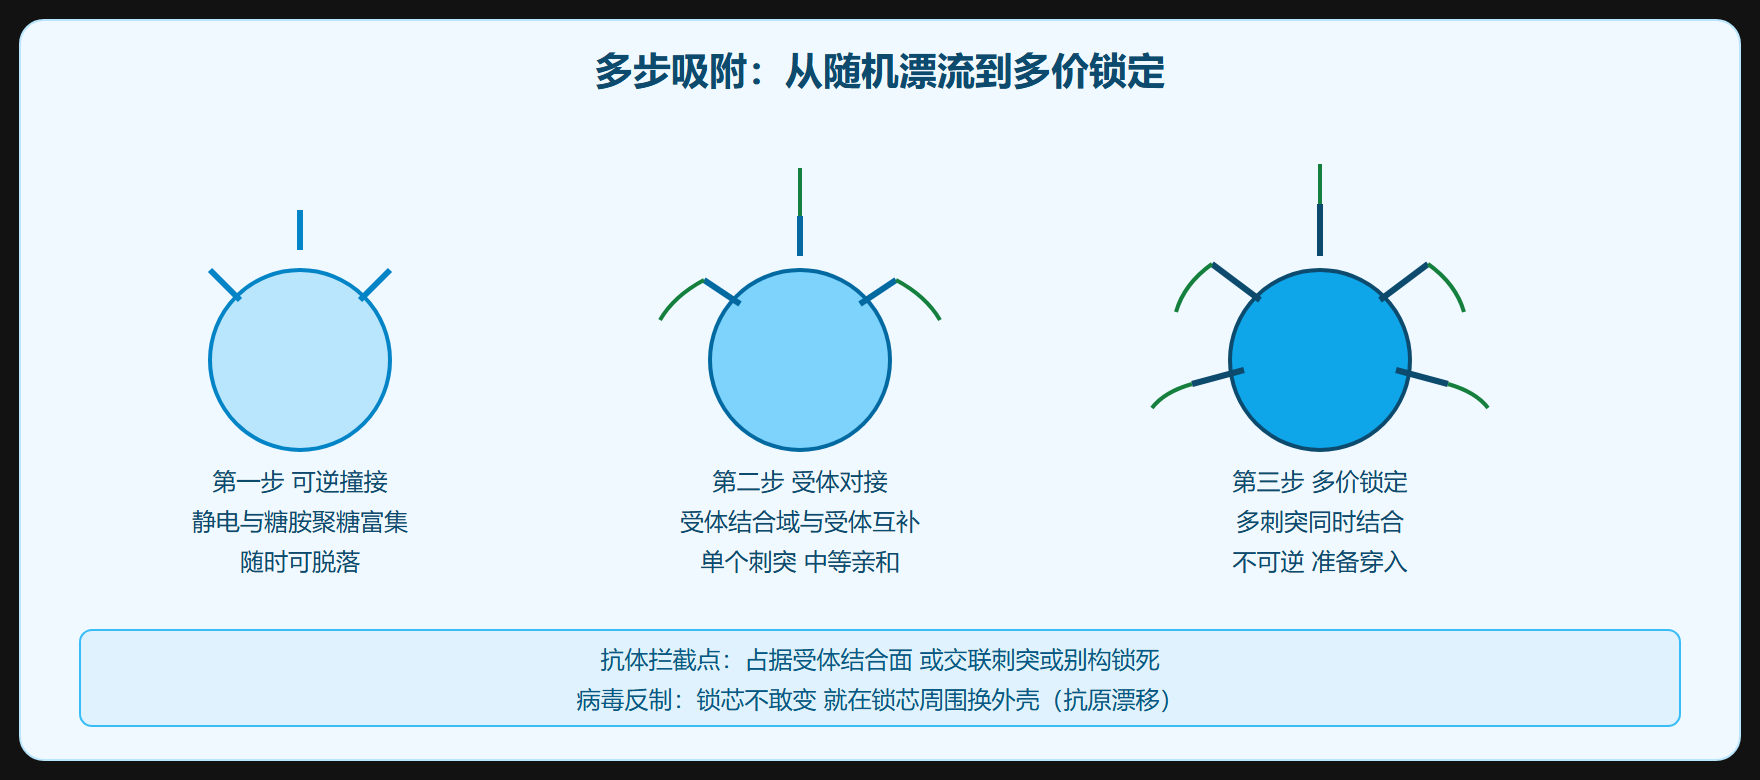
病毒颗粒没有运动器官,靠布朗运动漂流。第一接触是可逆的、非特异的:静电作用、糖胺聚糖(如硫酸乙酰肝素)富集区先把颗粒"钓"到细胞表面附近,这一步对很多病毒是提高局部浓度的前置环节。第二接触才是不可逆的特异结合:刺突上的受体结合结构域与受体形成结构互补的界面,多个刺突同时结合后(多价效应),解离概率降到几乎为零。多价结合是关键:单价亲和力中等的相互作用,多个拷贝齐上后整体结合强度呈指数级上升——这也解释了为什么刺突要密密麻麻布满颗粒表面。
经典的病毒—受体配对清单
| 病毒 | 受体 | 受体在体内的分布带来的后果 |
|---|---|---|
| HIV | CD4 加辅助受体 CCR5 或 CXCR4 | 嗜 CD4 阳性 T 细胞与巨噬细胞;CCR5 Δ32 纯合缺失者对 HIV 天然高抗 |
| 流感 | 唾液酸(α2,6 或 α2,3 连接) | 人上呼吸道以 α2,6 为主,禽类肠道以 α2,3 为主,构成物种屏障 |
| 新冠 | 血管紧张素转化酶二 | 见于呼吸道、肠道上皮,涉及多系统表现 |
| 脊灰病毒 | 免疫球蛋白超家族受体 CD155 | 分布于运动神经元等,解释中枢神经侵袭 |
| EB 病毒 | 补体受体二(CD21) | 嗜 B 细胞,建立长期潜伏 |
| 麻疹 | 信号淋巴细胞激活分子与补体受体 C 型凝集素 | 免疫细胞与上皮双嗜性,解释免疫失忆 |
读这张表的正确方式是反着读:看到一个病毒的疾病图谱,先猜受体是什么类型的细胞分子,猜对了组织嗜性、传播途径、甚至免疫病理(麻疹清除免疫记忆)都会一并解释通。
吸附作为战场:抗体为何在这里拦截
吸附暴露在细胞外,是病毒生命周期里免疫系统唯一能"物理拦截"的窗口。中和抗体的策略分三种:直接占据受体结合面(空间位阻);把多个刺突交联成束使其无法摆动到开放构象;或结合别处而通过别构效应锁死受体结合结构域。反过来,病毒的反制是抗体逃逸突变——流感血凝素的受体结合部位周围有五个主要抗原表位,突变任何一个都换走部分抗体识别,而受体结合核心本身因为功能约束不敢大变。于是抗原漂移像在"不能动的锁芯"周围不断换外壳——第 7 章讲疫苗株更新时回到这条军备竞赛。
用吸附原理解释临床现象
三个应用。第一,HIV 的 CCR5 Δ32 突变:北欧人群中约百分之十携带缺失一个三十二碱基片段的等位基因,纯合者 CCR5 不表达,HIV 的 R5 嗜性毒株无法有效进入——首个被治愈的柏林病人,治疗核心之一就是移植了携带该缺失的造血干细胞。第二,禽流感与人流感的受体差异:人气管上段几乎全是 α2,6 唾液酸,禽 α2,3 唾液酸集中在人下呼吸道深处,所以禽 H5N1 感染人类多表现为重症深部肺炎却难以人传人——受体分布既解释了毒力也解释了传播瓶颈。第三,可溶性受体诱饵:把可溶形式的血管紧张素转化酶二做成 decoy 蛋白,让病毒颗粒提前"握错手",这类入场抑制剂是药物设计的活跃方向。
易错点
其一,"受体"常不止一个:很多病毒需要受体加辅助因子的组合(HIV 需要 CD4 加趋化因子受体),只记一个会误判宿主范围。其二,体外培养细胞上的受体与体内真实受体可能不同——实验室适应株常换了受体路线,把培养皿里的结论直接外推到人体要谨慎。其三,吸附不等于感染成功:结合了错误受体、或受体交联进了非允许性细胞(不能完成复制周期的细胞),病毒表现为"_abortive infection",检测到病毒成分但无子代——临床"核酸检测阳性"与"活病毒复制"的区别就在这里。
观察训练:看到任何新发病毒的新闻,先查它的受体是什么、该受体在人体哪些组织表达。这两个信息到手,传播途径、症状谱、重症高危人群的大致轮廓已经能自己画出来。
受体流行病学的三类应用扩展
第一类应用是跨物种风险评估:把候选动物(蝙蝠、穿山甲、骆驼、水貂等)的受体基因测序,与人类受体比对关键结合残基,配合假病毒结合实验,可以给"哪些物种的病毒最可能认人的锁"排序——SARS 类冠状病毒的风险评估正是这么做的。第二类是人群易感性差异:CCR5 Δ32 之外,趋化因子受体与干扰素通路基因的多态性,造成感染与重症的个体差异;全基因组关联研究在新冠重症人群中定位到的干扰素通路与血型相关位点,延续的正是"受体与门槛基因决定易感"的思路。第三类是干预设计:可溶性受体诱饵、受体结合域的竞争肽、以及下调受体的药物(如早年抗 HIV 的 CCR5 拮抗剂马拉维若)——吸附环节的知识几乎可以一对一翻译成药物化学项目。
顺带一个辨析:受体的"可溶性形式"作诱饵与"膜结合形式"作门锁,在药代动力学与免疫原性上差异很大——诱饵要长效、要避免被当作抗原清除,工程上常与抗体 Fc 段融合(这也解释了为什么不少"受体诱饵"最终长得像抗体)。细节提示:病毒的每一步机制,都能找到至少一条被转化医学认真尝试过的路径。
补一个术语澄清:日常语境里"细胞受体"常被说成"病毒受体",严格说受体是细胞自身的功能分子(本来执行生理任务),病毒是"借用"而非"专属"。这个区别不是较真——它意味着病毒的受体选择受"受体原本功能"的约束(病原不敢灭绝宿主基因),也意味着敲除受体做抗性育种(如猪的 PVR 基因编辑抗蓝耳病的思路在受体层面讨论过)要权衡生理代价。
最后一个练习:查一查你感兴趣的三个病毒的受体名称,并在解剖学上定位它们的表达组织;再试着解释各自的一个流行病学特征(传播季节、地理分布、年龄分布均可)如何与受体分布挂钩。这个小作业能把"受体决定论"从论点变成你的默认推理路径。