5.2 固有免疫:细胞的第一道自卫
5.2 固有免疫:细胞的第一道自卫
一句话结论:固有免疫是预设好传感器与弹药的快速反应系统——模式识别受体识别病毒核酸特征,触发干扰素通路,让细胞及邻居进入抗病毒状态;它不需要预先认识特定病毒,也因此成为疫苗之外所有"广谱抗病毒"思路的基石。
从一个数字错觉说起。多数人以为发烧、鼻塞是"病毒毒害细胞"的直接后果,实际上急性期症状的大头来自固有免疫的细胞因子:白细胞介素一、白细胞介素六、肿瘤坏死因子引起发热与乏力,干扰素贡献肌肉酸痛——用退烧药不会帮助病毒清除,因为清除靠的正是这套系统。理解固有免疫,先要放下"免疫=抗体"的印象:在感染后最初几小时到几天,主角是传感器、干扰素与自然杀伤细胞。
传感器阵列:怎么认出"不是自己的核酸"
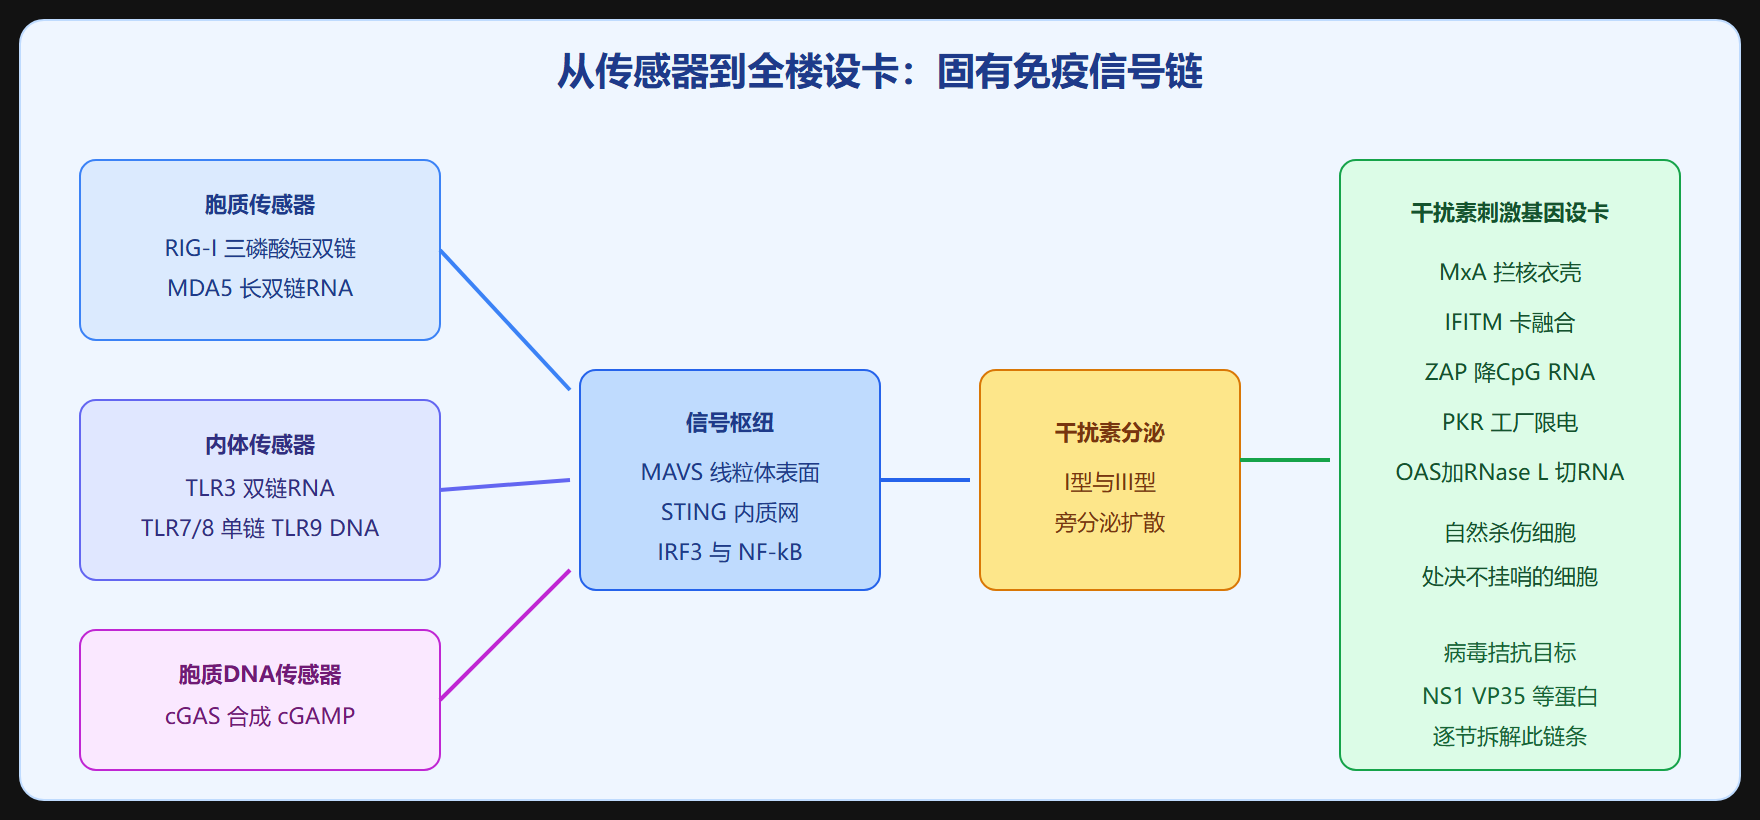
细胞区分自己与病毒核酸,靠的是分布与化学特征两套线索。分布线索:胞质里本不该出现双链 RNA 或五撇三磷酸裸端 RNA(自身核酸位于细胞核或线粒体,且通常被修饰)——视黄酸诱导基因蛋白一(RIG-I)识别带三磷酸短双链 RNA,黑色素瘤分化相关蛋白五(MDA5)识别长双链 RNA,二者都在胞质巡逻。内体线索:内体膜上的 toll 样受体三(识别双链 RNA)与 toll 样受体七、八(识别单链 RNA)、九(识别未甲基化 CpG DNA)负责检查被吞进来的内容物——树突状细胞靠这条通道把组织里的警报带到淋巴器官。DNA 线索:胞质中出现错位的 DNA 本身就是危险信号,环鸟苷酸腺苷合成酶(cGAS)识别后催化合成环鸟苷酸腺苷酸(cGAMP)这第二信使,激活干扰素基因刺激蛋白(STING)通路。
干扰素系统:一次报警,全楼设卡
传感器激活后经线粒体抗病毒信号蛋白(MAVS)或 STING 汇入转录因子干扰素调节因子三与核因子 kappa B,细胞分泌 I 型干扰素(α、β 家族)。干扰素扩散到周围细胞,与干扰素 α/β 受体结合,经 JAK-STAT 通路诱导数百个干扰素刺激基因(ISG)表达——这就是"让全楼进入设防状态"。代表性 ISG 各有招数:粘病毒抗性蛋白 A(MxA)拦截负链病毒核衣壳;锌指抗病毒蛋白(ZAP)降解 CpG 富集的病毒 RNA;干扰素诱导跨膜蛋白族(IFITM)在内体膜上卡住多种包膜病毒的融合;二十牡蛎苷酸合成酶催化寡聚腺苷酸,激活核糖核酸酶 L 非特异切割 RNA(宁可误伤,不让病毒批量复制);蛋白激酶 R 使起始因子二磷酸化,整体压低翻译(工厂限电)。III 型干扰素(λ 家族)则专供上皮与中性粒细胞,像黏膜层的局部警力。
自然杀伤细胞:不挂哨即处决
病毒有个经典反制:下调感染细胞表面的主要组织相容性复合体一类,让杀伤性 T 细胞认不出(详见 5.4 节)。固有免疫对此的答案是自然杀伤细胞(NK):它的激活与抑制受体平衡工作——抑制受体识别正常的 MHC-I"哨牌",哨牌少了,抑制解除,NK 释放穿孔素与颗粒酶处决该细胞。"missing-self"识别不需要任何病毒特异信息,快而粗暴,是抗体与 T 细胞上场前的清道夫。
病毒的反制清单(与第 2.4 节工具箱对接)
病毒的免疫拮抗蛋白几乎逐节拆这条链:流感 NS1 结合双链 RNA 并隔绝三磷酸 RNA,阻 RIG-I 识别;埃博拉 VP35 做同样的事且还抑制干扰素产生下游;乙肝病毒 X 蛋白促进降解信号分子;痘病毒干脆分泌可溶性干扰素受体诱饵,把报警信号吸走;疱疹病毒与腺病毒携带 MHC-I 干扰分子、抗凋亡分子。这张清单的价值在于预测:一个病毒的基因组越大(尤其 DNA 病毒),拮抗蛋白越多,固有免疫越难在第一时间压制它——这与第 2 章"大基因组=精细调控"的结论首尾呼应。
应用与易错点
应用两则。其一,干扰素疗法:丙肝直接抗病毒药物问世前,聚乙二醇干扰素联合利巴韦林是标准方案;其副作用(流感样症状、血象抑制)正是"把报警系统手动拉响"的代价。其二,佐剂设计:疫苗里加 CpG 寡核苷酸或 STING 激动剂,本质是替固有免疫"点名",让树突状细胞成熟、把抗原送进淋巴结。易错点三处:干扰素不是"对抗干扰的素",而是"使病毒相互干扰的因子",名字来自干扰现象实验;toll 样受体在内体不在胞质,RIG-I 在胞质不在内体,位置别混;I 型与 III 型干扰素受体分布不同,决定了 III 型更黏膜特异、全身副作用更小。
一句直觉:固有免疫是"烟感器加喷淋系统"——不求认出入侵者是谁,只认"这里不该有烟";病毒与它的拉锯,几乎全部围绕"怎么别触发烟感"展开。
干扰素的临床与进化注脚
临床注脚两条:其一,干扰素疗法的副作用谱(发热、乏力、血象抑制、情绪影响)本质上是"全身拉响警报"的生理代价,丙肝旧疗法时代患者依从性差多源于此——直接抗病毒药物取代干扰素后,治疗体验的改善与疗效的改善同样惊人。其二,干扰素刺激基因的多态性(如干扰素调节因子与 toll 样受体基因的罕见变异)解释了一小部分"年轻人却重症"的新冠与流感病例——"健康人重症"往往能在固有免疫通路里找到破绽,这是重症免疫学研究近年的重要发现方向。
进化注脚一条:蝙蝠的低炎症、高干扰素基础状态提示"耐受而非清除"的共存策略在哺乳动物中可行——病毒学一句话概括生态免疫学的启示:与病毒的战争里,除"赢"以外还存在"耗得起"的选项。这个视角对下一章族谱里"长期共演化"的关系(疱疹与宿主百万年的纠缠)是必要的补充。
补一个跨章回环:本章的干扰素系统与第 4 章的"膜工厂"互为镜像——病毒把复制机器藏进膜泡躲避传感器,宿主则用更多样的传感器(胞质、内体、核内多点布控)补偿;这场"藏与找"的竞赛没有终点,但它的每一轮结果都写进了病毒的基因组(拮抗蛋白的 repertoire)与宿主群体的基因多态性里——读任何一篇病毒免疫逃逸论文,都能看到这条竞赛线的延长。
最后补一个直观比喻之外的准确表述:固有免疫的识别逻辑是"检测异常分布与异常化学形态的核酸",而非识别"病毒特有序列"——这是它与适应性免疫(序列特异)的根本分工。记住这个分工,遇到"为什么核酸疫苗要加佐剂""为什么自身免疫病常累及核酸通路"这类问题时,推理链条会自动展开。
再补一个提示:III 型干扰素(lambda 家族)的组织特异性使其副作用谱更窄,因此曾是新冠住院患者的在研疗法之一——这条研发线说明"把报警系统的音量调到组织局部"是免疫调节的现实方向,第 8 章的免疫治疗一节会再次遇到这个思路。