1.3 微环境策反:血管生成与代谢重编程
1.3 微环境策反:血管生成与代谢重编程
本节摘要:肿瘤微环境(TME)是被肿瘤劫持的"地方供应系统"——成纤维细胞、免疫细胞、细胞外基质与新生血管共同供养肿瘤。本节讲血管生成开关与 VEGFA 通路,讲 Warburg 效应的表型与争议,并解释缺氧为何反而成为肿瘤的演化温床。
上一节说肿瘤是一个异质群体;本节的关键词是"合谋"——单靠癌细胞自己,长到一二毫米就因缺氧缺营养而停滞,它必须策反周围组织。
血管生成开关:从手无寸铁到自建补给线
正常组织中,血管生成促进因子与抑制因子处于平衡,血管静止。肿瘤打破平衡的手法是提高 VEGFA(血管内皮生长因子)的表达——缺氧通过 HIF-1α 转录因子直接诱导 VEGFA,癌基因(如 RAS、MYC)激活也能上调它。VEGFA 与内皮细胞受体结合,触发内皮细胞增殖、出芽、形成管腔。这个过程被概括为"血管生成开关":开关一旦拨到促血管一侧,肿瘤从休眠状态进入快速生长期。Hanahan 的经典实验用转基因小鼠胰岛瘤模型证明:血管开关打开之前,胰岛中原位癌可潜伏数周体积不变;开关打开后数日内体积翻数倍。
但肿瘤诱生的血管是一支"豆腐渣工程":管壁不完整、周细胞覆盖差、走向扭曲紊乱。后果是双向的——肿瘤拿到了补给,却也造成血流淤滞与间歇性缺氧;血管通透性过高还给了癌细胞进入循环的门户。理解这个"双刃剑"性质,才能理解第 5 章抗血管生成药贝伐珠单抗的定位:它不是饿死肿瘤那么简单,部分作用是"血管正常化",短期改善灌注、让化疗药能送进去。
微环境成员及其被策反后的角色
| 微环境成员 | 正常角色 | 被策反后 | 代表性干预 |
|---|---|---|---|
| 癌相关成纤维细胞 CAF | 合成基质、修复创面 | 分泌生长因子、筑起基质屏障阻挡药物 | 靶向 CAF 的 Hedgehog 通路 |
| 肿瘤相关巨噬细胞 TAM | 吞噬清道 | 分泌 EGF 促侵袭、分泌 VEGF 促血管 | CSF1R 抑制剂研究中 |
| 周细胞 | 包裹血管稳定管壁 | 覆盖不全,血管渗漏 | -- |
| 细胞外基质 ECM | 结构支架 | 硬化、形成力学屏障与化疗药物渗透障碍 | 透明质酸酶尝试降解 |
| 新生血管内皮 | 输送氧气营养 | 结构渗漏,成为入血门户 | 贝伐珠单抗 |
⚠️ 注意一个陷阱:不要把微环境理解为肿瘤的"朋友圈"——那是双向的劫持与博弈。缺氧酸性的恶劣环境会吓退大多数正常细胞,却恰恰筛选出侵袭性更强的肿瘤克隆;CAF 筑起的基质屏障既保护肿瘤,也让肿瘤自身陷于营养匮乏。治疗上,TME 是"敌占区的市政系统",拆哪一段、何时拆,是第 5 章 5.1 与 5.4 的实际考题。
Warburg 效应:改写能量规则
1920 年代,Otto Warburg 观察到一件怪事:肿瘤细胞在氧气充足的条件下,仍偏好糖酵解而非高效的氧化磷酸化——葡萄糖被发酵成乳酸,每分子葡萄糖只产出 2 个 ATP(有氧呼吸可得约 30 个)。这像一家企业放着自动化产线不用,坚持纯手工,效率低但快。为什么?
现代解释有三层。其一,速度换效率:酵解 ATP 产出率(单位时间)反而更高,支援快速分裂;其二,碳源劫持:糖酵解的中间代谢物(核苷酸、氨基酸、脂质前体)被抽去当建筑材料,增殖细胞需要的不是 ATP 而是"零件";其三,微环境武器:分泌到胞外的乳酸酸化环境,抑制细胞毒性 T 细胞与 NK 细胞,同时促进侵袭酶的活性——代谢重编程与免疫逃逸在此握手,这条线索将在第 3 章 3.3 节接上。临床上,Warburg 效应正是 PET-CT 的原理:注射的氟代脱氧葡萄糖(FDG)被高糖代谢的组织大量摄取,肿瘤在图像上"发光"(第 4 章 4.2 节会用它)。
从缺氧到侵袭:因果链一图
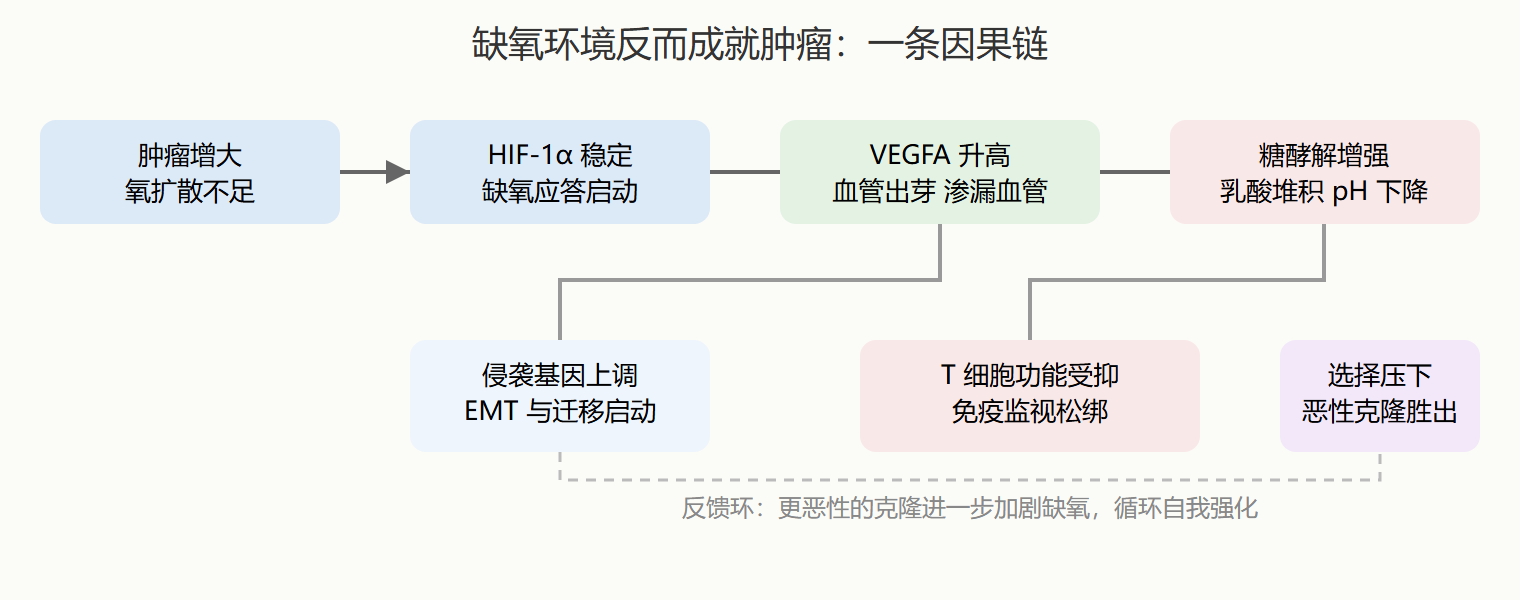
💡 关键直觉:缺氧不是肿瘤的困境,而是肿瘤的筛选器——恶劣环境淘汰温和克隆、奖励恶性克隆,还顺带麻痹免疫细胞。凡是"看起来对肿瘤不利"的条件,都要多问一句:它筛选出了谁?
小结
- 血管生成开关由促/抑血管因子平衡决定,VEGFA-HIF 通路是核心;肿瘤血管质量差,为抗血管药"正常化"策略留下伏笔。
- TME 成员表:CAF、TAM、ECM 各有其被策反后的新角色,也都可能成为治疗靶点。
- Warburg 效应以效率换速度与建材,乳酸是免疫抑制武器;它是 PET-CT 的成像基础。
- 缺氧因果链把血管、代谢、侵袭、免疫逃逸串成自我强化的环,是全册主线在微环境层面的缩影。
下一节进入逃逸的高潮:突破基底膜,走向全身。
抗血管生成治疗的双重身份
血管生成开关模型("血管生成静止态 vs 启动态"的翻转,取决于促血管因子 VEGF 与抑血管因子之间的平衡)在 2004 年换来第一个临床兑现:贝伐珠单抗(抗 VEGF 单抗)获批。但真实药效图谱比模型复杂:它在肠癌、肺癌、肾癌与卵巢癌的联合方案中延长无进展生存,却在乳腺癌后被撤除部分适应证(总生存获益不明确);单药几乎从不缩瘤,主要作用是"稳住战线"。机制的现代解读是"血管正常化窗口":抗 VEGF 剪除幼稚紊乱的血管后,残存血管短暂恢复结构与灌注——这段窗口内化疗药物与氧合(放疗增敏)反而更容易到达肿瘤,过剂量则血管荒漠化、灌注崩溃、缺氧加剧(缺氧又驱动侵袭与耐药,1.1 节 p53 缺失使缺氧细胞更易存活)。这个"剂量与时机都有甜蜜区"的药理故事,是微环境治疗学的第一课:地形改造不是越大越好。第二课是耐药形态:肿瘤最终走"血管生成拟态"(自身形成输送液体的管道网)或招募骨髓来源的血管内皮前体绕过 VEGF 通路——靶点抑制后的绕路现象在微环境层面重演。
代谢重编程的治疗窗口
Warburg 效应起初被视为线粒体损伤的副产品,现在被理解为主动的生态策略:高速糖酵解(即使在有氧环境)为快速增殖提供生物合成原料(核糖、氨基酸、脂质前体),中间代谢物被抽调去"盖房子"而非"烧火发电";副产物乳酸则排入微环境,酸化地形、抑制 T 细胞与 NK 细胞(第 3 章 3.3 节的伏笔在此打结)。代谢依赖带来治疗机会:IDH 突变的胶质瘤与 AML 产生致癌代谢物 2-HG,IDH 抑制剂直接中和这一"疯产代谢物";谷氨酰胺酶抑制剂、乳酸转运体抑制剂在临床试验中。但代谢治疗的通则同样是"正常细胞也代谢"——窗口来自肿瘤对特定通路的需求程度差异(成瘾),而非通路本身的独占性。氨基酸饥饿疗法(天冬酰胺酶在 ALL 中的经典地位)是这套逻辑的百年先例:白血病细胞缺乏天冬酰胺合成酶,"断粮"即可选择性地饿死它们。
一个病例:微环境参数如何写进疗效判断
58 岁女性,卵巢癌减瘤术后,卡铂加贝伐珠单抗维持治疗。影像评估"稳定"四个月后,CA-125 缓慢爬升、CT 却无新病灶。解读分歧点:抗血管治疗本身会让肿瘤"显得稳定"(渗漏减少使强化减弱),传统 RECIST 尺寸标准可能低估进展——这正是 4.1/4.2 节肿瘤标志物与影像互补的现场,也是抗血管药疗效评估需要"尺寸加标志物加临床"三轴的原因。换用 PARP 维持(BRCA 阳性,2.4 节伏笔)后再次稳定。复盘:微环境药物改写了"疗效"的定义本身——追捕者连测量工具都要随武器升级。