3.3 光操控与调控技术
3.3 光操控与调控技术
本节摘要:光操控把光学从观察工具升级为干预工具:光遗传学用基因编码的光敏蛋白把任意细胞变成光控开关,光阱靠动量传递搬运微粒,飞秒激光在亚细胞尺度做无接触手术。三者共享毫秒级时间精度,这正是电生理之外几乎所有操控手段都做不到的。
本节是第 3 章的收尾,也是全书叙事的转折点——到这里,光子第一次从"记录者"变为"指挥者"。第 5 章的治疗应用是本节技术在临床尺度上的放大版。
从一句牢骚说起
神经科学界流传过一句老牢骚:"我们能听到神经元说话,却插不上嘴。"电刺激电极空间精度差、化学给药时间分辨率差,两者都不足以回答"哪个回路负责哪种行为"。视蛋白基因工具的出现终结了这场尴尬:把微生物的光敏通道表达进特定神经元,蓝光照上去离子通道打开、细胞去极化放电——光是唯一的输入引线。此后十余年,"谁能被点亮、点亮多久、后果是什么"成了回路功能研究的标准句式。
核心机理:三套力量的物理来源不同
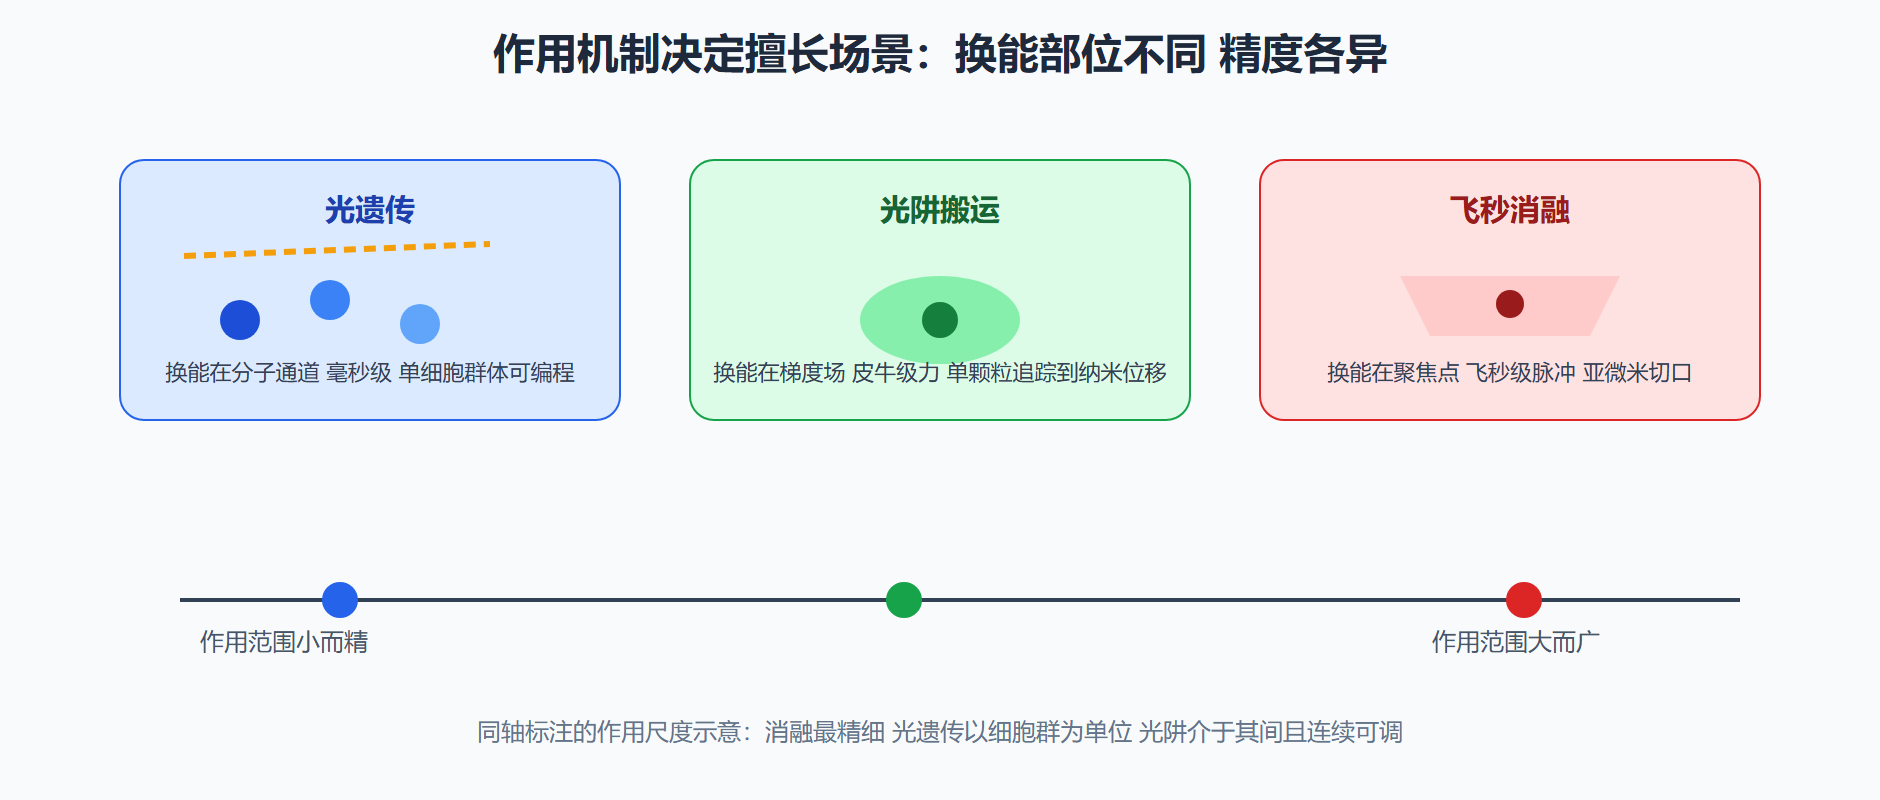
光遗传学的力量来自蛋白质构象变化。视紫红质类通道蛋白吸收光子后经历异构化反应,几毫秒内完成开关翻转;激活波长由生色团决定(约四百七十纳米常用),抑制型泵浦则多用黄橙光。工程要素有五个:载体表达的特异性(细胞类型启动子)、光照的时空模式(单光子宽场或双光子逐点)、剂量安全窗(产热限制)、读出端的时间对齐、以及免疫反应管理。
光镊的力量来自辐射压梯度。聚焦激光近场形成强度梯度场,介电微粒被"吸"向焦点,皮牛量级的捕获力足够牵住细菌乃至细胞器;配合扫描振镜可以拖拽粒子画轨迹,测出单个分子马达的步进力曲线。
飞秒消融力量来自极端峰值密度下的等离子体空化:能量沉积小于衍射极限区域,在紧邻结构毫发无损的前提下切断目标纤维或打穿细胞膜实现瞬时转染。它不依赖任何标记,天然适合超精密外科式的体外研究。
图 3-3 三种操控手段的力与精度版图
完整案例:一次闭环实验从架设到发表的全过程
背景:课题组想验证小鼠运动皮层某类抑制性中间神经元是否参与动作起始时刻的选择性刹车。假设是:若在该类元起搏后十毫秒内给予短促黄光抑制,运动起始应显著延迟且呈窗口依赖。操作按五步走。第一步选工具:抑制型视蛋白定标为阶跃响应平缓的一类变体,避免光照瞬间的反向反弹污染时间分析。第二步递送: Cre 依赖病毒注射于运动皮层,两周后开始行为训练并做全域表达确认。第三步定光照方案:功率密度控制在样本表面温升不超过一摄氏度的范围内,双盲设计伪刺激对照臂。第四步建闭环接口:实时肌电信号判别运动意图,触发逻辑在一毫秒内点亮预定的抑制时长。第五步冻结分析脚本后才解盲数据。结果上,刺激窗组运动起始延迟的中位数比伪刺激组长,且延迟量随抑制时长单调增加,全脑钙成像平行记录显示下游丘脑活动同步受抑。解读时的关键陷阱有两个:一是行为任务的注意力学习效应会被误当刺激效果,对照臂的存在消除了这一质疑;二是视蛋白表达边界的溢出会使因果范围估计过宽,这属于所有遗传工具的共同短板,只能靠组织学复检量化。变式方向是把闭环规则换成"放电超过阈值才抑制",检验细胞簇水平上的因果必要性,这类按需介入范式正成为下一代闭环治疗的雏形。
工程实践要点
- 产热公式要背下来方向:温度上升近似与功率密度和吸收系数成正比、与血流散热反相关,深部脑区的散热差意味着同样的表面功率风险更高;
- 同步时钟统一所有通道:光照、相机、电生理必须挂同一参考钟,毫秒级错位会让因果结论整体失效;
- 对照的三件套不能省:无视蛋白对照组排除光的直接效应、伪刺激组排除提示线索、随机化刺激时刻排除节律假象;
- 光路里的机械振子都会泄漏时序:振镜与声光调制器的响应延迟需要实测校正而非抄手册值。
⚠️ 常见坑:只报告有效刺激trial、剔除无效trial——这类选择性汇报会让弱效应看起来异常稳定。
💡 关键直觉:操控技术的成熟度不看"能不能打开",看"关得多干净"。零泄漏的低背景才是因果实验的地基。
主流视蛋白工具的性能画像
选择视蛋白时真正起决定作用的是五个属性的组合:激活波长、动力学速度、离子选择性、表达毒性以及脱敏恢复特性。下表给出口语化画像:
| 家族倾向 | 优点 | 短板 |
|---|---|---|
| 兴奋型通道 蓝敏 | 响应干脆 易用 | 光电流偏小 表达量要求高 |
| 红移型兴奋通道 | 红光刺激损伤小 | 动力学稍缓 |
| 抑制型泵 黄光驱动 | 超极化稳定 | 单离子吞吐 电流有限 |
| 双稳态步进工具 | 可保持状态省光照 | 复原需另一波长 |
两条经验法则值得背下来:深部脑区优先红移工具以降低散射损失与产热;需要毫秒级闭环的策略避免慢动力学泵浦类,否则你控制的其实是上一拍的状态。另一件容易被忽略的事是光照剂量报告的单位统一——功率密度与能量密度混用是回路研究复现争论的隐形来源,写作时把两者的数值与照射时长同时给出,能替后来的重复者省下一个星期的调试。
双点激活带来的第三维度
宽场光遗传最容易忽略的一项自由度是轴向控制。用两束不同波长按比例混合照射,只有比例正确的深度处视蛋白才同时吸收到两种光子并完成激活,其余平面保持沉默——三维体积内的层选择性由此实现。它的分辨率不及双光子逐点扫描,但成本几乎为零、视场覆盖完整,适合薄组织切片或培养细胞的分层探究。使用时需先实测混合比沿深度的响应曲线,因为散射会让比例随深度漂移;把这个校准步骤写进操作规范,可以避免"看起来分了层其实只是功率梯度"的自我误解。
本节要点回顾
- 三套操控工具分别撬动构象变化、梯度力与等离子体空化,作用尺度依次跨越分子、颗粒与亚细胞;
- 时间精度毫秒级是共同卖点,同步与时延校正是工程命门;
- 闭环范式把测量与控制接成循环,正在从实验室走向自适应疗法;
- 因果实验的说服力取决于对照设计与数据冻结纪律。
工具、光谱与操控台都已就位,但还有一个缺口:如何在茫茫样品中标记我们关心的那个特定分子?第 4 章进入探针的世界。