4.1 营养生态维度
4.1 营养生态维度
本节摘要:营养生态远非一份"谁吃谁"的菜单,而是一座由能量获取路线、代谢加工深度与伙伴依存程度撑起的三维拓扑空间。本节借须鲸喉褶的流体力学、蚯蚓钙腺的酸碱缓冲、蜘蛛毒液的模块拼装与绦虫的基因组精简,逐一拆解四大营养策略的系统性逻辑,收尾落在共生关系由"集市贸易"到"代谢联盟"的梯度序列上。
本节导航
阅读完本节,你应当能够:
- 用三维坐标为任意物种的营养策略落位;
- 讲清须鲸喉褶凭什么把滤食效率抬高两个数量级;
- 说明蚯蚓钙腺如何把 pH 缓冲曲线写进身体结构;
- 剖析蜘蛛毒液"协议适配包"的组织方式;
- 辨别偏利共生、互利共生与代谢联盟在依存度上的落差;
- 解释瘤胃微生物群何以成为反刍动物外挂的代谢车间。
一、破除直觉:食性不是口味偏好
"肉食、草食、杂食"——这套口头分类把食性当成了点菜口味。可一旦钻进组织微结构、酶动力学与微生物群落的组装规则,景象全变:鲸鲨的鳃耙是一座微型净水厂;反刍动物的瘤胃是一组恒温、缓冲了 pH 的厌氧发酵罐;绦虫消化器官的退化背后,是整套基因组对宿主通路的上位改写。营养,是一项主动开工、层层叠加的系统工程。
为此需要先立好三根坐标轴。X 轴是能量获取路线谱:借高速水流筛走浮游生物(须鲸)、靠突触放电锁定猎物轨迹(蜘蛛),抑或用分子伪装骗过宿主免疫(蜱)——记录的是"入口协议"的五花八门。Y 轴是代谢加工深度:滤食者只做物理浓缩加初步酶解;碎屑食者开动纤维素裂解与短链脂肪酸合成;内共生体系则完成跨域的代谢对接,能量附加值逐级叠高。Z 轴是伙伴依存度:䲟鱼搭鲨鱼的便车只图省力,消化系统完全自理(依存度约 0.2);珊瑚虫与虫黄藻结成光合产物与碳酸钙沉积的闭环互济(约 0.85);反刍动物一旦离开瘤胃微生物便对付不了任何粗纤维——营养主权已然移交微生物群体(逼近 1.0)。
三根轴彼此并不独立。寄生路线在获取端得分很高,却注定换来代谢深度塌方与依存度爆表;碎屑食性看似被动省力,却逼出了超强的胞外酶分泌能力与高度定制的肠道菌装配流程。多维之间的拉扯,正是营养生态的深层骨架。
二、形态–生理协同:四则案例的解剖句法
演化不出图纸、只做淘汰——每个形态变体都得当场通过生理效率的验收。
滤食者的"巨型化难题"曾让学界困惑许久:须鲸能长到 30 米,滤食性鲨鱼为何封顶在 12 米?流体力学建模联合 CT 扫描揭晓了答案:须鲸的喉褶可不是一只普通弹力囊,而是一台可控制膨胀的流场改写器——冲刺时喉褶同步撑开,咽部横截面积瞬间放大 300%,把水流的减速梯度从湍流区压回层流区,直径不足 2 毫米的桡足类再无逃逸可能。鲨鱼没有这手动态调控,只靠静止的鳃耙硬滤,效率随体型增大按平方反比下滑。形态在此绝非装点,而是流体方程落在生物材料上的具体解。
碎屑食者蚯蚓给出了另一套闭环。它角质层下密布钙腺,源源不断向肠道排放碳酸钙颗粒——看似多余的"结石工厂",实为一套精准的 pH 缓冲方案:腐殖质发酵释放大量有机酸,若无人中和,肠道 pH 会跌破 5.0,纤维素酶将集体罢工;钙盐溶解形成缓冲对,把 pH 稳稳托在 6.2 至 6.8,恰好卡在蚯蚓自身纤维素酶与共生放线菌所产葡聚糖酶的最佳工作带。钙腺(形态)、碳酸钙溶解(生化)、放线菌安家(微生物)、pH 敏感窗口(酶学)串成一条闭合的因果链。
捕食者蜘蛛的毒液则像一套模块化的"神经操作装置":α-银环蛇毒素锁定突触前膜钙通道,强令神经递质倾巢而出;ω-毒素封锁 P/Q 型钙通道,冻结运动指令;κ-毒素专克钾通道,把动作电位时程一路拉长——三管齐下,猎物在毫秒量级内走完瘫痪、痉挛、神经源性休克的三连击。毒素的组合并非胡乱拼凑,而是针对不同猎物神经构造的协议适配套装:对付昆虫优先引爆乙酰胆碱能突触,对付甲壳类则加重谷氨酸能抑制。
寄生者绦虫把"以退为进"演到极致:基因组里消化酶基因家族整体假基因化,却大量扩编胆汁酸转运蛋白与葡萄糖共转运体的拷贝——它不自己造工具,而是把宿主小肠刷状缘直接征用为代谢端口;头节微绒毛表面的唾液酸结合凝集素乔装成宿主糖萼的成分,躲开免疫巡查。形态上的删减,正是替更高一级的功能接管腾出演化带宽。
| 策略 | 形态装备 | 生化核心 | 演化账单 |
|---|---|---|---|
| 滤食 | 喉褶流场改写器 | 层流截获 | 受制于浮游生物丰度 |
| 碎屑食 | 钙腺与膨大的肠道 | pH 缓冲加纤维素酶 | 能量密度偏低 |
| 捕食 | 毒腺分室化 | 离子通道毒素套装 | 猎物反制的军备赛 |
| 寄生 | 头节钩齿与微绒毛 | 转运体扩编与免疫伪装 | 基因组退化、依附宿主 |
三、共生梯度:由集市贸易到代谢联盟
如果说捕食和寄生是你死我活的零和局,共生便是生命搭建局部秩序的集体智慧——但它绝非温情脉脉的合作口号,而是一场围绕代谢盈余与风险分摊的持续谈判。
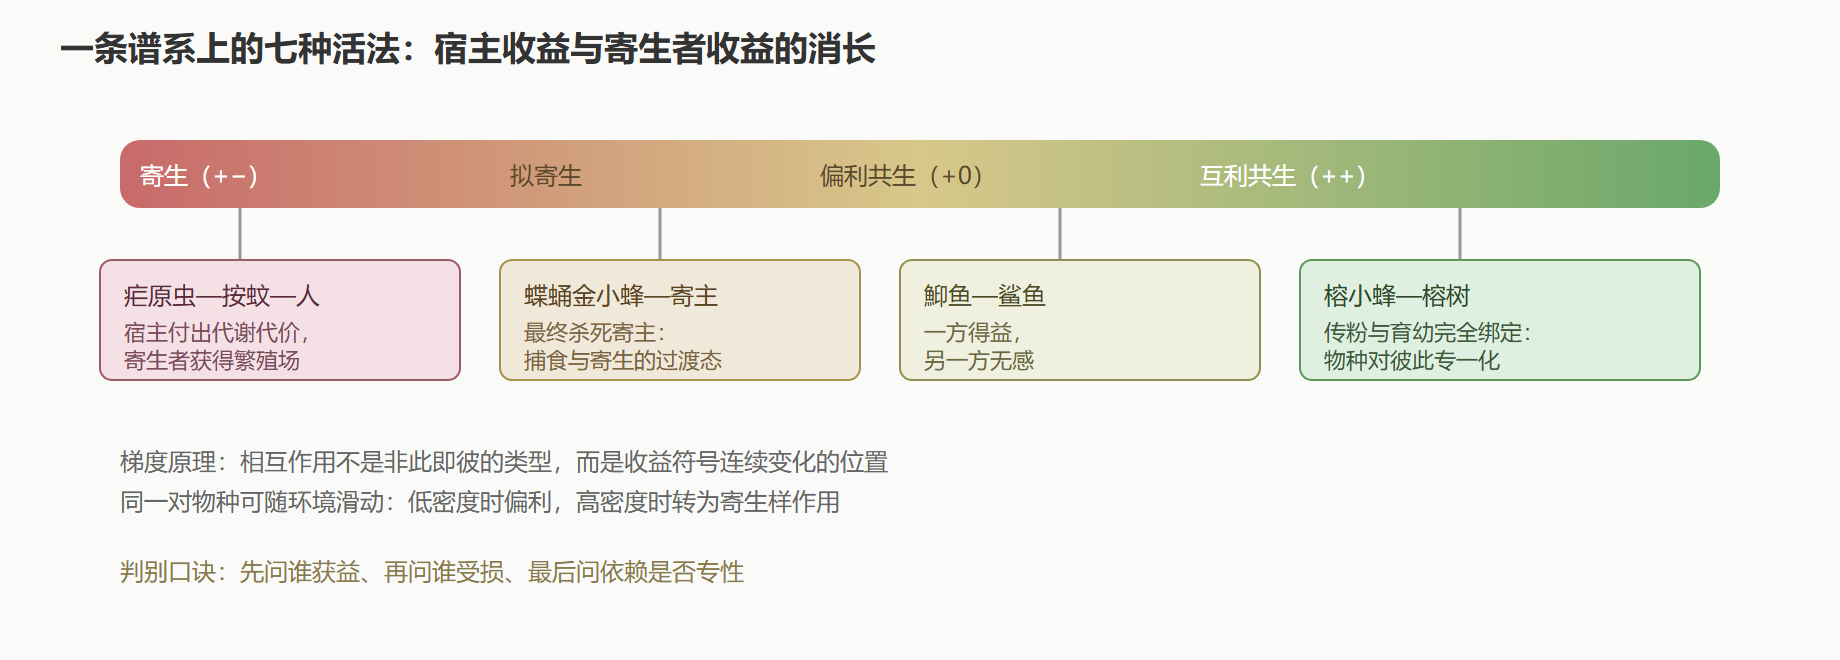
䲟鱼吸在鲨鱼体表,赚到了搭车与剩饭,吸盘收缩的能耗只占基础代谢的约 3.7%。这是标准的轻资产模式:消化系统照旧、代谢路线未动,只是租借了一块高流动性的平台。共生关系停在集市层面——通货是能量,合同是物理吸附,毁约几乎不付成本。
珊瑚虫与虫黄藻则升级成互相持股的合资企业。虫黄藻的光合产物(甘油、葡萄糖、氨基酸)撑起珊瑚虫九成以上的日常能耗;作为对价,珊瑚虫供应二氧化碳、铵盐与稳定光照,还用荧光蛋白调节光强。要害在"代谢门控"这一环:珊瑚虫细胞膜上特化的氨转运体,其表达量由藻类分泌的 DMSP 浓度控制,藻类这边也演化出专认珊瑚的定植机制——这不是单方面馈赠,而是按持股比例分红,分红条款由双方基因组共同起草。
反刍动物与瘤胃微生物则结成了代谢联盟体制。瘤胃不只是一只储罐,而是一套能自我维持稳态的微生态:pH 由挥发性脂肪酸托底,温度由宿主血流恒温,氧化还原电位靠微生物种间的氢转移动态调度。宿主肝脏甚至专门表达了负责磷酸化瘤胃来源丙酸的丙酸激酶,其亲和常数刚好对上瘤胃丙酸浓度的波动区间——宿主不只收货,还在基因层预装好了对接端口。2023 年《Nature Microbiology》的研究表明,瘤胃微生物群落的多样性指数与宿主增重速率显著正相关(相关系数 0.83)。深海热泉的管栖蠕虫无口无肠、全凭内共生菌供能,是被极端环境逼出来的代谢联盟;等足类携带沃尔巴克氏体只管性别决定、不沾营养,则是寄生滑向共生的中间站。
共生关系梯度:依存度的三级跳
四、技术框架:从观测走向干预
过去的营养研究长期被胃内容物分析的静态快照困住,如今正被重构成一套可观测、可建模、可干预的动态系统。
观测层,高分辨显微 CT 重建鳃耙的三维流道,同步辐射成像原位标出肠道金属酶辅因子的分布,单细胞转录组联用空间代谢组绘出从口腔到结肠隐窝的酶活梯度——问题从"吃什么"改写成"在何处、以多高速率、经由哪些分子机器拆断哪些化学键"。建模层,基因组尺度的代谢模型已经能搭起宿主-微生物联合网络:以牛为例,模型收录约 12000 个反应,其中 3200 个来自瘤胃菌群;通量平衡分析可以精确推演饲料纤维占比从 40% 提到 60% 时丙酸通量上浮 22%、甲烷产出回落 17%——这已不是凭经验猜,而是热力学约束下的唯一解。干预层,2024 年有团队往绵羊体内植入工程化的巨球型菌株,让其表达反硝化酶系、把瘤胃硝酸盐还原成氨而不是温室气体,排放压低 31% 的同时氮利用率不降反升——营养生态维度就此迈入定向设计的年代。
⚠️ 常见坑:把共生当作一劳永逸的稳定终点。共生是不断返谈的动态契约——沃尔巴克氏体在等足类里只管性别、在丝虫里负责供能、在某些昆虫里干脆变成生殖寄生,同一类细菌在不同宿主中落在梯度上相距甚远的位置。任何"共生等于和谐"的讲法,都低估了谈判桌上的反复拉锯。
💡 关键直觉:微生物组已经成了生态位分化的新一维。同一片森林里,两种食果鸟肠道菌群的多样性差距,可达其线粒体 DNA 序列差距的 2.8 倍——取食偏好这个行为变量,正借微生物组之手放大成生态位的实质分野。
补一道把三根轴串起来的练习。给定两个物种——滤食的鲸鲨与寄生的牛肉绦虫——请分别落位:鲸鲨获取端属被动流体筛滤、代谢深度居中(物理浓缩加初步酶解)、依存度趋近零;绦虫获取端属分子端口劫持、代谢深度塌到体表吸收、依存度逼近一。再把体型、世代长度、种群密度摆进对比,你会发现三维定位的预测力远胜"草食/肉食"这类旧标签:它能直接推出鲸鲨对浮游生物丰度季节起伏的敏感,以及绦虫对宿主种群密度的依附。拓扑分析的用处正在于此——不是分类游戏,而是预测工具。
五、一节小结
- 要点一:营养生态靠获取路线、代谢深度、依存程度三轴落位,寄生必然牵动代谢塌方与依存飙升;
- 要点二:须鲸喉褶令咽部横截面积瞬间放大 300%、把水流压进层流区,是流体方程的生物解;
- 要点三:蚯蚓钙腺把肠道 pH 托稳在 6.2-6.8,串起形态、生化、微生物、酶学四层闭环;
- 要点四:蜘蛛毒液是瞄准猎物神经构造的协议套装,绦虫的退化是替接管让出带宽;
- 要点五:共生梯度从䲟鱼的集市贸易(依存 0.2)到瘤胃的代谢联盟(逼近 1.0),宿主基因早已预装接口;
- 要点六:基因组尺度代谢模型与工程菌介入,宣告营养生态从观测科学转轨为设计科学。
下一节切到行为的执行端:从焊死在硬件里的固定程式,到要学五年的气泡网围猎,行为适应的层级远比想象中繁复。
能量流动金字塔
图:营养级之间的能量递减
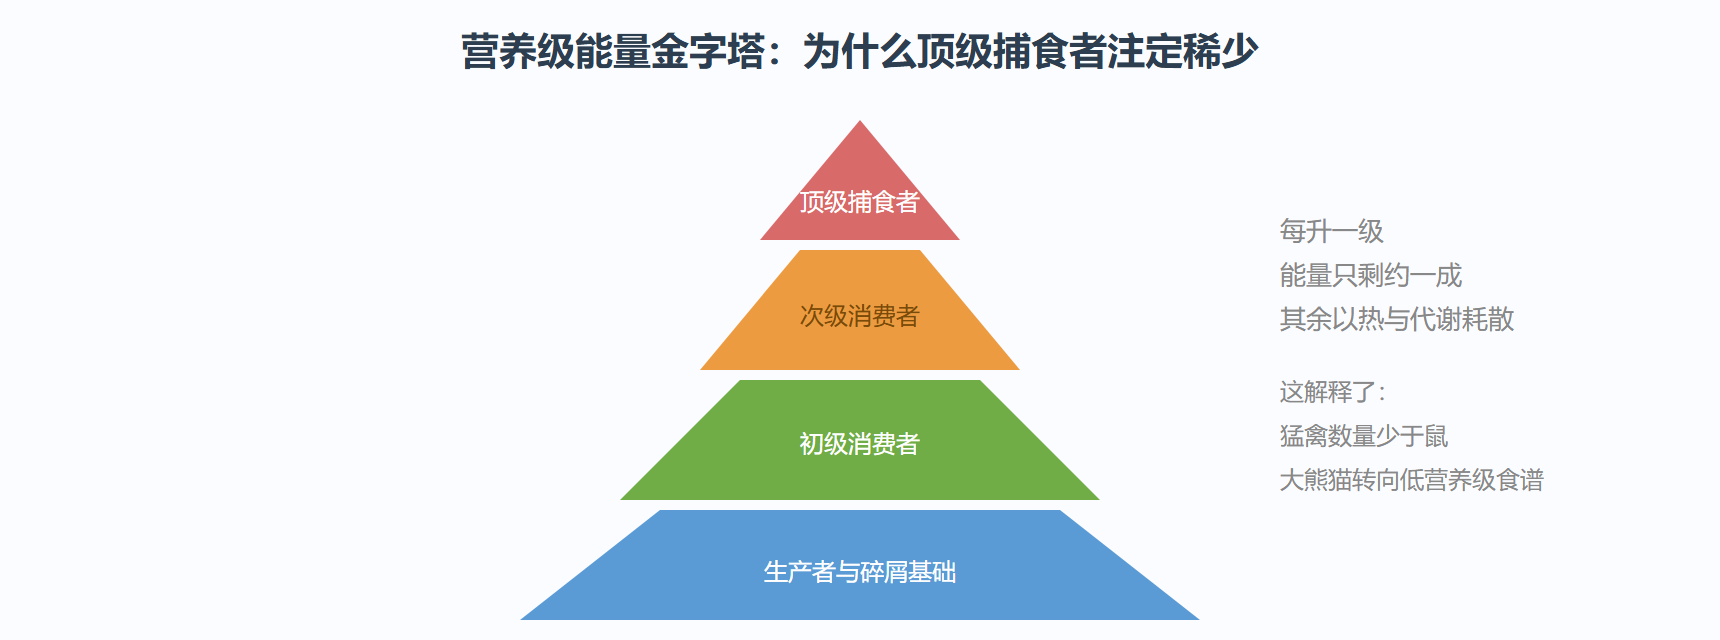
图:从捕食到共生的相互作用梯度谱
数据与计算:营养级上的能量账本
生态位的营养维度首先要过能量收支这一关。以下是一个温带湖泊食物链的实测量级数据。
营养级,代表类群,生物量(g干重/m2),同化效率,生产效率,营养级传递效率 初级生产者,浮游藻类,15.0,—,—,约10%(至植食者) 植食动物,枝角类/轮虫,1.6,0.60,0.35,约13%(至一级捕食) 一级捕食者,幽蚊幼虫 Chaoborus,0.22,0.75,0.30,约15%(至鱼类) 二级捕食者,鲈 Perca flavescens,0.035,0.80,0.25,约8%(至顶位) 顶位捕食者,大口黑鲈 Micropterus salmoides,0.004,0.85,0.20,—
传递效率的连乘直接决定顶位捕食者的生物量天花板,可以算一遍。
trophic_eff = [0.10, 0.13, 0.15, 0.08] producer_biomass = 15.0 b = producer_biomass for i, e in enumerate(trophic_eff, 1): b *= e print(f"第 {i} 级生物量上限约 {b:.4f} g/m2") # 到顶位仅剩 0.0005 g/m2 量级,解释了两条经典规律: # 1) 顶级捕食者必然稀疏且家域巨大; # 2) 体型-营养级标度(捕食者约 10^4 倍于猎物质量)受能量金字塔与 # 代谢标度(B 正比于 M^0.75)双重约束——Elton 正是据此定义了生态位金字塔。 mass_ratio = 1e4 b_meta = mass_ratio ** 0.75 print(f"顶位代谢需求/单位生物量供给比: {b_meta:.0f}")
互利共生一侧同样有账可算:珊瑚-虫黄藻系统中,藻类光合产物可满足宿主九成以上的能量需求;白化事件(共生藻排出)后即使存活,珊瑚的生长率下降可达五到七成——营养维度的"合作"在能量账本上从不含糊。