5.1 物种濒危机制解析
5.1 物种濒危机制解析
本节摘要:濒危从来不等于"数目稀少",而是基因流、资源流、信息流这三张功能网络被系统性拆解的动态历程。本节绘出一张"濒危生成路线图":既拆解直接威胁(空间挤压与存量收割)的传导链条,也追踪间接胁迫(物候脱节与海水酸化)的渗透路径,再借内在脆弱性谱系说明:同一股压力砸下来,为何不同物种的命运天差地别。
本节目标
阅读完本节,你应当能够:
- 借三重连接网络说明濒危的实质;
- 复述"灭绝漩涡"这一自我强化的循环;
- 讲清栖息地破碎化如何经由基因流断绝而致命;
- 解释过度利用为何堪比瞄准生命史软肋的精准猎杀;
- 描述物候错配在营养级上的放大效应;
- 用内在脆弱性的三维谱系替保护干预找准杠杆支点。
一、破题:濒危不是消失的开始,而是连接的塌方
先把几幅画面立住。IUCN 红色名录每年更新约 32000 个受威胁条目;穿山甲鳞片的黑市价已按毫克开价、与黄金联动起伏;2016 年一年之内,大堡礁北部三分之一的珊瑚群落因海水异常升温集体白化死亡;平塔岛象龟的最后一员"孤独乔治"于 2012 年辞世。
传统保护思路常把濒危与"数量少"画等号——好比诊断心脏病只去数心跳。现代种群生态学与景观遗传学反复核验出的却是另一条结论:物种滑向灭绝的临界点,往往出现在功能性连接被不可逆转地切断的时刻。这种连接由三张网撑着:基因流网(个体迁徙捎带的等位基因交换,是对抗近交衰退唯一的活水)、资源流网(食物、水源与筑巢材料在时空中的可及梯度)、信息流网(迁徙路线记忆的代际交接、捕食风险识别的学习、植物花期与传粉者活动的协同节律——种群应付变局的认知底座)。
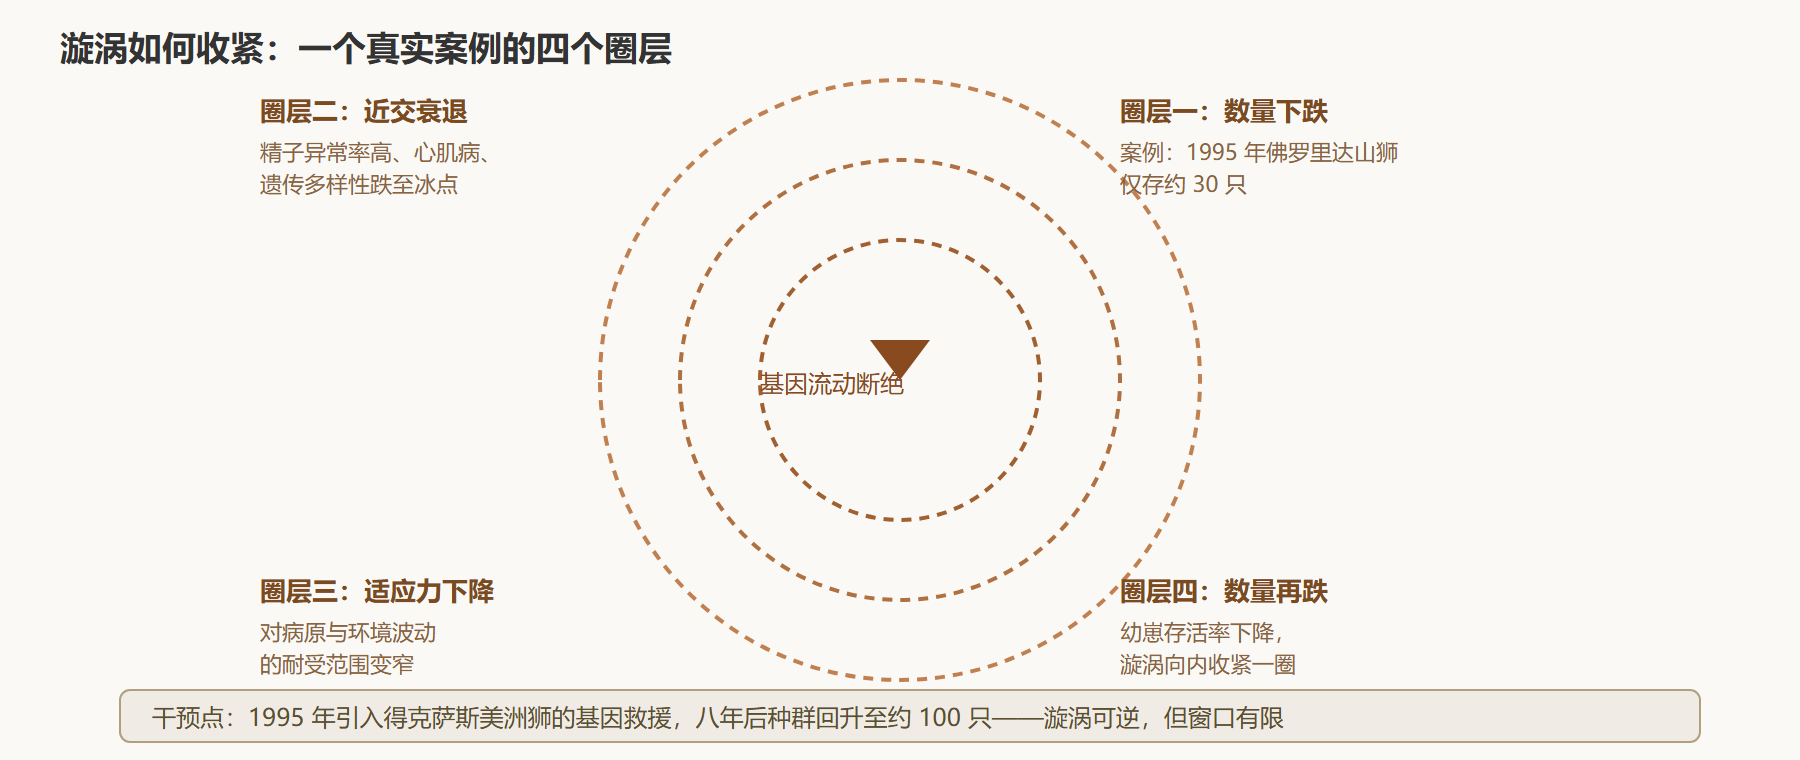
当人类活动同时啃噬三张网,濒危就从概率事件变成注定结局。孤独乔治的灭绝便是完整标本:表层原因写的是 19 世纪捕鲸船的过度采捕;深层机理却是,岛屿隔离本就榨干了基因多样性(预期杂合度约 0.04,只有大陆龟类的五分之一),人类带去的山羊啃掉幼龟糊口的仙人掌幼苗、掐断资源流,猫与鼠洗劫龟卵、捣毁年龄结构的再生环。三网同时塌陷,种群立刻卷进灭绝漩涡——数量下滑带走遗传多样性,适应力变弱推高死亡率,死亡率再压数量,直到无声无息。
三重连接网络的崩解与灭绝漩涡
二、直接威胁:空间挤压与存量收割的两面夹击
直接威胁之所以致命,在于它瞄准的恰是种群存续所仰赖的空间连续性与存量完整性。
栖息地破碎化绝不是简单的面积缩水。连续森林被公路与农田切成孤岛之后,真正死去不是树木,而是廊道所承载的通行权。中美洲的美洲豹种群已被数十条高速路切作至少 7 个孤岛单元;遗传分析显示,哥斯达黎加与巴拿马边境种群之间的基因流已跌到每代不足 1 个有效迁移个体——离维持长期存续的门槛相去甚远。没有廊道便没有基因往来,突变负荷越积越重、适应性等位基因接连丢失、近交抑郁浮出水面,种群沦为一只装载着注定衰变基因组的"遗传方舟"。
更难察觉的凶手,藏在过度利用的时间错位里。穿山甲贸易的残酷不止于年均百万只的捕获量,更在于其全生命周期无处替代:雌兽每胎只产 1 仔,哺乳期 3-4 个月,性成熟要熬 2-3 年——盗猎强度一旦持续压过种群自然增长率(穿山甲约每年 0.23),负增长立刻开场。犀牛角贸易还叠了一层扭曲:角并非生理必需、且能再生,盗猎者于是玩起"锯角饶命"——听着慈悲,实际上无角个体的感染死亡率超过 60%,丢了角的雄性又在领地争斗里彻底出局,繁殖贡献直接清零。这是专挑生命史软肋下手的精准猎杀。
外来种在岛屿系统里的毁灭力,则来自演化军备赛的彻底失配。新西兰斯蒂芬岛曾住着不会飞的鸮鹦鹉:灯塔看守人带着家猫一上岸,猫无须学会捕猎——它的本能里早就预装了对地面活动、不会飞、不设防猎物的识别算法,三年之内岛上鸮鹦鹉清零。这不叫生态位竞争,这叫演化时钟不同步的降维打击:一边花千万年演化出"此地安全"的行为定式,另一边揣着横跨大陆筛选出的顶级捕食模块。岛屿特有种灭绝的元凶从来不是"弱",而是"没见过"。
三、间接胁迫:钝刀子拆掉生理与物候的齿轮
如果说直接威胁是手术刀,间接胁迫就是渗进来的溶剂——不马上致命,却把撑住生命节律的分子与时间结构一点点化开。
气候变化推起来的物候错配,实质是全球规模的对表事故。温带候鸟黑顶林莺的迁徙时刻表主要由体内光周期感应器(松果体褪黑素分泌节律)把守,这套机制在万年尺度上从没出过错。可春季气温的爬升速度(每十年约 0.3 摄氏度)早已甩开光周期的变动节奏(地球轨道参数的变化周期以万年计)。结局是:鸟按"旧黄历"飞抵繁殖地,毛虫的爆发高峰已经收场,雏鸟口粮告急,体重达标率掉落 37%(Visser 等 2006 年《Nature》)。更麻烦的是营养级放大:毛虫盯着橡树叶萌发,橡树展叶听积温的——升温让橡树提前展叶、毛虫提前羽化,鸟却仍按光周期赶路,三级时序集体脱扣。
海洋酸化则直接掏空钙化生物的物理地基。海水吸收二氧化碳后碳酸根离子浓度下滑,碳酸钙饱和度随之走低;饱和度一旦持续低于造礁珊瑚的临界值(约 3.2),幼体钙化速率便砍半不止(Albright 等 2016 年《Nature Climate Change》)。这不是慢性的腐蚀,而是胚胎阶段的"骨骼缺钙症"——珊瑚幼虫沉降之后立不起最初的骨骼基盘,贝类幼体的壳薄脆易碎,整座海洋碳酸盐泵的微型齿轮在酸水里一格格锈死。
| 威胁类型 | 作用对象 | 时间尺度 | 典型指标 |
|---|---|---|---|
| 破碎化 | 基因流 | 代际 | 每代有效迁移数小于 1 |
| 过度利用 | 种群存量 | 年 | 获取率压过自然增长率 |
| 入侵种 | 行为防线 | 年至十年 | 岛屿特有种清零 |
| 物候错配 | 营养级同步 | 十年 | 雏鸟达标率掉 37% |
| 海洋酸化 | 钙化生理 | 十年 | 饱和度低于 3.2 |
四、机制合拢:同一股压力下命运为何两样
关键疑问来了:同样面对栖息地破碎,欧洲野牛重引入后种群回春,苏门答腊虎为何反而加速坠向极危?答案藏在物种各自的内在脆弱性谱系里,由三个维度共同写就。
其一,生活史韧性:繁殖快、世代短的对策物种(褐鼠之流)扛干扰的本事大;繁殖慢、世代长、亲代投入重的物种(大象、鲸类)几乎没有容错额度。其二,生态特化度:专一传粉者(丝兰蛾与丝兰)、狭域分布种(只长在云南高黎贡山的某些杜鹃)、食性单一者(考拉只啃桉树嫩叶),生态位一窄,环境稍有风吹草动便可能崩盘。其三,遗传适应潜力:有效群体大小、历史瓶颈深浅、重组率一并决定应付新选择压的进化速度——北大西洋鳕鱼被长期滥捕削去九成有效群体,热耐受相关基因的等位基因多样性近乎见底,适应的窗口已经关死。
真正的保护干预必须钉在三维交汇处。对付穿山甲,核心是掐断贸易链(打外部压力源,要害在斩断跨境资金链,而不只是罚没鳞片);对付珊瑚,则须双轨并跑——近期上人工育苗与酸化缓冲(缓生理之急),远期推全球碳减排(拔根本之源)。世上没有包治百物的保护公式,只有建立在机制解析之上的对症处方。
⚠️ 常见坑:拿种群数量当唯一的健康指标。监测体系得越过数量,纳入基因流指标(遗传分化系数、迁移数)、物候同步指数(鸟到日与毛虫峰值日之差)、碳酸钙饱和度剖面这类过程参数——数量还高悬时,连接可能已经断了。
💡 关键直觉:修复珊瑚礁的优先动作之一,是把鹦嘴鱼等关键草食性鱼类请回来压住藻类——这是对群落功能网络的定点重启。保护的对象不是名单,而是正在运转的过程。
五、走向机制驱动的保护范式
把前述机制串成一条诊断流水线:先查三重连接里哪一重率先断裂(遗传抽样验基因流,样线调查验资源时空分布,行为观测验信息传递),再判压力源属直接还是间接(前者可就地拦截,后者得靠区域乃至全球合力),最后对照内在脆弱性谱系估算种群的自我修复余量。这条流水线的价值,在于把"拯救"这个含糊的目标拆成可分工、可问责的具体环节。
濒危一旦被看作连接性瓦解的动态过程,保护生物学就从抢救式应急升维成生态系统韧性工程。保护区规划必须叠上廊道模拟、气候避难所预测与遗传多样性热点图;评估一片恢复中的热带森林,重点不再是数到多少种鸟,而是盯住种子传播网络的连通强度、土壤固氮群落的功能冗余。人类世的悲哀不在于我们造成了灭绝,而在于我们分明握着解读其密码的能力,却迟迟没把它翻译成行动的语法。
重点提炼
- 要点一:濒危的实质是基因流、资源流、信息流三重连接的系统性塌方,不是数目稀少;
- 要点二:灭绝漩涡是自我强化的负反馈循环,动手越晚、支点越少;
- 要点三:破碎化杀掉的是廊道承载的通行权,基因流跌破每代 1 个迁移个体即为红灯;
- 要点四:过度利用专打生命史软肋(穿山甲每胎 1 仔、犀牛去角后感染死亡率超 60%);
- 要点五:物候错配自带营养级放大,光周期与积温的三级脱扣动摇系统稳定;
- 要点六:内在脆弱性三维谱系(生活史、特化度、遗传潜力)决定精准处方的支点位置。
下一节讲处方怎样科学落地:优先区划的空间理性、技术介入的伦理力学、社区共管的制度拓扑。
灭绝漩涡
图:小种群走向灭绝的正反馈循环
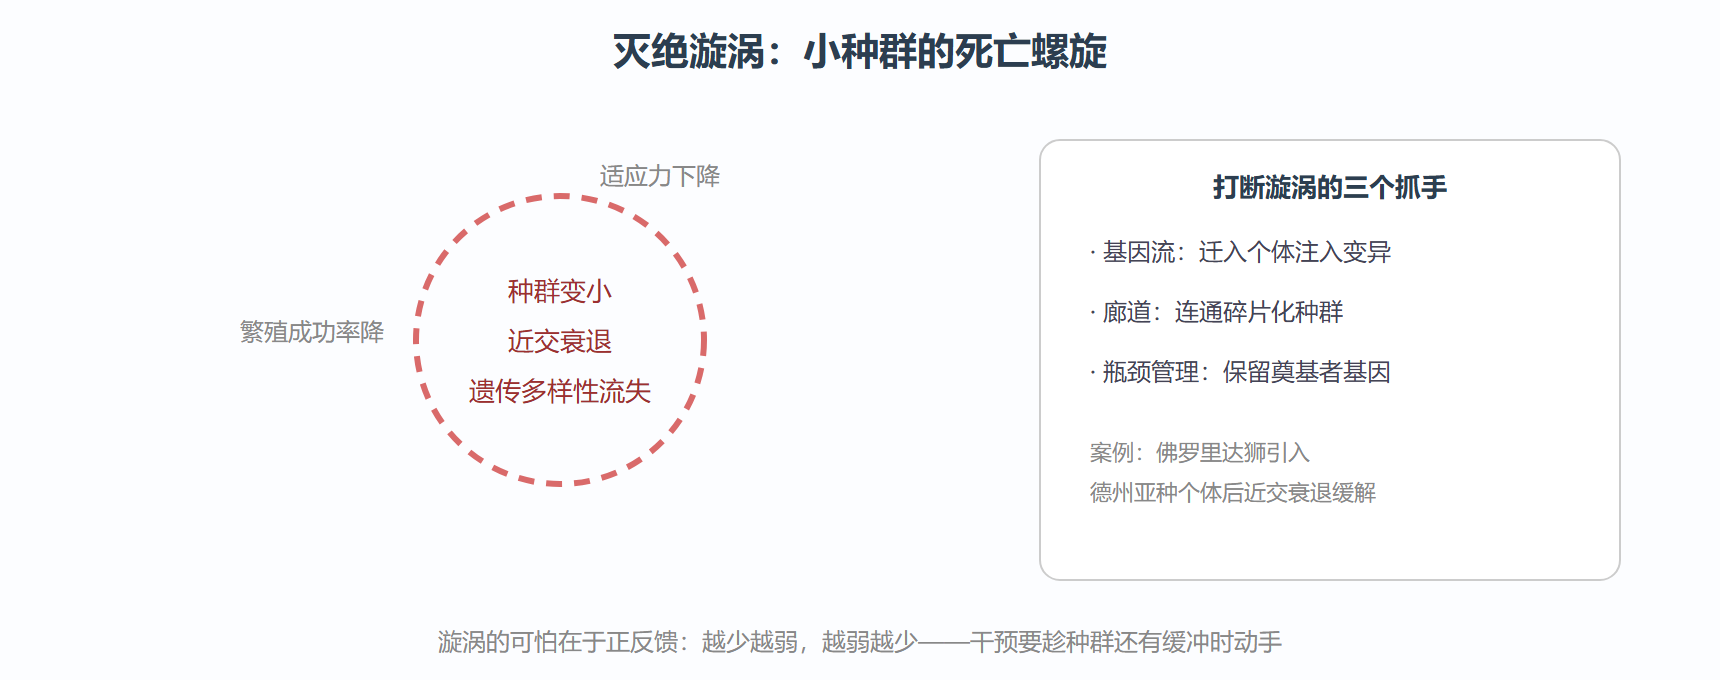
图:灭绝漩涡的正反馈螺旋
濒危算术:小种群的遗传账与威胁账
灭绝漩涡的每一圈都能算。先用经典种群遗传学公式估算近交衰退。
# 每世代近交系数增量:dF = 1/(2Ne) cases = [("倭河马 Choeropsis liberiensis 野外", 2500), ("爪哇犀 Rhinoceros sondaicus", 76), ("加岛企鹅 Spheniscus mendiculus", 1200), ("鸮鹦鹉 Strigops habroptilus(1995)", 51)] for name, ne in cases: dF = 1 / (2*ne) print(f"{name}: Ne={ne:>5} -> 每世代 dF={dF:.4f},杂合度每代损失 {dF:.2%}") # 鸮鹦鹉案例实况:1995 年触底 51 只,管理移除近交个体后 # 2023 年恢复至约 250 只;存活率提升证明近交抑郁是可逆操作位。 h0, ne, gens = 0.35, 50, 5 print(f"Ne=50 连续 {gens} 代后杂合度残留: {h0*(1-1/(2*ne))**gens:.3f}")
外部压力侧的数据同样有明确量级。
威胁因子,量级估计,影响的物种比例(IUCN受胁物种中),典型机制 生境丧失,每年热带原始林约1000万公顷,约75%,承载面积低于最小可存活种群 过度利用,年野生动物非法贸易估值70-230亿美元,约30%,直接压低成体存活率 入侵种,岛屿灭绝归因占比约86%,岛屿受胁物种约60%,巢捕食/竞争/疾病 气候变化,已致局部灭绝(如Bramble Cay短鼻袋鼠2016),约15%且快速上升,气候速度超过扩散速度 污染(农药等),新烟碱致蜂群方向觉损伤阈值ppb级,约20%,亚致死行为损伤
把两张账本合起来看:当 Ne 跌破 500,遗传漂变开始盖过选择的修音能力;跌破 50,近交抑郁每年都在兑现——这就是 IUCN 评级里 D 级门槛背后的算术。