6.3 合成生物学底盘:工程化的物种选择
6.3 合成生物学底盘:工程化的物种选择
本节摘要:合成生物学需要一个"运行异源基因线路的活体操作系统"——底盘。底盘不是随便一株好养的菌:它要在遗传稳定性、编辑工具链、生理鲁棒性与产品相容性上同时过关。本节讲底盘选型的四条标准、经典底盘的演进,以及"从模式菌走向新资源菌"的取舍逻辑——6.1 的四维评估框架在这里升级成工程版。
本节在知识地图上是 6.1 选菌框架的工程极端版:工业选菌挑现成的好手,底盘选型则在挑选"最可改造的身体"。两者共享鲁棒性与可培养性两个维度,差异在于底盘多了一个决定性维度——遗传可操作性。
底盘的四条硬标准
| 标准 | 含义 | 落地指标 |
|---|---|---|
| 遗传可操作性 | 编辑工具链成熟、基因线路可预测 | 转化效率、可用质粒与位点、屏蔽系统 |
| 生理鲁棒性 | 抗环境扰动、遗传稳定传代 | 生长速率、耐受窗、质粒丢失率 |
| 产品相容性 | 产物不被自己吃掉、易分泌 | 产物耐受、膜转运、副产物谱 |
| 安全与合规 | 环境释放或生产的监管门槛 | 生物安全等级、营养缺陷设计 |
第一条是底盘与普通菌株的分水岭:同一株性能优异的环境菌,若没有成熟的编辑工具链,改造周期按年计,工程价值直接归零。这也是模式菌垄断底盘席位的根本原因——不是它们天生最好,而是几代研究者给它们修好了全套"市政设施"。
经典底盘的演进
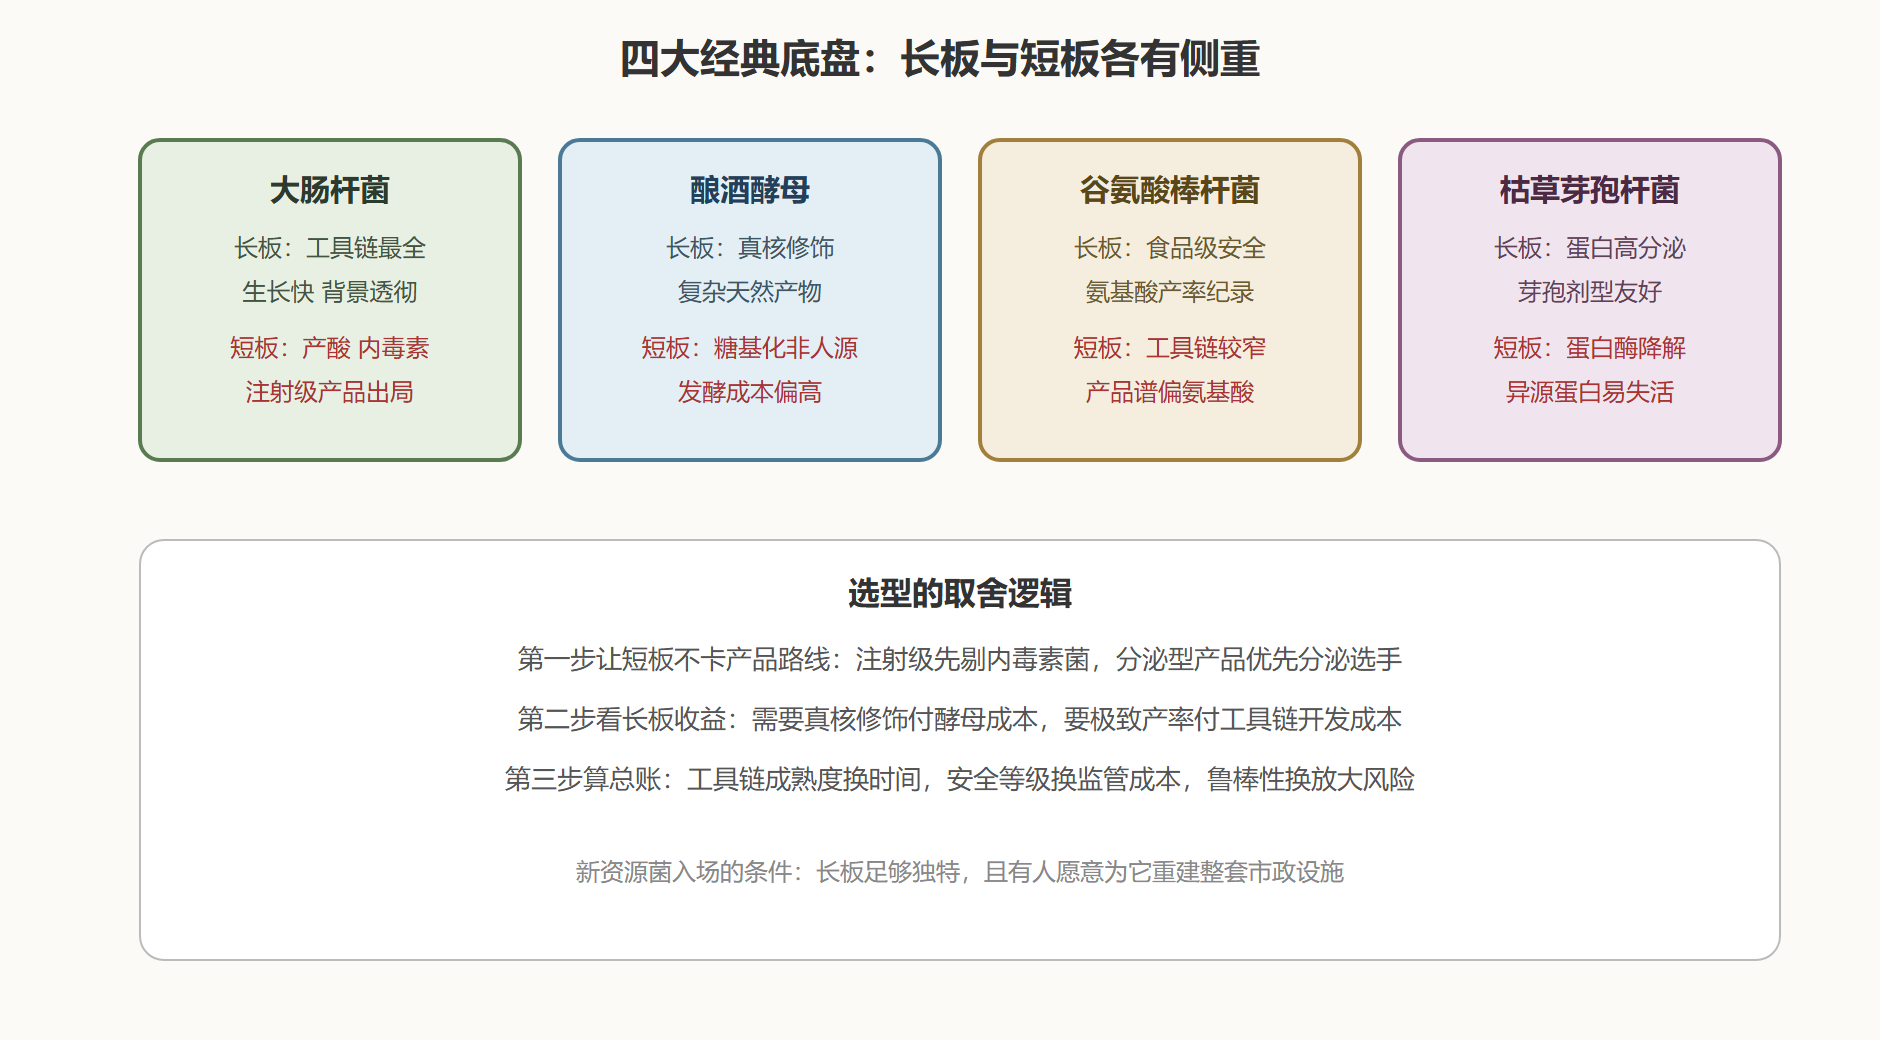
大肠杆菌:第一底盘,工具链最全、遗传背景最透彻,缺点是产酸与内毒素——后者把它挡在注射级产品的门外。它至今是基因线路设计的默认试验台。
酿酒酵母:真核底盘的代表,解决需要内质网、糖基化修饰的产物(疫苗蛋白、复杂天然产物)。青蒿素前体的半合成生产是它的代表作——植物通路在酵母里重组表达,再化学半合成收尾。
谷氨酸棒杆菌:工业氨基酸的老将,安全记录(食品级)让它免于大肠杆菌的内毒素问题,氨基酸类产品的产率纪录保持者。
枯草芽孢杆菌:分泌型选手,蛋白产物直接分泌到胞外,省去破壁提纯的大头成本;产芽孢能力还被顺手用于农药与饲料添加剂的剂型设计。
每个经典底盘都是"长板够长、短板有绕法"的产物。选底盘的第一课不是找完美选手,而是让短板不卡死产品路线。
图 1 四大底盘的能力雷达对比
从模式菌走向新资源菌
模式底盘的短板逼出了另一条路:把自然界的"特长生"直接开发成底盘。古菌的超嗜热酶生产线(高温发酵天然防染菌)、梭菌属的气体发酵(直接吃一氧化碳合成乙醇)、蓝细菌的光驱动固碳(原料是阳光与二氧化碳)——每个方向都对应模式菌够不着的生态位。
新资源菌的入场券是"长板足够独特",入场代价是"重建市政设施":遗传操作要重开发(2.1 讲过古菌的翻译机器特殊,细菌工具链直接搬过去基本失灵)、培养工艺要重摸索、安全档案要重建立。所以现实路径通常是折中的"混合策略"——把新资源菌的独特模块(一个耐热酶、一条固碳通路)搬进模式底盘运行,而不是整套搬家。这套"模块搬运"的策略能成立,靠的正是 5.1 讲过的机制:微生物基因天然具备跨物种的"可插拔性"。
⚠️ 常见坑:低估"底盘换新"的隐性成本。文献里的新底盘演示通常止步于实验室摇瓶,从演示到工业放大之间的工具链补全与工艺开发,投入常是前期研究的好几倍——评估新底盘时,这条成本线必须显式列入。
一条基因线路的落地清单
底盘选好之后,工程才刚开始。给一条"生产目标分子"的基因线路列落地清单,能看到前面各章的知识如何在这里集中兑现。
基因线路落地检查单(生产某天然产物为例) 一、通路拆解:目标分子的合成路径有几个酶?各酶来源宿主? ——跨物种的酶组合,依赖 5.1 的可插拔性,但要逐一验证表达活性 二、表达调控:每个酶的表达强度配比?过强积累中间毒物? ——代谢平衡问题,靠启动子库与强度梯度测试解决 三、辅因子与底物:宿主内源供给够不够? ——不够就要改宿主代谢(底盘改造),工程量按 6.1 第四维评估 四、稳定性设计:质粒会丢吗?突变株会"偷懒"吗? ——整合进染色体换稳定但丢柔性,质粒保柔性但靠压力维持 五、放大验证:摇瓶到中试,性能保住几成? ——6.1 复盘单的第一问与第五问在此重演
清单的第二与第四条是合成生物学独有的"物种知识税":表达调控的成败取决于宿主的转录翻译机器细节(2.1 的两域差异在这里变成实际参数),稳定性设计的成败取决于突变与选择的演化压力(5.1 的机制在这里变成每天都在发生的对手行为)。换句话说,底盘工程是用第 2 章的细胞知识付账、与第 5 章的演化机制博弈——这就是"底盘是活体操作系统"的完整含义:它不执行你的设计,它与你谈判。
生物安全与物种知识的关系
合成生物学的安全设计,本质是把物种知识转化为防事故工程。三层设计各有对应的物种学依据。
第一层,物理隔离:生物安全等级实验室、密闭发酵、废弃物灭菌——防的是"菌逃出系统",依据是 2 章的生理知识与 3 章的灭菌知识(还记得 2.2 说过朊粒不怕常规灭菌吗?蛋白类产物同样要走特殊灭活流程)。
第二层,营养依赖:营养缺陷设计——让底盘只能在补充特定营养的培养环境里存活,离开即死。依据是 3.2 的营养缺陷突变原理;这条设计的可靠性要按 5.1 的演化逻辑审计:细胞恢复营养合成能力的突变概率多大、选择压多强,需要实验数据而非假设。
第三层,遗传防火墙:改造遗传密码表、合成致死开关——细胞携带"非自然密码子"或依赖人工小分子,逃逸到自然界即无法解读自己的基因或断了补给。这是把中心法则与演化约束当成工程材料来用。
三层的共同哲学:安全不是承诺"不出事",而是把出事的概率压到演化机制都嫌麻烦的程度。这份职业态度与本册反复出现的"证据分级、边界自觉"一脉相承——微生物学教给人的从来不只是知识,还有与不确定性共事的分寸。
最后把底盘话题放回"物种资源"的大图里收个尾:底盘席位的竞争,本质是物种知识的资产化竞赛——谁的背景文献厚、工具链全、案例多,谁就吸纳更多的工程投资,形成"越常用越成熟、越成熟越常用"的循环。这个循环解释了 2.1 到 6.3 的一条长伏笔:为什么谱系章要花整整一章认主干——那张地图上每一个候选底盘的"市政设施"现状,都写在它所在谱系的研究史里。选底盘选到深处,拼的还是第 2 章与第 5 章的物种学功底。
往下一节望去,6.4 会把底盘话题接到它的极限场景——合成群落:当"操作系统"变成好几套互相通信的操作系统,可控性问题就从工程题升格为理论题。带着"单菌已熟练、多菌刚开始"的落差感进 6.4,你正好站在这门学科当前最真实的前沿线上。
常见问答
问:为什么不用大肠杆菌包打天下,还要开发那么多底盘?
答:因为产品相容性一票就能否掉它。大肠杆菌的工具链最全,但它不分泌多数真核蛋白、内毒素让医药产品提纯成本翻倍、耐热耐酸场景下鲁棒性不足——这三条各自独立地把一大类产品挡在门外。酵母接走真核蛋白,芽孢杆菌接分泌表达,工程微藻接光合路线,各自补的是大肠杆菌的短板而非重复建设。底盘多样性与 2.1 的谱系多样性是同一件事:谱系越宽,可选的「身体」越多,工程方案的解空间才越大。
本节要点回顾
- 底盘四条硬标准:遗传可操作性、生理鲁棒性、产品相容性、安全合规,第一条是与普通菌株的分水岭;
- 模式菌垄断的根源是几代人修好的工具链"市政设施",不是天生优异;
- 四大经典底盘各有长短板:选型先让短板不卡产品路线,再算长板收益与总账;
- 新资源菌的入场券是独特长板,代价是重建工具链,折中方案是模块搬运;
- 模块搬运的理论底气来自水平基因转移揭示的基因可插拔性——第 5 章机制篇的工程兑现;
- 底盘选到深处拼物种学功底:谱系章的地图,决定每个候选者的工具链现状与开发成本。