4.1 神经时间机制
4.1 神经时间机制
大脑如何编织时间之网:海马、小脑与后顶叶的分工
我们常以为时间是外在刻度——钟表滴答、日影西斜。可当一个人在黑暗中闭目静坐仍能判断「已过去三秒」,或在钢琴家触键前 200 毫秒小脑已校准肌肉张力,时间就不是被「读取」,而是被生成。神经时间机制是一套内源性、多尺度、具身化的生物计时架构:不是单一「时间中枢」,而是海马体(事件序列)、小脑(毫秒级运动计时)、后顶叶皮层 PPC(空间-时间预测整合)等子系统通过环路对话,协同产出可操作的时间判断。
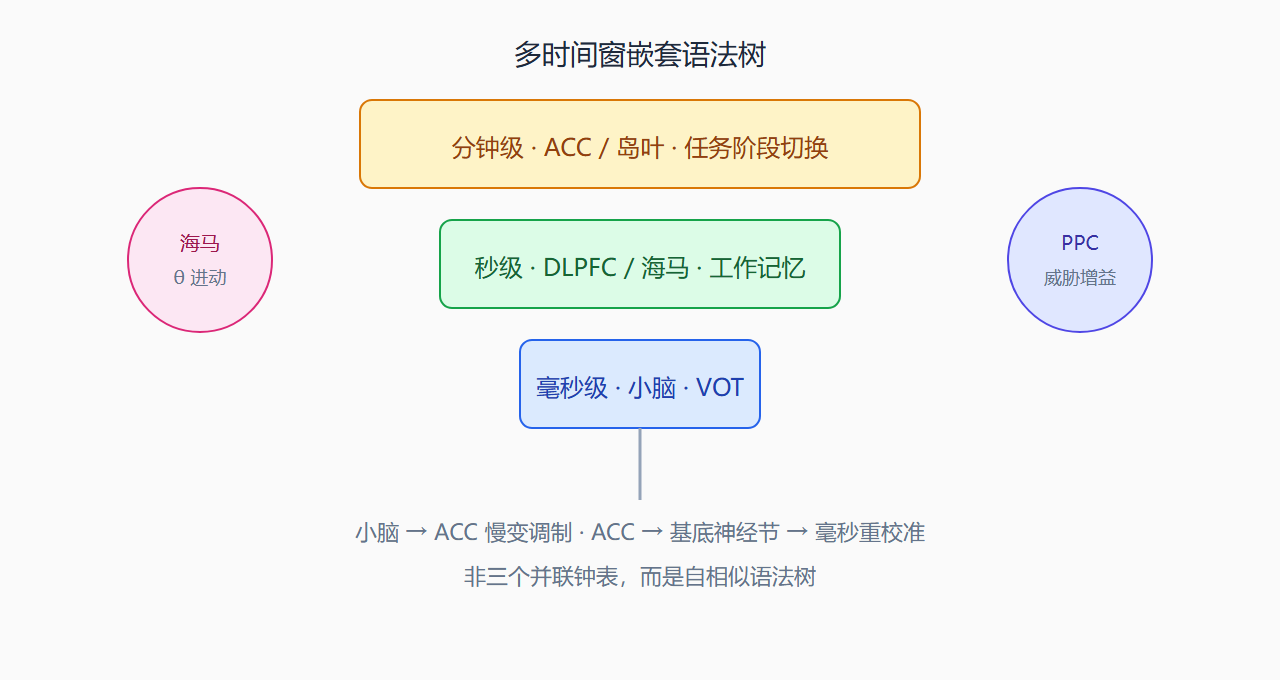
一、分布式网络:没有主时钟,只有语法树
传统模型假设存在某处「时间中枢」。fMRI 与单细胞记录反复证伪这一假设:判断两个声音间隔是否相等时,激活横跨基底神经节、小脑、辅助运动区 SMA、背外侧前额叶 DLPFC 与顶叶联合皮层;不同脑区神经元呈现截然不同的放电模式——基底神经节爆发式放电后衰减,小脑浦肯野细胞维持「滴答」式发放,前额叶在延迟末期选择性增强。它们不共享同一套编码语言,却协同产出一个判断。
最新 fMRI 显示:受试者判断「两段声音哪个更长」时,顶叶激活模式与判断「两个物体哪个更重」高度重叠。大脑并未进化专用计时模块,而是征用空间处理、运动预测与情绪评估的既有回路,临时组装时间感。时间知觉是具身化、情境嵌入、目标导向的实时推断,可表述为贝叶斯框架:
其中 s 为感觉输入,a 为注意状态,g 为目标意图——主观时长是多重线索的预测性建构,而非 t_{\text{subjective}} = f(t_{\text{objective}}) 的单变量映射。
| 脑区 | 时间窗 | 核心功能 | 典型任务 |
|---|---|---|---|
| 小脑 | 10–300 ms | 运动预测、节律校准、VOT 分辨 | 语音切分、手眼协调 |
| 海马体 CA1 | 0.5–30 s | θ-γ 耦合、相位进动编码序列 | 路径记忆、事件排序 |
| DLPFC | 秒–分钟 | 工作记忆、规则维持 | 延时匹配、任务切换 |
| PPC | 跨尺度 | 多模态整合、主观膨胀调制 | 威胁下时间延展 |
| 前扣带回 ACC | 分钟级 | 目标阶段、错误监测 | 截止前冲刺、任务切换 |
⚠️ 常见误解:把「起搏器-累加器」理解成颅内的物理芯片。现代版本是动力学协议:多巴胺调节置信度权重,小脑深部核团在预期时刻前约 50 ms 出现预测门控 IPSP——是概率积分,不是机械计数。
💡 关键直觉:帕金森病的时间障碍不仅是「走得慢」,更是丧失「何时该启动新动作」的时机判断——存在论层面的时间失能,远超运动康复范畴。
二、海马体:把空间路径写成时间序列
海马体 CA1 区神经元在执行空间导航任务时,呈现 θ 相位进动(phase precession):同一位置细胞在不同 θ 周期内于更早相位放电,将空间轨迹压缩为时间序列。MIT Human Brain Project 与 EU 相关项目将位置细胞放电序列建模为时序自动机——路径即时间轴。
当受试者经历主观时间膨胀(如跳伞初学者感觉坠落漫长),海马 CA3 对事件序列的时序编码精度同步提高;恐惧下 V1 波动频率提升约 23%,单位时间内「时间切片」更密。海马不是被动记录钟点,而是按行为目标动态调整序列采样率。
前额叶 γ 振荡对海马序列做「快照」,将连续轨迹离散为记忆事件。θ-γ 交叉频率耦合(CFC)是秒级与毫秒级窗口的语法粘合剂——TMS 以 10 Hz 刺激小脑可诱导 CFC,使失语症患者 VOT 阈值从 85 ms 降至 42 ms,语言理解正确率提升 37%。
三、小脑:毫秒世界的校准师
毫秒级窗口对应感觉运动闭环。/ba/ 与 /pa/ 的区分依赖 40–80 ms 的嗓音起始时间 VOT;击球时小脑须在约 120 ms 视觉反馈延迟内完成预测。载体是皮层-小脑短潜伏期环路,时间分辨率达亚毫秒级。
现代「累加器」模型:小脑深部核团在重复节律下于预期时刻前出现抑制峰,形成时间预测门控。状态变量 s(t) 服从:
非线性饱和正是主观时长随物理时长延长而「压缩」的数学根源。2023 年《自然·神经科学》纵向研究:每日刷短视频超 2 小时的青少年,小脑浦肯野细胞对毫秒间隔分辨力下降 37%,戒断 6 个月仍未恢复——微观校准器被数字噪声永久漂移。
小脑齿状核向 ACC 投射的慢变调制(<1 Hz)构成秒级「元节拍」;ACC 的 θ 经腹侧纹状体反向调节基底神经节多巴胺,闭环调控毫秒起搏频率。
四、PPC 与威胁-预测整合
后顶叶皮层 PPC 与前岛叶在主观时间膨胀时耦合增强,相位同步与外部刺激时长无简单线性关系,却与杏仁核激活高度相关。PPC 长期参与空间注意与运动意图推断;当系统评估威胁或新奇度时,PPC 将空间-时间预测网络切换为高增益采样模式——客观秒数未变,神经表征的事件密度增加,主观 τ 拉长。
这与 PPC 在「重量判断」与「时长判断」中重叠激活一致:时间感借用空间度量与运动预期的神经基础设施。自动驾驶 HUD 每 200 ms 更新进度环,可将对 150 ms 系统延迟的主观耐受延长至 320 ms——ACC 将延迟纳入「目标达成」叙事,压制基底神经节误差信号。
神经时间窗嵌套结构
| 干预场景 | 靶点 | 机制 | 效果示例 |
|---|---|---|---|
| 失语康复 | 小脑 TMS 10 Hz | 重建 θ-γ CFC | VOT 85→42 ms |
| 课堂设计 | DLPFC fNIRS | 7–9 分钟负荷拐点 | 7+3 微课留存 +52% |
| 人机交互 | ACC 叙事框架 | 延迟语义重标定 | 150 ms 延迟主观可耐受至 320 ms |
五、从机制到开放问题
临床:时间修复即功能重建——中风后语流边界障碍,本质是毫秒窗同步崩解。
教育:45 分钟课违背 DLPFC 秒级窗口;7+3 微课将「时间」从容器改为认知约束参数。
AI 对照:大模型用 RoPE 位置编码模拟序列距离,是否拥有「时间感」?若 AGI 需在真实世界行动,是否必须演化出基底神经节式误差起搏、小脑式校准与前额叶式跨窗语法树?
未竟之三问:时间与意识的因果边界(麻醉下 γ 崩溃而 θ 仍存);跨物种时间标度进化(蜂鸟小脑颗粒密度为人类 3 倍);人工系统能否拥有神经时间机制。
人类用线性 t 描述世界,却用非线性、分形、自参照的神经动力学生成 τ。读懂大脑如何编织时间之网,或许就触到了意识最幽微的经纬。
⚠️ 实践警示:5G 远程手术若只优化物理时延而忽视 PPC-ACC 对 200 ms 以上延迟的疏离感,医生接管意愿仍会骤降——工程时间须对接神经时间。
💡 设计原则:不是让大脑适应机器节拍,而是在关键界面为毫秒窗、秒窗、分钟窗分别留出可协商的缓冲与语义包装。
六、观测方法:从 fMRI 到颅内记录
神经时间研究已从「定位脑区」进入「解码协议」阶段。fMRI 提供空间分辨率,MEG/EEG 提供 ms 级时间分辨率,颅内电极(癫痫术前监测)则给出 CA1 单细胞与 θ 相位进动的直接证据。高密度 fNIRS 显示 DLPFC 在记忆负荷 3 秒节点出现氧合血红蛋白平台——与 Baddeley 语音回路 ~2 s 窗口一致。
实验范式:时距 reproduction(复制时长)、时距 discrimination(比较两段间隔)、节奏同步 tapping(节拍对齐)——三类任务激活重叠但权重不同:tapping 偏重小脑-基底神经节;reproduction 偏重前额叶-海马;discrimination 额外调用 PPC 比较运算。
跨物种对照:蜂鸟小脑颗粒细胞密度为人类 3 倍,支撑悬停 ms 闭环;大象海马 CA3 模式分离能力支撑分钟-小时级社会记忆。时间窗尺度或是代谢约束下的最优解,或是生态位特化——时间学拒绝人类中心主义计时模板。
七、与第 3、5 章的接口
物理秒(第 3 章 TAI/UTC)提供外部锚;神经机制解释为何同一 UTC 秒在司机、交易员、冥想者体内承载不同 τ。第 5 章 HFT 在 37 ns 尺度运作,而人类最快反射弧 ~100 ms——八数量级鸿沟要求人机界面必须翻译时间语义(进度环、预通知),而非假设「客观同时 = 主观同时」。
中国「脑科学与类脑研究」专项中的多尺度神经时序编码框架,与 TD-AI(5.3)共享目标:把生物协议形式化,而非用单一 LSTM 隐状态压缩数小时活动。
八、小结:生成而非读取
神经时间机制的核心命题不变:时间在环路中被生成、整合、使用。海马写序列,小脑校准 ms,PPC 在威胁下提高采样增益——分布式、异构、嵌套。理解这一层,才能解释心理扭曲(4.2)的可塑性边界,以及文化脚本(4.3)如何在大脑可承受范围内编排集体节拍。
⚠️ 研究伦理:颅内记录数据涉及高度敏感个体;公开教学案例须去标识,并说明结论来自群体统计而非个体诊断。
💡 读者实验:闭眼估时 10 秒后睁眼对表——误差 >15% 时回忆当时是否处于低唤醒(低估)或焦虑(高估),体验贝叶斯先验如何写入 τ。
九、深读:θ-γ 耦合与「时间细胞」
时间细胞(time cells) 与 place cells 类似,在任务延迟期放电,编码「已过去多久」——进一步证伪「单一时钟」神话。θ-γ 耦合将低频相位作为分段容器,高频 γ 作为内容打包;麻醉破坏 γ 而保留部分 θ 时,时间知觉消失但序列骨架可能残存——提示意识宽度与 γ 绑定。
默认模式网络 DMN 在自传体回忆与未来模拟中活跃,构成分钟–小时级「心理时间旅行」的 neural correlate。迷幻剂增强 DMN-小脑超同步,主观 τ 可延展数倍—— pharmacology 是探测机制的工具,也警示化学调制时间主权的伦理(连 6.1)。
SCN 主钟(视交叉上核)管 circadian,与 ms 级小脑环路分层——跨尺度耦合接口(光照重置 SCN 又触发 ipRGC 毫秒电位)体现源材料「标度耦合原理」:宏观→中观→微观双向调制,非线性、时滞、有记忆效应。
| 振荡 band | 关联时间窗 | 功能 |
|---|---|---|
| γ (30–80 Hz) | ms–s | 特征绑定、意识窄窗 |
| θ (4–8 Hz) | s | 序列分段、工作记忆 |
| 慢振荡 <1 Hz | min | 任务阶段、元节拍 |
这一表把 4.1 与 2.2 多标度结构(教程他章)对齐:神经实现是物理-生物-认知共振环在颅内的缩影。读者若已读第 2 章,可回对照「标度耦合原理」——光照重置 SCN 又触发 ipRGC 毫秒电位,正是宏观→微观双向调制的教科书例。
⚠️ 科普边界:向公众展示「无专用计时模块」不等于「大脑不计时」——分布式生成同样承担精确功能,只是拒绝简单钟表隐喻。