3.1 营养器官的结构-功能耦合
3.1 营养器官的结构-功能耦合
本节摘要:结构与功能之间没有一本对译词典,只有一份随时被多重信号改写的运行协议。本节沿分子、细胞、器官、群体、生态系统五个层级展示耦合如何跨尺度联动,分别拆解根、茎、叶三大器官的协作逻辑,最后落到两类应用——以结构参数为目标的智能育种、以耦合关系为核心的生态修复。核心命题:形态是功能在拓扑上的解,耦合是植物活下去的根本算法。
学习目标
学完本节,你应当可以:
- 用实际例子推翻"根管吸水、茎管输导、叶管光合"的静态分工观;
- 说出耦合所在的五个层级,并描述一次干旱信号如何在层级间传播;
- 比较直根系、须根系与菌根特化根三种策略的差别;
- 解释为什么C4花环结构与CAM大液泡是"生化路线的硬性容器";
- 分别为结构导向育种与耦合驱动修复举一个实例。
一、先破直觉:耦合是个动词
教科书把"根吸水、茎输导、叶光合"写成铁律,好像器官是各管一段的零件。反例其实俯拾皆是:干旱胁迫下的玉米,会把四成新生的根定向送往仍然湿润的土壤微域;兰科附生植物的根皮层细胞在无菌环境里只是普通薄壁细胞,一旦接触共生真菌,立刻膨大成塞满菌丝的菌丝团;景天科植物则按昼夜节律办事——夜里开气孔固定二氧化碳存成苹果酸,白天关气孔、脱羧放出二氧化碳供碳同化。三个例子分别对应向水性、共生可塑与代谢时序,合起来说明一件事:结构对应不了固定功能,这层关系随时被激素梯度、水势梯度、光质光量、微生物代谢物和机械应力改写。
所以研究耦合的第一步,是把"看到结构就归因功能"的反射拆掉,换成三个追问:这套结构经由哪条发育路径生成?哪些物理约束让它成为功能上的优选?什么样的环境扰动又能把已经形成的耦合关系改掉?耦合是动词而非名词,是过程而非状态,是提问方式而非答案。
二、耦合的层级:五重共振
耦合同时在五个层级上运转,且互相牵动。
分子与亚细胞层面:液泡膜质子泵的活性决定细胞膨压,进而决定气孔开度——一个磷酸化状态的变化,直接换算成整株水分利用效率的波动。细胞与组织层面:栅栏组织排成柱状、叶绿体沿长轴定向,等于放大了单位叶面积的光捕获截面;海绵组织的胞间隙互相连通,给二氧化碳留出低阻通道——这个层面的结构就是气体交换的流体力学方案。器官与个体层面:须根系靠高分枝密度抢占表层速效养分;直根系靠主根深扎,在干旱贫瘠处向纵深勘探。个体与群体层面:林下草本把叶片放大、调高叶绿素b的比例,是对弱光的结构代偿;冠层乔木则用厚角质层和高栅栏组织比硬扛强光氧化——同一个种会因微生境不同而执行不同的结构程序。个体与生态系统层面:杜鹃花类菌根的真菌分泌草酸,把难溶的磷和铁溶出来;兰科种子萌发要靠胶膜菌提供最初的碳源——根早已不是独立器官,而是植物与真菌之间的功能界面。
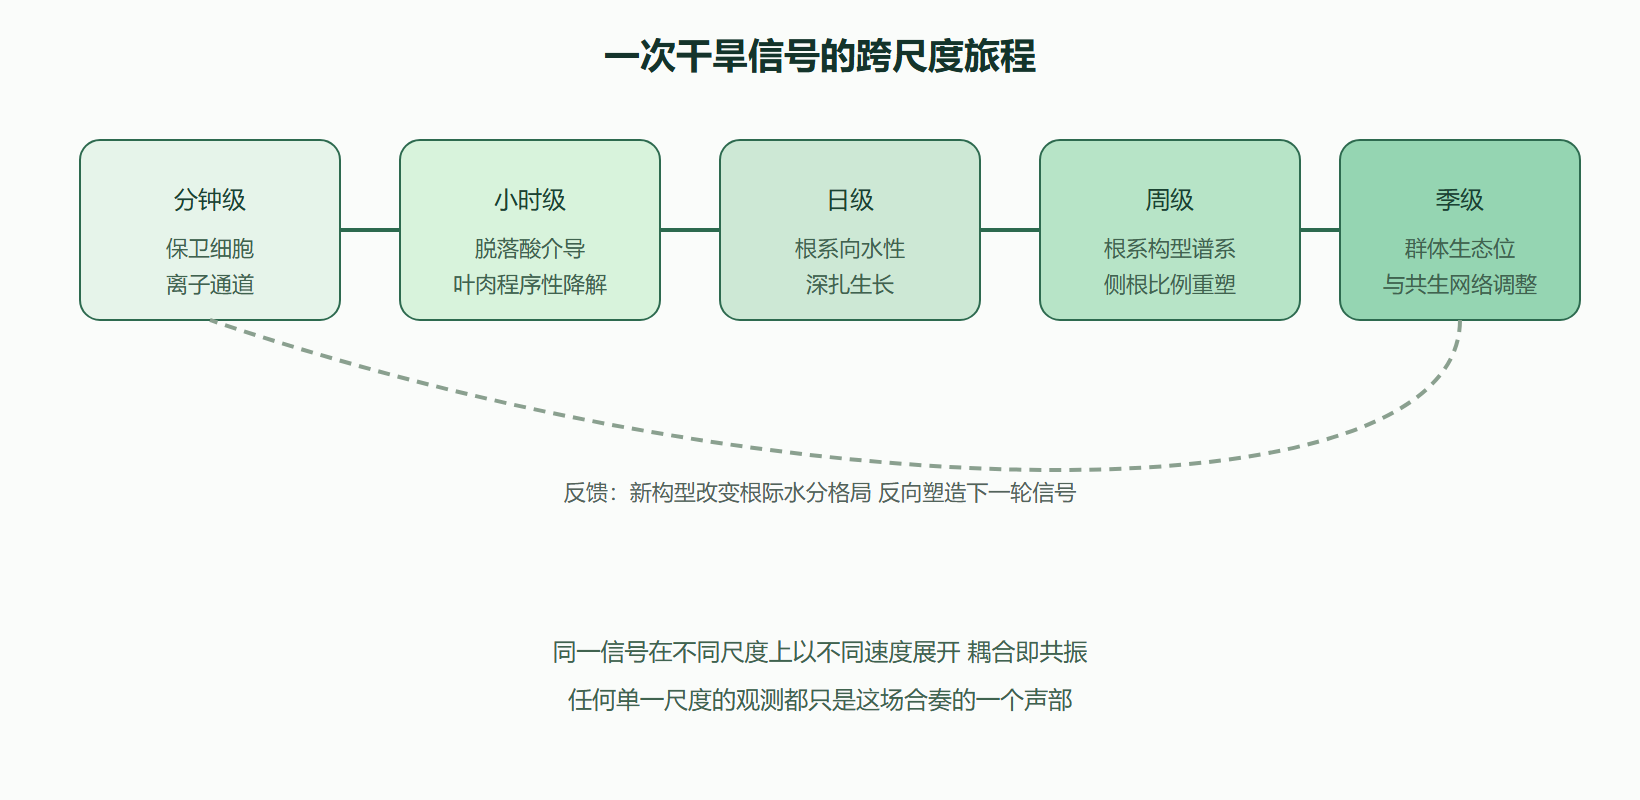
五个层级同时运行、彼此回馈。来一次干旱信号试试:分钟级,保卫细胞离子通道的开合概率改变;小时级,脱落酸介导的叶肉细胞程序性降解被诱导;日级,根系出现向深层的向水性生长;周级,整株根系构型被重排。所谓耦合,就是这一场跨尺度的合奏。
表 五个尺度的耦合要素与响应时间
| 尺度 | 关键结构 | 功能输出 | 典型响应时间 |
|---|---|---|---|
| 分子亚细胞 | 质子泵 离子通道 | 膨压与气孔开度 | 分钟级 |
| 细胞组织 | 栅栏与海绵组织排布 | 光捕获与气体扩散 | 小时到日级 |
| 器官个体 | 根系构型 茎节间 叶倾角 | 资源获取与支撑 | 日到周级 |
| 个体群体 | 叶大小与叶绿素配比 | 微生境功能分工 | 季节级 |
| 生态系统 | 菌根界面 共生网络 | 养分活化与碳循环 | 年到十年级 |
三、三根支柱:根、茎、叶的工程协作
**根:植物埋在地下的神经网络兼血管系统。**直根系的主根—侧根等级结构,给了植株锚定力和向深处探索的潜力;须根系走数量路线,靠高周转率在养分斑块化严重的农田里广撒网。菌根共生则干脆改写了"根"的定义:兰科种子没有胚乳,微小的胚必须先被真菌侵染,贮藏蛋白的分解与细胞分裂才启动;杜鹃花科的根皮层高度液泡化,等于给真菌腾出代谢客房,真菌则以有机酸螯合矿物元素作为房租。到了这个地步,根的边界已经溶解在共生界面上——它实质是一段由两个基因组共同编译的可编程接口。
**茎:骨架、管道、仓库三合一。**木质茎的次生生长不只是变粗,更是形成层按季节信号对早材晚材做的时序编程——早材导管大而壁薄,便于输水;晚材导管小而壁厚,抗气穴化。变态茎更能说明功能目标如何重写发育路径:马铃薯块茎是地下匍匐茎末端的贮藏性膨大,薄壁细胞里塞满淀粉体;洋葱鳞茎是短缩茎盘上肥厚叶鞘的嵌合表达;草莓匍匐茎靠节间伸长加节上不定根完成克隆扩张。茎的这些"变体"没有一个是猎奇,全部是贮藏、繁殖、越冬、扩展等目标的重新立项。
**叶:朝天的太阳能电站兼水汽交换站。**等面叶上下表皮都有栅栏组织,是给强光高温准备的冗余设计;异面叶用厚角质层加栅栏上表皮、高密度气孔下表皮,把光捕获与气体交换在时空上分开。三种光合途径的差异更远不止酶系那一点:C4植物的花环结构,要求维管束鞘细胞富含叶绿体且没有光系统II活性,其发育受径向位置基因的精确调控;CAM途径则要求叶肉细胞长出占体积九成以上的巨型液泡,用来囤积夜间固定的苹果酸——在这两种情形里,结构干脆成了生化路线的硬性容器。旱生叶的三件套(加厚角质层、下陷气孔、密集毛状体)也自成体系:角质层管防水,下陷气孔制造局部高湿微环境以压低蒸腾梯度,毛状体反射强光又阻碍对流——这不是零件的堆放,是一整套集成式微气候管理方案。
💡 关键直觉:看到一种结构,先问它装着什么功能;看到一种功能,再问它需要什么结构来装。来回两问,耦合自然现形。
四、技术框架:从经典解剖到多模态解析
看清耦合需要相应的仪器。原位动态成像方面,同步辐射断层扫描能以亚微米分辨率、在不伤活体的前提下重建根系的三维构型及其在土中的实时生长轨迹;激光片层显微镜则让荧光标记的维管束发育像电影一样逐帧播放。功能—结构关联方面,把叶脉密度、气孔密度、比叶面积与稳定碳同位素值组合起来,可以反演植物长期的水分利用效率;高光谱成像配合偏最小二乘回归,能无损估出叶肉细胞的排列指数。发育编程的解码靠基因编辑:敲除水稻理想株型基因后节间缩短、分蘖增多,转录因子对茎构型的编码关系由此被直接验证。共生界面则交给聚焦离子束扫描电镜——对兰科根切做纳米级三维重构,可以看清真菌菌丝如何穿破皮层细胞壁、再被宿主膜包裹成菌丝团。
五、应用范式:育种设计与生态修复
**结构导向的智能育种。**传统育种盯着产量与抗性表型,耦合理念提示可以直接把结构参数当靶子:选育根构型理想的水稻(主根更陡、浅层侧根更密),抗倒伏与氮吸收可以一起改善;设计高光效叶型的玉米(叶倾角适度放低、上部叶片栅栏组织比提高),密植时冠层互相遮荫的程度随之下降;创制CAM型作物(导入景天酸代谢核心基因,同时扩容液泡、改造气孔运动节律),有望让C3作物的水分利用效率提高三成以上。这不是碰运气的筛选,而是照着耦合原理做设计。
**耦合驱动的生态修复。**修复重金属污染土壤时,可选用柠檬酸分泌能力强、皮层细胞富含金属硫蛋白的东南景天——它的大量根毛与薄壁皮层,正好同螯合、转运、液泡区隔这一串功能严丝合缝。喀斯特石漠化地区则优先配置兼具丛枝菌根与杜鹃花类菌根双重共生能力的木本豆科:根系能钻岩石缝隙,菌丝网络又能把吸收范围再外推一圈。修复方案的层次由此从"种什么"上升到"构建哪种耦合关系"。
⚠️ 常见坑:在单一胁迫下评价结构优劣。为抗倒伏选出的粗壮茎秆,遇上渍水反而因为皮层通气组织发育受抑而烂得更快——复合胁迫之下,单项冠军可能正是致命短板。
实操:用叶脉-气孔配置反演水分策略
叶片解剖参数只要成组出现,就能当作功能指纹使用:
traits = { # 品种: (叶脉密度 mm/mm2, 气孔密度 个/mm2, 碳同位素判别‰) "水稻传统种": (4.2, 380, 21.3), "水稻旱改水选系": (6.8, 290, 18.7), "谷子": (7.5, 240, 17.9), "玉米": (8.1, 120, 14.2), } for v, (vd, sd, dv) in traits.items(): wue_proxy = "高" if dv < 17 else ("中" if dv < 20 else "低") print(f"{v:10s} 韧皮供给能力: {vd:.1f} | 蒸腾阀门规模: {sd} | 长期水分利用效率: {wue_proxy}")
三列数字连读即可看出规律:叶脉密度越高的材料,气孔密度往往越保守——输导能力与失水阀门在设计上互相咬合,这正是功能-结构耦合落在表格上的样子。
实操:根系构型三策略对照卡
策略 代表 结构要点 功能定位 直根系 大豆 主根-侧根等级分明 深层水源勘探+锚定 须根系 小麦 不定根密集+高分枝 表层速效养分快循环 菌根特化根 兰科/杜鹃 无根毛, 皮层成真菌客房 养分活化外包给共生体
图 结构-功能耦合的跨尺度反馈环
一节小结
- 要点一:结构与功能是活态协议——向水性、共生可塑、CAM时序都证明不存在翻译词典。
- 要点二:耦合在五个层级同步运行,一次干旱信号从分钟级的通道响应一路传到周级的构型重排。
- 要点三:菌根共生溶解了根的边界,使其成为两个基因组合编的可编程界面。
- 要点四:花环结构与超大液泡分别是C4与CAM的刚性容器——生化需求要结构买单。
- 要点五:旱生叶三件套是集成式微气候系统,不是零件堆砌。
- 要点六:结构导向育种把选育目标从表型换成结构参数;耦合驱动修复把方案从"种什么"换成"构建什么关系"。
- 要点七:单一胁迫下的优势结构,换到复合胁迫下可能变成短板。
活下去的算法讲完,下一节讲传下去的算法:花如何谈判,果实如何远征。