4.1 生境梯度上的物种分布规律
4.1 生境梯度上的物种分布规律
生境梯度是水分、光照、温度、盐分等环境因子沿空间连续变化形成的轴线;植物种类沿梯度呈规律性更替,本质是每个物种的生理耐受边界与竞争能力共同筛选的结果。掌握梯度思维,就能从"看山是山"进阶到"看山见带"。
学习目标
阅读完本节,你应当能够:
- 用耐受性生态位模型解释物种沿梯度呈钟形分布的原因;
- 区分生理最适区与生态最适区的差异;
- 读解一座山的垂直带谱并说明其成因;
- 用真实案例说明盐度、水分两类梯度上的种类替换。
一、从一座山的剖面说起
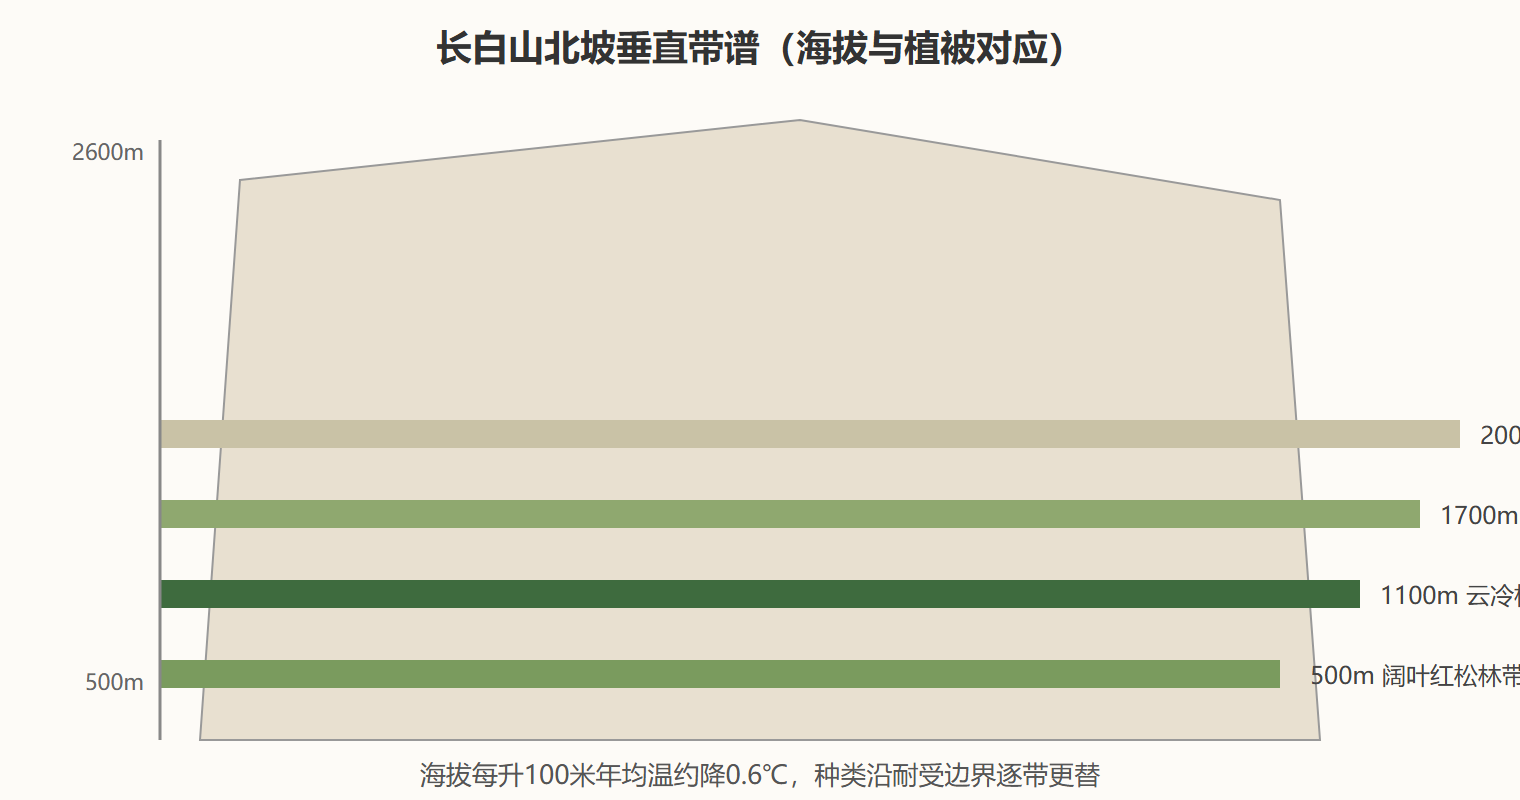
长白山从山脚到山顶直线距离不足 60 公里,却浓缩了从温带森林到高山苔原的完整序列:海拔 500–1100 米是蒙古栎与红松混交林,1100–1700 米过渡为鱼鳞云杉、臭冷杉为主的暗针叶林,1700–2000 米是岳桦矮曲林,2000 米以上则是牛皮杜鹃、笃斯越橘构成的高山苔原。这段序列不是随机拼贴——每上升 100 米,年均温下降约 0.6℃,生长季缩短约 10 天,风速与紫外线强度同步攀升。树种沿海拔"排好队",排队的依据就是各自对低温、风蚀与土壤冻融的耐受上限。
这就是生境梯度的直觉:环境连续变化,种类阶梯替换。
图 长白山北坡垂直带谱示意
二、耐受性法则:为什么分布是钟形的
Shelford 的耐受性法则指出:每个物种对任一环境因子都存在耐受下限、最适区与耐受上限。把"生长表现"对"因子强度"作图,得到一条单峰曲线。红松在土壤含水量中等的坡地长势最好,过干的山脊与过湿的谷底都被排除——它的现实分布是一条被两端截断的钟形曲线。
但野外观察到的分布常常比生理实验测出的范围更窄,原因在于竞争压缩:一个物种在生理上能忍受的区域,可能被竞争力更强的邻居挤出去。实验室里测得的是生理最适区,野外实际占据的是生态最适区。北美西黄松在温室里能耐受远比野外湿润的土壤,但在野外,湿润生境被生长更快的冷杉占住,西黄松被"挤"到了相对干旱、自己反而更占优势的坡地。
💡 关键直觉:梯度上的分布边界,一半由生理画线,一半由邻居画线。
三、两条经典梯度上的种类替换
盐度梯度——潮间带盐沼。 华东海岸盐沼从海向陆盐度递减,种类呈整齐带状:高潮带是耐受极限的盐角草(肉质化茎、无叶片,靠细胞液稀释盐分),中潮带是互花米草与碱蓬(泌盐或聚盐机制),低潮带上缘是不耐盐、依赖淡水的芦苇。每条带的向海边界由耐盐上限决定,向陆边界由竞争上限决定。
水分梯度——从荒漠到雨林。 沿降水增加的轴线,植被由荒漠(骆驼刺、梭梭,深根系、气孔日间关闭)→ 草原(针茅、羊草)→ 落叶阔叶林(栎类)→ 常绿阔叶林(栲、青冈)→ 雨林(龙脑香科)逐级替换,叶片形态随之从针状、鳞状到大型革质再到大型膜质连续变化。Whittaker 1975 年将温度与降水两轴交叉,绘出全球植被类型的二维格局图——梯度思维最经典的产物。
四、梯度分析的实践要点
| 梯度类型 | 关键因子 | 代表性种类替换 | 调查方法 |
|---|---|---|---|
| 海拔梯度 | 温度、风速、UV | 红松→云杉→岳桦→苔原 | 样带法,每100m设样方 |
| 盐度梯度 | 土壤含盐量、淹水频度 | 盐角草→互花米草→芦苇 | 沿高程断面取样 |
| 水分梯度 | 土壤有效水 | 骆驼刺→针茅→栲类 | 含水率与盖度联合分析 |
| 光照梯度 | 林内透光率 | 晒不死的天南星→舞鹤草→苔草 | 冠层下照度梯度读数 |
| 养分梯度 | 土壤氮磷有效性 | 贫瘠沙生先锋→中生种类 | 施肥控制实验验证 |
⚠️ 常见坑:把海拔带谱直接当温度解释。海拔升高伴随的风速增大、土层变薄、积雪期延长往往比温度本身更致命;单因子归因会误判限制因子。正确做法是多因子同步监测,再用排序分析(如降趋对应分析)找出真正驱动种类更替的主轴。
五、动手算一条响应曲线
耐受性法则不必停留在示意图层面,几行代码就能把一条真实的海拔梯度数据拟合成高斯响应。长白山北坡样带上的鱼鳞云杉,各海拔的更新苗密度如下:
import numpy as np alt = np.array([1100, 1250, 1400, 1550, 1700, 1850]) # 海拔(m) dens = np.array([18, 47, 96, 120, 61, 9 ]) # 更新苗密度(株/hm2) mu = (alt * dens).sum() / dens.sum() # 加权最适海拔 sd = np.sqrt((dens * (alt - mu)**2).sum() / dens.sum()) tol_low, tol_high = mu - 2*sd, mu + 2*sd print(f"生态最适海拔约 {mu:.0f} m, 容忍带宽 ±{2*sd:.0f} m") print(f"按95%耐受带预测: {tol_low:.0f}–{tol_high:.0f} m 之外基本退出群落")
拟合结果落在 1300–1650 米一带,与野外调查的暗针叶林核心带几乎重合——钟形曲线不是教材插图,而是可以从样方数据里长出来的定量结论。若把同样的代码改跑蒙古栎的密度列,它的最适海拔会掉到 800 米附近,两个钟形一高一低、部分交叠,"阶梯替换"在数字上表现为峰值错位而非互斥边界。
排序分析的操作序列同样可以写成一份速查:
步骤1 沿海拔每100m布设20m x 20m样方, 记录种盖度矩阵 步骤2 去趋势对应分析DCA排序, 提取前两轴 步骤3 将样方得分与环境因子(温度/风速/土层厚)做envfit相关 步骤4 检验: 第一轴与年均温r=0.91(p<0.001), 与风速r=0.35(ns) 结论 该山体种类更替的主驱动轴是温度而非风速
本节要点回顾
- 生境梯度:环境因子沿空间连续变化,种类沿其呈带状更替。
- 钟形分布:耐受下限—最适区—耐受上限决定单峰响应曲线。
- 双重边界:向胁迫端由生理画线,向优适端由竞争画线。
- 垂直带谱:长白山 60 公里浓缩森林到苔原序列,是梯度规律的天然展台。
- 二维框架:温度×降水双轴可解释全球植被宏观格局。
- 调查要诀:样带+多因子监测+排序分析,避免单因子归因。