1.1 核心定义与学科定位:查家谱这门生意的章程
1.1 核心定义与学科定位:查家谱这门生意的章程
本节摘要:分类学是用可检验的规则为生命单元命名、归档并推断亲缘关系的学科,它由命名、鉴定、归类、推演四道工序构成,与系统学、演化生物学构成同一个侦缉流程的三段分工。判断一个研究是否属于分类学,看它是否在产出可交流、可索引、可验证的物种单元及其关系。
上一章的案卷已经摊开,但"这只蛾是谁"这个问题还悬着。本节先不碰蛾子,而是把"查家谱这门生意"的章程写清楚——它管多宽、分几道工序、和相邻学科怎么分工。这是全书的操作手册页,往后的每一章都会引用这里的术语和分工。
先纠正一个流传很广的说法。很多人以为分类学就是"给生物起名字",这话只对了一小块。圈内老手归档一项新研究时,用的是一句行话:"看它是在给实体立档,还是在给关系定位,还是在给机制解释。"这三个问号分别对应三件事:分类学负责立档,系统学负责定位,演化生物学负责解释。它们不是递进关系,更像同一个案子的三组办案人。
一、把"分类"拆成四道工序
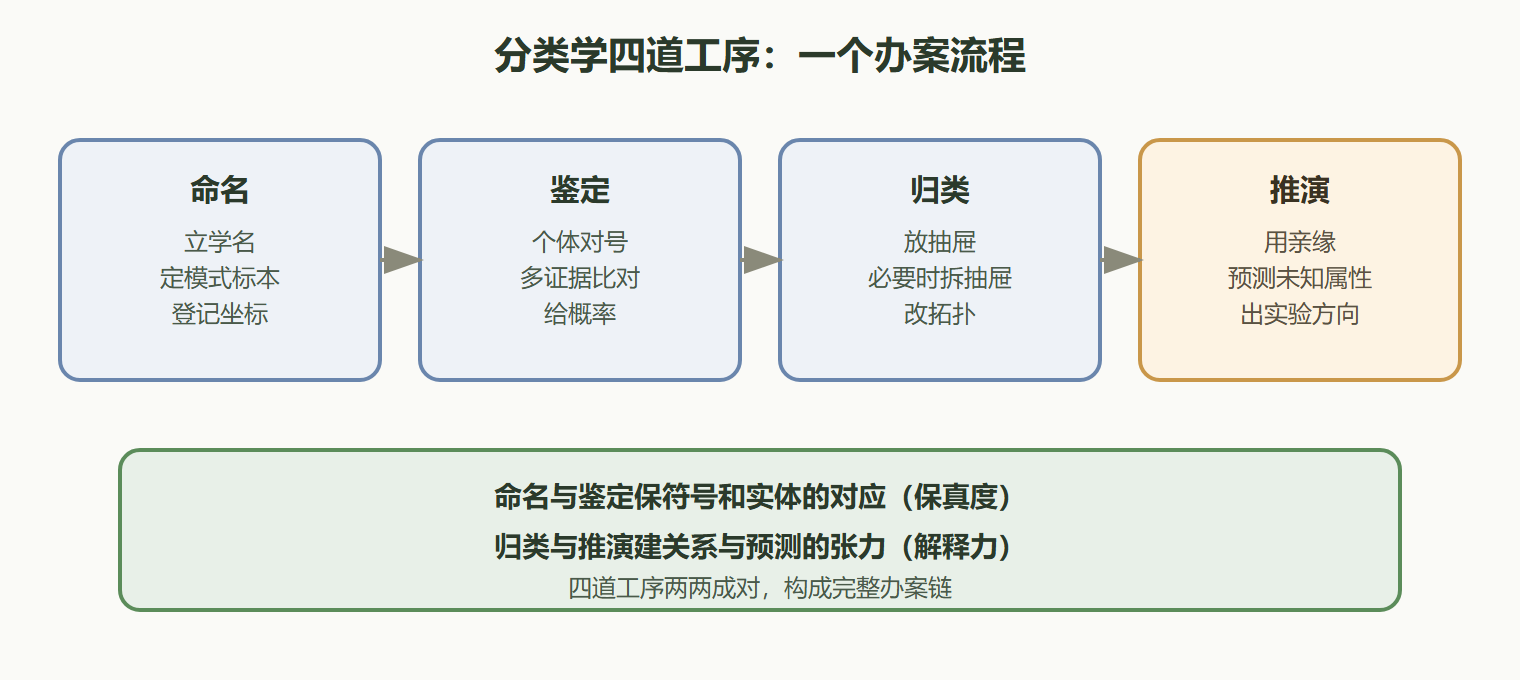
单说分类学内部,也远比"起名字"复杂。完整的作业线有四道工序,缺一道都会让案子办不踏实:
命名是符号化起点。按照《国际动物命名法规》或《国际藻类、真菌和植物命名法规》的程序,一个新种要合格发表,必须有学名、有描述、有模式标本、有正式出版物。这一步锁定了语义原点:以后所有关于这个物种的分布、基因组、保护等级的研究,都靠这个名字锚定到同一个实体。命名不是发明,是在知识宇宙里登记一个坐标。
鉴定是符号与现实的校准。回答"眼前这个个体属不属于某个已知单元"。传统靠检索表,现在靠多源证据的融合比对——形态图像特征、DNA 条形码、近红外光谱各自给一个概率,最后合成判断。
归类是关系网络的主动编织。不止把个体放进已有的抽屉,还要判断抽屉本身要不要拆。当分子数据显示"鸟类其实是恐龙的一个现存分支"时,归类的动作就直接改写了整棵生命树的拓扑。
推演是终极升值。利用已经查清的亲缘关系,反向预测未知属性。确认肺鱼与四足动物是姐妹群之后,可以推演四肢起源的关键基因早于四足动物分化就已出现——后来非洲肺鱼的发育转录组研究真的找到了证据。分类学因此从描述科学跨进了预测科学的门槛。
四道工序用概念代码看更直观。下面的 Python 片段不是要你真去跑数据库,而是把"多证据鉴定"的加权思路压成几行可读逻辑,方便体会"概率融合"的意思:
# 概念示意:多证据融合鉴定(伪代码风格,非生产脚本) def identify(specimen): scores = {} # 证据一:形态特征向量匹配检索表 scores["形态"] = match_morphology(specimen.morph_vector, KEY_TABLE) # 证据二:COI 条形码与参考库比对 scores["条形码"] = blast_top_hit(specimen.coi, BOLD_DB) # 证据三:近红外光谱指纹匹配 scores["光谱"] = nirs_match(specimen.spectrum, SPECTRAL_LIB) # 加权合成:不同证据的权重来自历史验证的误判率 fused = sum(weight[k] * scores[k] for k in scores) return top_candidates(fused, top=3) # 输出前三名候选与各自概率
二、三个学科一场案:分工而非递进
回到那句行话。分类学、系统学、演化生物学三者的关系,用侦缉流程比喻最清楚:分类学是档案室,负责给每一个"嫌疑人"立卷宗(命名、归档);系统学是鉴定科,负责通过比对外观、指纹、档案重建案发前的关系网络(亲缘拓扑);演化生物学是侦查科,负责解释为什么案子的走向会是现在这样(驱动分支与融合的机制)。三者互相反馈:系统学发现某两个"物种"其实是同一种后,档案室要改卷宗;演化生物学发现杂交事件频繁,鉴定科就要换更耐杂交噪音的模型。
一个常见误区是把三者当成"先分类、再系统分析、最后谈演化"的流水线。这个线性想象经不起推敲——你在做鉴定时用的比对库,本身就是系统学与演化生物学多年工作的产物;而你画的每一棵亲缘树,反过来又在修正分类单元的边界。它们是三个咬合的齿轮,不是一个台阶一个台阶往上爬的楼梯。
三、一段完整案例:被误判二十年的"新种"
背景:二十年前,东南亚某课题组在喀斯特溶洞里采到一批盲虾,体表色素缺失、眼退化,形态特征与已知种差异明显,于是按常规流程立了新种,发表在地方刊物上。操作:当时只做了形态描述和简单的表皮纹路比对,没有测分子标记;模式标本存进了当地博物馆,但二十年里几乎没有同行复核。
结果:二十年后,一次洞穴生物多样性调查用 COI 条形码重测了这些"新种"标本,发现它们的序列与邻省一个广布种完全落在同一单倍型网络里——所谓的"新种",只是同一物种在洞穴环境下趋同演化的形态型。解读:命名这道工序只保证了"名字立得住",却没保证"物种确实独立"。判断物种是否成立,需要归类工序里那棵亲缘树的支持,这就是三学科必须联动的原因。变式:同样场景若发生在保护领域,后果更重——一个被误立的新种可能挤占保育资源,而真正的濒危种反而被当成"常见种"忽视。这个案例后来成了不少标本馆推行"分子复核制度"的引子。
四、技术栈的四次换代
四道工序本身没变,工具换过四代。第一代形态学矩阵:把解剖特征编成零一矩阵,用最大简约法找步骤最少的树,古生物到今天还得靠它——琥珀里的蚊子不会给你基因组。第二代分子系统学:以 DNA 序列为字符,用似然法和贝叶斯法估算支持度,分子钟让"多久前分化"变成可计算参数。第三代基因组系统学:整合数百到数千个直系同源基因,处理基因树与物种树不一致的问题,快速辐射类群只有这个量级的数据才分得清。第四代整合分类学:把形态、声谱、化学信号、生态位模型统统放进统一框架——东南亚树蛙的研究就是这样把原本认定的单一种拆成了五个隐存种。这四代不是互相取代,而是各守一段战场:越古老的证据越便宜,越年轻的证据越可靠,办案时按代价和粒度搭配着用。
本节要点回顾
- 分类学的完整作业线是四道工序:命名、鉴定、归类、推演,缺一不可;
- 分类学管立档、系统学管定位、演化生物学管解释,三者是齿轮咬合不是流水线;
- 命名只解决"名字立得住",物种是否独立要靠亲缘树支持;
- 四代技术栈各守一段战场,办案讲究按代价和粒度搭配证据;
- 判断一项研究是否属于分类学,看它是否在产出可交流、可索引、可验证的物种单元及其关系。
下一节我们从"术"上到"道"——追问这整套查法赖以成立的哲学前提,看看"亲缘关系可以查证"这个信念到底站不站得住。