3.2 阶元层级:从界到种的金字塔与裂缝
3.2 阶元层级:从界到种的金字塔与裂缝
本节摘要:界门纲目科属种七级阶元是把树状亲缘压进层级的格栅,本质是人为容器而非自然阶梯。经典七级之外还有亚属、亚科、总目等补充阶元用于加精度;而"爬行纲不单系""鸟是恐龙后裔"等裂缝,正在逼着分类学把阶元从静态容器改造成演化支刻度。理解阶元,才知道新种该挂哪一格、为什么不能乱挂。
上一节我们过了法规关,这一节看户口簿本身长什么样——界门纲目科属种,这七级金字塔。你可能在初中生物课就背过它,但这一节要告诉你三件课本没讲的事:金字塔是人为画的刻度,不是天然的阶梯;金字塔的格子不够用时,人类往里面塞过补充格;金字塔的有些墙已经裂了,裂缝大到必须重新砌。
一、阶元的本质:刻度,不是台阶
林奈设计七级阶元时,相信它是神创秩序的镜像。演化论接管后,这个神学外壳被剥掉,阶元的真实身份暴露出来:它是一把给演化树画刻度的尺。每一级阶元对应树上的一个"辐射事件"——某个祖先分支在某个时刻爆发式分化出许多后代,这些后代共享一个最近的共同祖先,它们构成的整体被命名为一个"科"或一个"目"。所以阶元不是一个固定大小的容器,而是树上一段分支的标记。
这个定义带来一个反直觉的推论:同级阶元不必"大小相当"。昆虫纲有几十万种,而舌形虫纲只有一百多种,两者都叫"纲",体积完全不对等。刚入行的人常被这种不对等吓到——为什么甲虫一个目就二十多万种,比好多纲都大?答案很简单:阶元的层级是人画的刻度,刻度疏密由研究历史和分类习惯决定,不由生物学本质决定。真正有生物学含义的不是"第几级",而是"这条支在哪、分叉多深、是否单系"。
二、单系性:阶元合法性的判据
阶元要"合法",得满足一条硬标准:单系。一个单系群包含一个共同祖先及其全部后代——换句话说,你承认这个科的所有成员都是同一个老祖宗的后代,且老祖宗没有留下任何后代被排除在外。与之相对的是并系(包含共同祖先但漏掉一部分后代,比如"爬行纲")和多系(成员根本没有共同祖先,比如"会飞的动物")。
单系性为什么是硬标准?因为只有单系群能在演化树上对应一个真实的"自然实体",并系和多系都是人类为了方便或直觉切出来的片断。我们常说鸟类不是恐龙,但准确的说法是:鸟类是恐龙的一部分——恐龙这个类群若要把鸟排除在外,就必然成为并系群,而并系群在现代系统学里不被承认。这个标准的推广,是达尔文"亲缘可检验"思想的直接落地:任何阶元,问一句"它的所有成员是否共享且仅共享一个祖先",就能检验它站不站得住。
三、经典七级之外:补充阶元的精度插槽
七级阶元定下来后,实践很快发现刻度不够用。有些类群在属与科之间的分化深度非常特殊,硬塞进"属"或"科"都不合适。于是分类学发展出一整套补充阶元:在属和种之间加"亚属",在科和目之间加"总科"与"亚科",在纲之上加"总纲",甚至出现了"超目""次目"这类更细的插槽。命名上也有约定:亚属名用括号放在属名和种名之间,比如 Panthera (Uncia) uncia(雪豹的旧式写法),亚科词尾加"inae",总科词尾加"oidea"。
补充阶元的意义不只是多几个格子。它给分类学家一种"浮动精度":证据不足时,可以先把类群挂在一个较宽松的层级(比如某属未定种),等证据齐了再细化。这套机制让分类可以渐进推进——不用等到证据完美才下笔,但也意味着名录里充满了"未定""近似"这类临时状态,检索时需要格外小心。
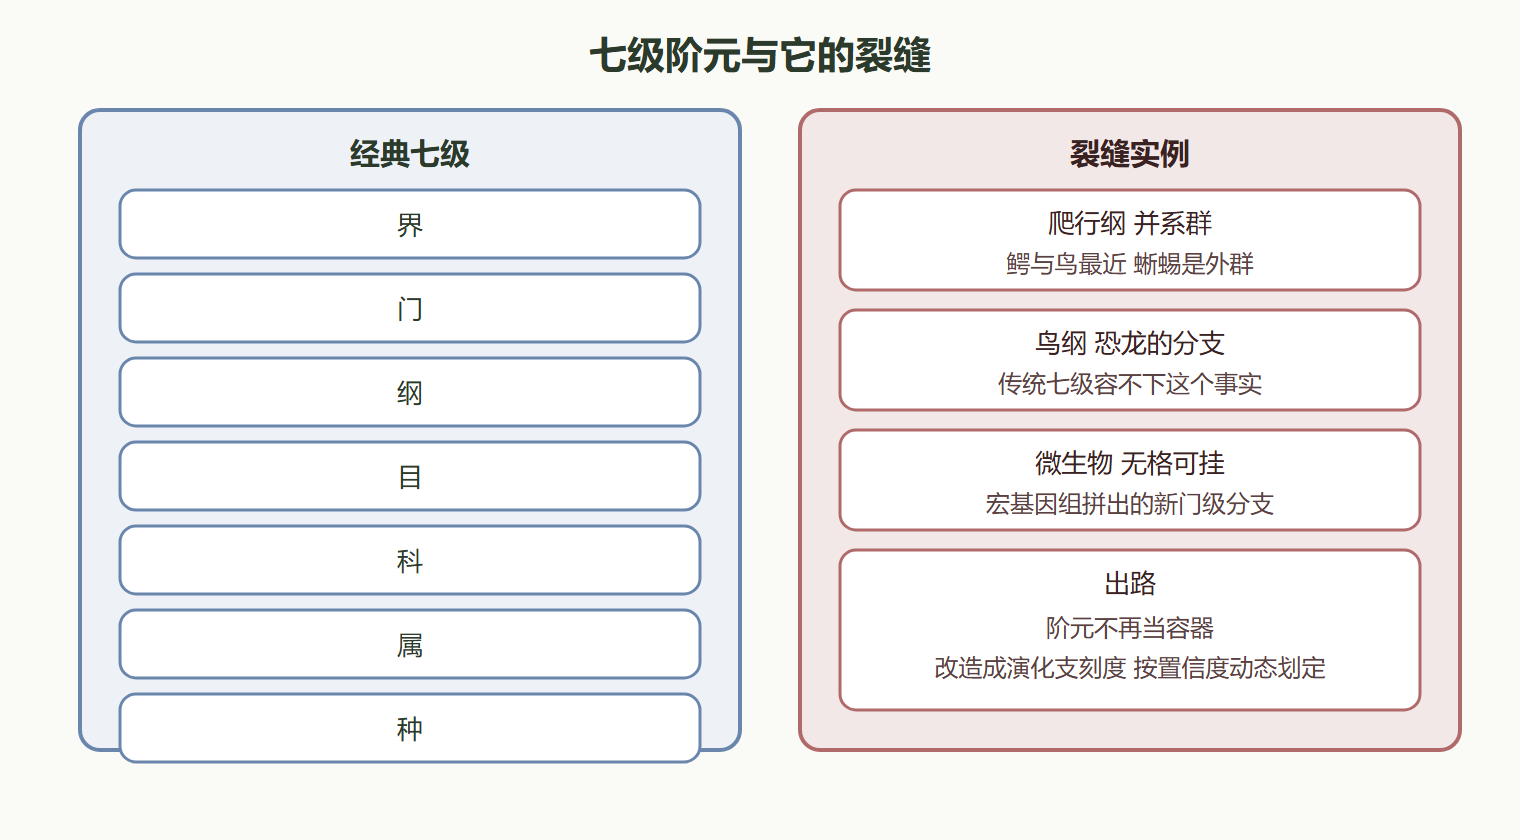
四、裂缝在哪里:三个装不下的实例
爬行纲的崩溃。按传统分类,爬行纲包括龟、蜥蜴、蛇、鳄鱼。分子与化石证据合流后,亲缘树显示鳄鱼与鸟类的亲缘远比与蜥蜴近——鸟类就是恐龙的后代,而恐龙是爬行动物演化出的一支。于是"爬行纲"成了并系群:它包含共同祖先,却把鸟类这一支后代踢了出去。现代系统学要么把鸟并入爬行类(让爬行类成为单系),要么拆散"爬行纲",两者都让教科书上的老格子重画。微生物的脱节。林奈七级体系根本无法容纳微生物世界:宏基因组组装出的新细菌门级分支,往往没有任何形态特征可供"纲目科"归类,只能靠基因组序列相对定位。对它们来说,传统的"门"是序列相似度聚类的结果,不是形态演化的阶梯。快速辐射的纠缠。有些类群(比如达尔文雀)在极短时间内辐射出众多近缘种,传统阶元在其中几乎失效——属与种之间插多少级都不够描述它们的分化网络。
这三处裂缝的共同根源:阶元是为"直观的分化"设计的,而真实的演化既有快速爆发,也有网状交融(杂交、水平基因转移),还有无法观察的微生物世界。把动态的、网状的、多维的演化事实压进七级线性格栅,必然出裂缝。
五、完整案例:一次"搬家"引发的连锁反应
背景:某属苔藓植物长期被放在一个传统的科里,依据是孢子形态相似。操作:新一代分子系统学研究把该属的序列加进系统树,发现它实际落在另一个科的分支上,两科相隔甚远。结果:该属连同它的大约四十个种被整体"搬家"到新科,牵动下属名、科名、模式标本归属全部重排,数据库、图鉴、保护区名录一起更新,前后耗时三年。解读:这次搬家展示了阶元体系的真实运作——格栅不是一次画定,而是随证据更新的活系统。代价则是"改名潮"给使用者带来的阵痛:老文献的名字对不上新名录了。这正是上一节讲的"命名求稳定、分类求变化"矛盾的现场版。变式:LN-2026-0717 若立为新种,它的属级归属同样可能在未来被分子证据改写——今天的结论给未来留好修订接口,是分类学家的职业素养。
六、阶元的未来:从容器到刻度
裂缝逼出来的改革方向已经清晰:把阶元从"静态容器"改造成"演化支刻度"。具体操作是把科、属这类阶元重新定义为系统发育树上"由置信度阈值界定的单系支"——比如一个支的自展支持率不低于百分之九十五,才被命名为科。这样阶元边界不再是人为拍板,而是数据驱动的结果,且随证据积累自动更新。微生物分类已经率先实践:基因组分类数据库(GTDB)基于一组垂直遗传标记蛋白自动生成门级以上的分类,完全绕开"必须有形态"的旧要求。这套思路正在向真核生物渗透——它不会废除界门纲目科属种这些词,但会让每个词都长在演化树上。
本节要点回顾
- 阶元是人画的演化刻度,同级大小不对等是常态,不是错误;
- 阶元合法性判据是单系:一个共同祖先加全部后代;
- 补充阶元提供浮动精度,也留下大量"未定""近似"的临时状态;
- 爬行纲、微生物、快速辐射三处裂缝,都源于线性格栅装不下网状演化;
- 阶元的未来是把容器改造成演化支刻度,边界由数据置信度动态划定。
下一站看模式标本——那个把名字钉死在一个具体标本上的关键设计。