4.1 性状:读线索的本事与陷阱
4.1 性状:读线索的本事与陷阱
本节摘要:性状是可编码的生物学变量,是分类的全部原料。读性状的核心难点不在记录,而在判别:这个特征与另一物种的相似,是同一祖先传下来的同源(血缘证据),还是独立演化出的趋同(假线索)?判别要诀可浓缩为一条经验法则——越简单、越受环境塑形的结构越容易骗人,越复杂、越特化的结构越可信。
上一节的案卷里,那只蛾的铜绿横带被标成"弱线索"。为什么弱?这一节讲清楚。我们把生物体上可以观察、记录、比较的一切属性统称为性状——但"记录性状"人人都会,难的是判断这个性状值不值得信。这一节就练这个判断力:先看性状怎么编码,再看同源与趋同这对"真假线索"怎么分辨,最后落到一条可操作的判读经验。
一、性状不是"特征",是可编码的变量
日常语言里"特征"很模糊:可以说"这种蛾有特征性的花纹",但这句话没法进数据库。分类学把模糊的"特征"加工成严格的"性状"——一个在物种间有明确状态差异、可记录、可比较的变量。比如:翅展是连续性状(38 毫米、41 毫米、45 毫米);铜绿横带有无是二态性状(有、无);颚齿数目是离散性状(4 枚、5 枚、6 枚);DNA 序列第 137 位点是字符性状(A、T、C、G)。把一批性状的状态并排放在一起,就得到一张物种间的对比矩阵——这张矩阵是第 5 章建树的原料。
编码的关键原则是可比性。一个性状要能比较,前提是你在不同物种身上量的是"同一个东西":你量猫的尾长和狗的尾长有意义,因为两者是同源的尾巴;你量蝙蝠的翅膀和鸟的翅膀,就要小心——虽然都叫"翅",但一个是前肢皮膜、一个是前肢羽毛,同源性存疑。所以在编码之前,先要做一次"同源预审":这个性状在两个类群里是否对应同一个祖先结构。
二、同源与趋同:真假线索的裁判
这是全节的核心概念,值得慢慢拆。
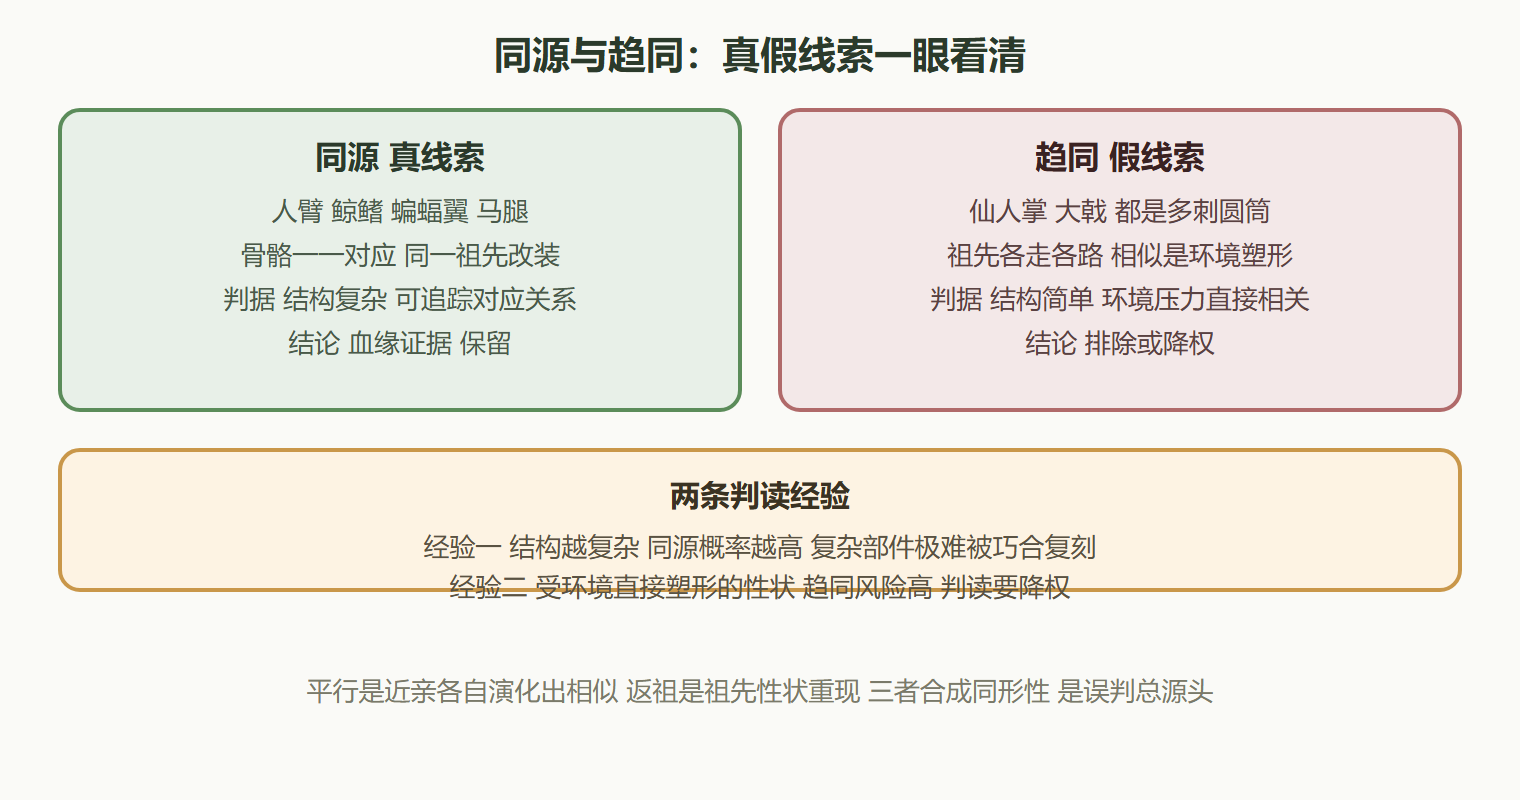
同源指两个物种的某个结构来源于同一祖先结构。人臂、鲸鳍、蝙蝠翼、马腿,外观差别巨大,但骨骼构成一一对应——都是肩胛骨、肱骨、桡骨、尺骨、掌骨、指骨的排列。它们源自四足动物祖先的同一套前肢骨骼,是"改装",不是"另造"。同源性状是血缘证据,因为共享同一个祖先结构,意味着共享同一段演化历史。
趋同指两个不相关类群独立演化出相似的形态,因为适应了相似的环境压力。仙人掌科的许多肉质植物与非洲大戟科的多肉长得几乎一样——圆筒茎、退化的叶、密集的刺——可它们的祖先各走各路,花的结构、乳汁、种子完全不同。趋同性状是假线索,它显示的是"活得像",不是"一家亲"。
平行是趋同的变种:两个近亲类群各自独立演化出相似性状。返祖则是祖先性状在个别后代里重新显现(比如人类偶发多乳、鲸偶现后肢痕迹)。这三者合成"同形性",是分类学里一切误判的来源。
判别同源与趋同有没有硬规则?没有百分之百可靠的规则,但有两条经验法则被几百年实践反复验证:结构越复杂,同源的概率越高——复杂的多部件结构(如昆虫的翅脉网络、花的各部排列)极难被不同谱系独立"巧合"出来,而简单的性状(有刺、多汁、体色深)极易趋同;受环境直接塑形的性状,趋同风险高——体型大小、体色深浅、被毛长短这类直接响应环境压力的性状,在不同类群里反复趋同,判读时要格外警惕。
三、概念代码:把"性状选择"落成可读逻辑
读性状的判断规则,用伪代码表达最直观。下面是"同源预审"的思路示意——注意它是概念演示,不是生产工具:
# 概念示意:性状的可信度预审(伪代码) def audit_character(taxon_a, taxon_b, character): # 复杂度:多部件、多功能整合的性状更可信 complexity = character.part_count * character.integration # 环境塑形度:直接响应温度、湿度、光照的性状不可信 plasticity = character.environment_sensitivity score = complexity - 2 * plasticity if score > THRESHOLD: return "同源候选,编码入矩阵" elif score < -THRESHOLD: return "趋同嫌疑,排除" else: return "存疑,降权并标注"
这套打分逻辑把专家的直觉显性化了:复杂的、特化的结构加分,环境敏感的性状减分。真实研究里这套预审不做在纸面上,但道理完全一样——每个进入第 5 章数据矩阵的性状,都经过这么一道人工审核。
四、完整案例:剑尾鱼与它的"假表亲"
背景:中美洲的剑尾鱼以尾鳍延长闻名,同属内多个种都有不同程度的长尾。操作:研究者要对几个形态相近的种做亲缘分析,先按翅鳍长度、体色带等"看得见的相似"编了一版性状矩阵,预检时发现几个种被这些"相似"聚在一起。结果:加入生殖器结构(特化且复杂的交接器形态)与分子数据后,亲缘树完全重排——原先聚在一起的"长尾组"被拆散,长尾其实是多次独立演化出的性状,属于典型的平行演化。解读:这个案例完美演示了性状判读的分层——容易被环境与选择塑形的外部形态(尾长、体色)是弱线索,特化的内部结构(交接器)才是硬线索,分子数据则负责最终裁决。变式:回到 LN-2026-0717,翅上铜绿横带就是剑尾鱼的"长尾"——它可能是多次独立演化的结果,绝不能单凭它定属;真正可靠的是它的雄性外生殖器结构与后续序列证据。
五、回到本案:铜绿横带的初审结论
把两条判读经验套到 LN-2026-0717 的翅斑上。铜绿横带属于什么性质?它结构简单(一条色素带),高度受环境与发育条件影响(温度、寄主植物、营养都能改变鳞片色素),且已知多个夜蛾科类群都有类似的"金属光泽横带"——趋同风险很高。初审结论:它是"弱线索",只配当筛选候选属的线索,不配当定案证据。真正的硬性状要往"复杂且稳定"的方向找:雄性外生殖器的骨片结构、翅脉的走向与脉序、触角的感器分布。这个结论不是新发现,而是把本章的方法论套用了一遍——你可以在真实标本上检验它。
本节要点回顾
- 性状是可编码的比较变量,可比性是编码前提,同源预审先于编码;
- 同源是血缘证据,趋同、平行、返祖是三层假线索噪音;
- 判读经验:结构越复杂越可信,环境塑形越强越可疑;
- 剑尾鱼案例证明外部形态弱线索、特化结构硬线索、分子最终裁决;
- 铜绿横带初审结论:弱线索,只用于筛选候选属,定案靠硬性状与序列。
下一站打开完整证据库——形态之外,分子、生态、行为、地理各有什么本事和盲区。