3.1 核心病理过程:高频作案手法
3.1 核心病理过程:高频作案手法
本节摘要:把阿尔茨海默病、2 型糖尿病、动脉粥样硬化、特发性肺纤维化放到一起审,会发现它们的"作案手法"高度雷同:氧化应激、线粒体功能障碍、内质网应激、细胞死亡方式异常、组织纤维化,反复登场。这类跨疾病共享的病理过程,就是核心病理过程。本节给出判定它们的四条标准,演示它们如何互相点火形成正反馈环,并解释为什么"协同节点"是比"单一靶点"更好的干预位置。
学习目标
阅读完本节,你应当能够:
- 说出核心病理过程的四条判定标准。
- 列举至少五个跨疾病共享的核心病理过程。
- 画出一个正反馈环(如氧化应激—线粒体—炎症),并解释它如何自我维持。
- 解释"干预协同节点优于阻断单一分子"的机制理由。
一、当医生们开始对台词
每年病理年会上都能看到这样一幕:肿瘤病理学家讲完氧化应激促进癌变的幻灯片,代谢病专家紧接着讲氧化应激在胰岛素抵抗中的角色,神经病理学者又展示氧化应激如何损伤神经元。三个会场用着几乎相同的分子——活性氧、抗氧化酶、DNA 损伤标志物——讲的却是三种完全不同的病。
这不是巧合。过去十年的多组学数据反复证明:大多数重大慢性病的底层,共享一批高度保守的病理过程。它们不隶属任何单一疾病,却构成了几乎所有慢性病的共同底盘。这一发现把病理学从"按器官背诵病变"的旧模式,推向"按过程理解机制"的新模式。
二、四重判据:什么才算"核心"
医学界对哪些过程够格进入"核心"名单,有一套明确的筛选标准。
第一条,跨疾病普适性:该过程至少在三大类无直接病理关联的疾病中同步活跃。氧化应激达标——2 型糖尿病、阿尔茨海默病、动脉粥样硬化里都有它的身影。第二条,跨尺度可检测性:既能在单细胞层面识别其激活状态,也能在血液里捕获代谢指纹,还能用影像探针在活体定位。线粒体功能障碍达标——单细胞转录组能看到呼吸链基因下调,血浆酰基肉碱谱反映氧化代谢紊乱,PET 探针能标记炎症小胶质细胞。第三条,功能因果性:在动物模型里增强或抑制该过程,能显著改变疾病进程。第四条,网络枢纽性:该过程的关键调控节点在蛋白互作网络里的连接度显著高于平均,且同时参与多条经典信号通路的交叉调控。
按这四条筛下来,氧化应激、线粒体功能障碍、内质网应激、DNA 损伤反应、异常细胞死亡、组织纤维化、免疫衰老,都够格入选。它们的共同点是一个深刻的事实:这些过程彼此触发、互相放大,一旦越过临界点就进入自我维持,不再依赖最初的诱因。
三、正反馈环:凶手逃逸之后
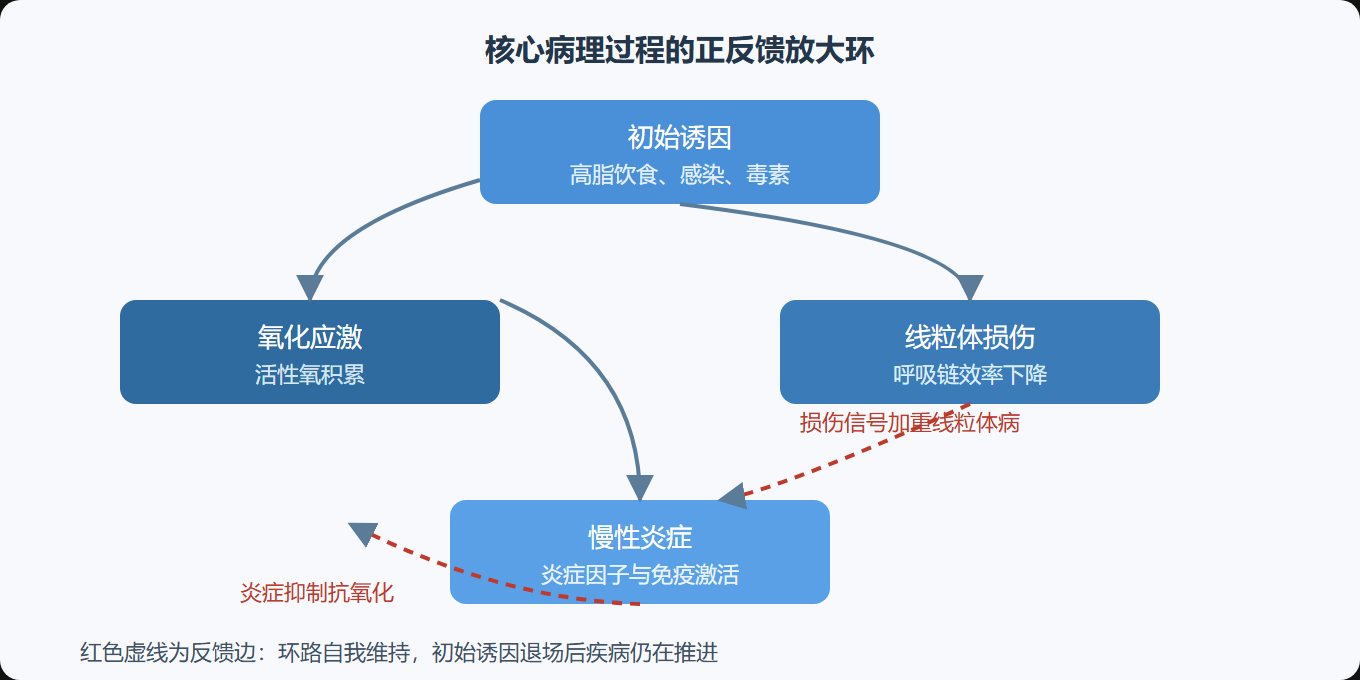
理解核心病理过程,关键是理解正反馈环。以氧化应激—线粒体—炎症的循环为例:
高脂饮食导致线粒体过载,产生过量活性氧;活性氧损伤线粒体自身的 DNA 和膜结构,呼吸链效率进一步下降,产氧更多;受损的线粒体释放损伤相关分子,激活炎症小体;炎症因子反过来抑制抗氧化防御,氧化应激再上一个台阶。这个环一旦转起来,即使把高脂饮食完全撤掉,环路仍会按惯性运转——因为每个环节都在为下一个环节提供原料。
这就是为什么很多慢性病"发现时已晚"、为什么单纯阻断一个分子常常失败。你在环路上切断一个点,环路会通过另一条路径绕过去。真正的杠杆在协同节点上——那些同时参与多条环路的分子开关。比如在氧化应激—炎症—细胞死亡的交叉点上,同时调节抗氧化、抗炎与抗凋亡三条信号的干预,就比单靶点药物更可能刹住整个环路。
图:核心病理过程的正反馈放大环
四、认识环路对临床的三个意义
把"核心病理过程 + 正反馈环"放进临床思维,会立刻改变三个判断。
第一,重新理解"查不出病因"。很多慢病患者从病因学角度看是"无责"的——没有明确的单一凶手,但他们的病理过程环路已经建立。病因档案可能写满"未明",机制档案却非常清晰。第二,重新排定干预顺序。与其追着最初诱因(往往早已消失)不放,不如在环路的关键节点上做文章——控炎、抗氧化、改善线粒体功能,都是直接作用于环路的策略。第三,重新看待复发。环路性疾病的"治愈"不等于"断根",它更像把系统从病态吸引域推回健康吸引域,需要维持新的稳态——这也解释了为什么慢病管理本质上是长期工程。
⚠️ 常见坑:把"抗氧化"理解成吃一堆保健品。膳食抗氧化剂的吸收、靶向与生物利用度,远不如体内自身抗氧化系统的调节有效;盲目大剂量补充甚至可能干扰正常的氧化还原信号。正确的抗氧化是"减少产氧负担 + 激活内源性抗氧化通路",而不是外源硬灌。
💡 关键直觉:判断一个病理过程是不是"核心",别问它对哪种病特异,要问它横跨多少种病——跨得越宽,越可能是底层手法,越值得在它身上花干预预算。
一条从分子到症状的完整链条
用一个具体链条把"核心病理过程"串联起来,动脉粥样硬化是最好的教材。低密度脂蛋白颗粒进入血管内皮下层(内皮通透性受遗传与血流剪切力调制),被氧化修饰;氧化型低密度脂蛋白激活内皮细胞表达黏附分子,招募单核细胞迁入内膜,分化为巨噬细胞;巨噬细胞吞噬氧化脂质变成泡沫细胞,释放促炎因子,形成脂质条纹;平滑肌细胞迁移增殖,分泌胶原包裹脂质核心,形成纤维帽;纤维帽变薄、钙化,一旦破裂,脂质核心暴露,触发血栓。这条链上的每一步都对应一个核心病理过程——氧化应激(脂蛋白氧化)、细胞死亡方式异常(泡沫细胞坏死)、炎症(细胞因子级联)、组织重塑(纤维帽形成)。看懂这条链,就理解了为什么降脂、抗炎、稳定斑块三类策略要联合使用:它们分别截断链条的不同环节,缺一环,链就继续走。
代偿与临界点
病理过程网络还有一个常被忽略的属性:代偿。系统在走向崩溃前会调动冗余路径维持功能——肝细胞损失到七成才出现肝功能衰竭,肾单位减少到三成才进入终末期,因为健康时系统有大量富余容量。代偿意味着病理过程可以在"查无异常"的掩护下推进很多年,也意味着临床可检测的异常出现时,系统往往已经站在临界点附近。这解释了第 5 章要讲的"可塑性窗口期":在代偿耗尽之前干预,成本低、收益大;代偿一旦耗尽,干预的边际收益断崖式下降。
本节要点回顾
- 四条判据:跨疾病普适、跨尺度可测、功能因果、网络枢纽。
- 核心过程清单:氧化应激、线粒体功能障碍、内质网应激、异常细胞死亡、纤维化、免疫衰老。
- 正反馈环即机制:环路自我维持,初始诱因可以退场。
- 协同节点优于单靶点:同时调节多条环路的开关才能刹住循环。
- 慢病是长期工程:从病态吸引域推回健康域,需要维持新的稳态。
单个过程讲清楚了,下一个问题是:这些过程如何在不同器官之间串联成网?下一节看系统级整合。