1.1 病毒的本质定义与生物学边界
1.1 病毒的本质定义与生物学边界
本节摘要:病毒是一类无细胞结构、必须依赖宿主才能完成复制的感染性遗传元件。它的遗传物质是 DNA 或 RNA,外面包着一层蛋白质衣壳,部分种类还披着从宿主膜"借来"的脂质包膜。与细菌等细胞生物不同,病毒没有核糖体,也没有独立的能量代谢,所以单独一个病毒粒子更像一枚静止的"遗传包裹",只有进入宿主细胞后才表现出复制、变异这些生命特征。本节先厘清"病毒不是细胞"这个定义悖论,再把它放回生命光谱里,说明它为什么既被排除在细胞生命之外,又是演化研究绕不开的对象。
学习目标
阅读完本节,你应当能够:
- 用自己的话说清病毒"不是细胞"的三条依据:无细胞结构、依赖宿主复制、无独立代谢。
- 分辨病毒粒子(virion)与感染状态下病毒在生命特征上的差别。
- 按由内到外的顺序说出病毒的结构分层:遗传物质、衣壳、包膜、表面蛋白。
- 说明巨型病毒、类病毒为何让"病毒边界"变得更加模糊。
- 举出至少一个病毒参与宿主演化的具体例子。
一、一个持续百年的定义难题
病毒这个词的起点,就带着误会。19 世纪末,伊万诺夫斯基和贝杰林克先后研究烟草花叶病,发现致病的"东西"能穿过陶瓷滤器——细菌过不去,它却过去了。更关键的是,这种滤液在普通培养基上长不出任何东西,却又确实能继续让健康烟草发病。当时人们只能叫它"可滤过的病原"或干脆用拉丁语里的"毒"(virus)来称呼它。名字沿用至今,理解却花了一百年才慢慢追上。
难在哪?难在我们的分类直觉是"按细胞来的"。生物课本告诉我们,细胞是生命的基本单位:有膜、有遗传物质、有核糖体、能自己制造能量和蛋白质。可病毒一条都不满足。它没有细胞膜包裹的细胞质,没有核糖体,自己既不会合成蛋白质,也不会产生能量。把它放进营养丰富的培养液里,它不会长大、不会分裂、不会消耗任何东西——和一枚灰尘没什么两样。
所以现代病毒学给出的定义,是一句刻意"绕开生命与否"的话:病毒是依赖宿主细胞进行复制的感染性遗传元件。这句话里,"感染性"和"依赖宿主"是重点,其余都留给哲学去吵。我们更关心一个可操作的问题:一个东西要够格叫病毒,至少得同时具备两样——一份遗传物质(DNA 或 RNA),以及一个保护并递送这份遗传物质的蛋白质外壳。缺了核酸,它就只是一团蛋白;缺了外壳,它往往连细胞都进不去。
💡 关键直觉:判断一个颗粒是不是病毒,先问三件事——有没有核酸、有没有蛋白壳、能不能靠宿主复制。三件事齐了,再谈别的。
二、三层结构:核酸、衣壳与包膜
把病毒放大,它的"身体"其实只有两层到四层,比任何细胞都寒酸,却也正因为简单,才把"复制信息"这件事做得极致。
最内层是遗传物质。一个病毒只带一种核酸,要么 DNA,要么 RNA,不会两者都有。这份核酸通常很小:流感病毒约 1.3 万个碱基,HIV 约 9700 个碱基;作为对比,一个细菌的基因组动辄几百万碱基。病毒的精简不是偷懒,而是策略——它把合成蛋白质、产生能量的活全外包给宿主,自己只保留"怎么复制、怎么进入细胞"这份核心图纸。
中间层是衣壳,也就是蛋白质外壳。它由许多相同的蛋白亚基按规则拼装而成,像一个用同一种积木搭出来的足球。衣壳的首要任务是物理保护:在细胞外这段"无依无靠"的时间里,核酸要靠它挡着核酸酶和紫外线。次要任务是识别:很多无包膜病毒的衣壳蛋白本身就是打开宿主细胞的钥匙。
最外层是包膜,但不是所有病毒都有。有包膜的病毒(流感、HIV、新冠病毒)在出细胞时,会裹走一小片宿主细胞膜,再往上面镶嵌自己的糖蛋白。这层"借来的外衣"好处是能伪装、能灵活调节入侵,坏处是脆——酒精、肥皂、干燥都能轻易破坏它。所以有包膜病毒通常走呼吸道、体液这种"直达"路线,无包膜病毒(诺如、轮状)则靠结实的衣壳硬扛环境,走粪口路线。
病毒结构分层示意
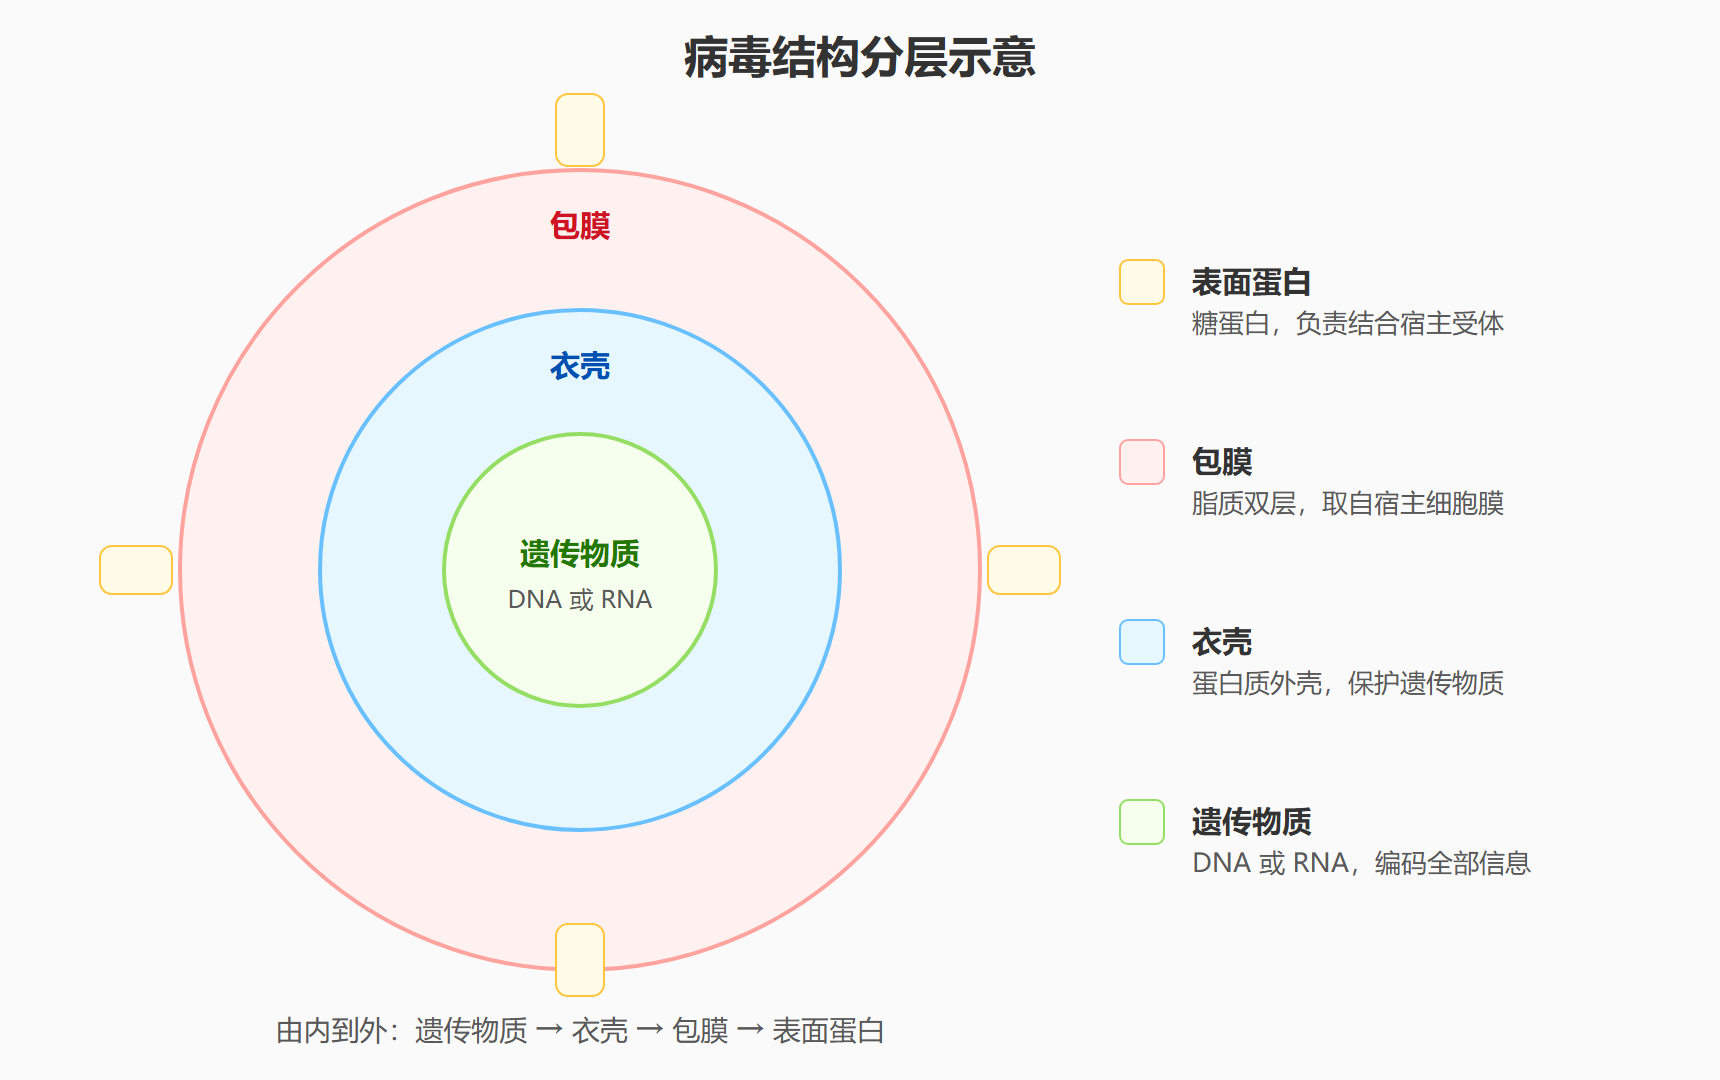
一句话概括结构逻辑:衣壳解决"怎么把核酸安全送到",包膜解决"怎么骗过并进入宿主",表面蛋白解决"进哪一扇门"。三层分工不同,缺一不可。
三、复制依赖:没有代谢的"借用者"
细胞能独立活着,靠的是一整套代谢机器:把葡萄糖变成能量,用核糖体把信使 RNA 翻译成蛋白质,再把这些蛋白质分门别类送到该去的地方。病毒一样都没有。它的复制方式,可以理解成"带着一份施工图纸闯进别人的工厂":图纸是核酸,工人和机器全是宿主的。
这个过程大致是五步:吸附、侵入、脱壳、复制组装、释放。先靠表面蛋白或衣壳结合宿主细胞表面的受体——这一步决定了一个病毒能感染谁,是"物种选择性"的物理基础。接着把核酸送进细胞,脱掉外壳。然后病毒核酸接管宿主的核糖体和酶,开始复制自己的基因组、翻译自己的蛋白。等原料攒够了,新装配好的子代颗粒再通过裂解(把细胞撑破)或出芽(裹膜而出)释放出去,去感染下一个细胞。
这套流程暴露了病毒最核心的"非生命"特征:它的一切活动都发生在宿主细胞内。离开细胞,病毒没有任何代谢,就是一颗静止的颗粒。这也是为什么"培养病毒"和"培养细菌"是两回事——细菌给点营养自己长,病毒必须给活细胞当"培养基",比如用鸡胚、用体外培养的细胞系。
病毒复制还有一个数量级上的特点:爆发式。一个病毒粒子进去,出来可能是成百上千个子代。这种"全有或全无"的增殖方式和细菌的"一分二"完全不同,也是病毒能快速压垮宿主、快速演化出抗药性的根源。
⚠️ 常见误区:别把"病毒在细胞外能存活多久"当成"它活着"。有包膜病毒在体外很快失活,是因为包膜被破坏了、核酸不再完整,而不是一个生命体"死了"。消毒的本质是破坏结构或遗传物质,让颗粒失去感染能力。
四、生命光谱里的位置:晶体还是生物
1935 年,斯坦利把烟草花叶病毒提纯成了晶体——它会结晶,这一度被当作"病毒是化学物质而非生物"的铁证。可同一个晶体放进烟草叶片,又能引发典型的病毒病。这种"体外是晶体、体内会复制"的双重身份,正是病毒在生命光谱里卡在中间的原因。
要回答"病毒算不算生命",得先承认一个事实:生命不是一盏"是或否"的开关,而是一条有刻度的光谱。光谱的一端是能独立代谢、独立繁殖的细胞生物;另一端是纯粹的化学分子。病毒站在这两端之间,而且位置还会变——在细胞外,它偏向化学颗粒那一端;进入细胞、进入复制周期后,它又表现出复制、变异、被自然选择筛这些典型的生命行为。
NASA 对生命下过一个宽泛定义:能进行达尔文式演化的自我维持化学系统。按这个标准,病毒的前半句"能演化"完全成立——流感病毒每年都在被自然选择筛出新的流行株。卡住的是"自我维持":病毒没有代谢,维持不了自己。所以严谨的说法是,病毒是"在宿主内暂时获得生命特征"的遗传元件。
让这条边界更模糊的,还有两个特例。一是巨型病毒(如拟菌病毒),它的基因组大到甚至编码了部分参与翻译的基因,几乎要跨进细胞的门槛。二是类病毒,它只有一小段裸露的环状 RNA,连蛋白外壳都没有,却能感染植物并致病——它比"标准病毒"还要更"不完整"。这两类实体提醒我们,"病毒"这个词的边界,本质上是一套人为划定的、用于研究方便的操作边界,而不是自然界里一条天然的裂缝。
五、边界为什么重要
把"病毒不是细胞、却参与生命"这件事想清楚,不是为了哲学辩论,而是因为它直接决定我们怎么研究它、怎么防它。
第一,它决定了研究方法。病毒培养必须靠活细胞,检测必须针对核酸或蛋白(因为病毒没有可培养的"菌落"特征),这些方法学上的选择,全部来自"病毒不是细胞"这个前提。
第二,它解释了病毒为何演化得那么快。RNA 病毒复制时,每复制一个碱基大约会错千分之一到十万分之一,比细胞生物高好几个数量级。这是因为病毒借来的聚合酶(尤其 RNA 依赖的 RNA 聚合酶)缺乏校对功能。高突变率让病毒能以"种群"为单位快速试错,也让它容易对药物、疫苗产生逃逸。
第三,它说明病毒在演化史上并非局外人。人类基因组里约有 8% 的序列来自古老的内源性逆转录病毒,其中一些在今天还参与胎盘发育等正常功能。换句话说,病毒不仅攻击宿主,也在漫长的共处中把自己的序列写进了宿主的家谱。把病毒排除在"生命"之外可以,但把它排除在"演化"之外就错了。
| 特征 | 病毒粒子 | 细菌细胞 |
|---|---|---|
| 细胞结构 | 无 | 有 |
| 遗传物质 | DNA 或 RNA,只一种 | DNA 和 RNA 都有 |
| 核糖体 | 无 | 有 |
| 独立能量代谢 | 无 | 有 |
| 复制方式 | 宿主内组装、爆发式 | 二分裂 |
| 体外培养 | 需活细胞 | 培养基即可 |
| 大致尺寸 | 约 20 到 300 纳米 | 约 1 到 5 微米 |
这张表可以作为本节的主线速查:病毒在几乎每一项"细胞生命标配"上都是缺失的,唯独在"拥有可复制的遗传信息"这一项上和细胞站在同一侧。
要点速记
- 定义悖论:病毒是依赖宿主复制的感染性遗传元件,无细胞结构、无独立代谢、无核糖体。
- 结构分层:由内到外是遗传物质、衣壳、包膜、表面蛋白;包膜非所有病毒都有,取自宿主膜。
- 复制依赖:病毒全套"借用"宿主的翻译与能量系统,其活动全部发生在宿主细胞内。
- 体外状态:病毒粒子(virion)在细胞外无代谢、不活动,是"有感染能力的颗粒"而非"活着的个体"。
- 生命光谱:病毒介于细胞生物与化学分子之间,在宿主内才表现出复制、变异等生命特征。
- 演化角色:病毒不是演化的局外人,内源性逆转录病毒序列已融入宿主基因组。
- 实用后果:研究方法(活细胞培养、核酸检测)与防控逻辑(破坏结构即失活)都源自"病毒不是细胞"这一前提。
下一节我们把镜头从"病毒是什么"转到"凭什么能分"——看看人类是怎么一步步找到给这个无细胞、会演化的对象分类的方法的。