1.3 核心分类维度解构
1.3 核心分类维度解构
本节摘要:给病毒分类,本质是从几个可观测的维度上给它的"身份"定坐标:遗传物质类型(DNA 还是 RNA、单链还是双链、正义还是负义)、复制策略(靠宿主聚合酶还是自带聚合酶)、基因组结构(分段与否、线性还是环状)、形态(衣壳对称性与有无包膜),以及宿主范围。这五个维度不是并列的选项,而是层层咬合——核酸类型决定复制路径,复制路径又反过来约束基因组与形态的演化。本节逐一拆解这五个维度,再说明它们如何组合成一套可操作的分类坐标,让你面对陌生病毒时能自己往下推。
你能学到什么
阅读完本节,你应当能够:
- 列出病毒分类的五个核心维度,并各举出一个代表病毒。
- 区分正义、负义、双链三种 RNA 基因组在"能否直接翻译"上的差别。
- 解释"分段基因组"如何让流感病毒通过重配产生新亚型。
- 说明衣壳的二十面体、螺旋、复合三种对称性各自的优势。
- 判断有包膜病毒与无包膜病毒在环境稳定性和消毒方式上的差异。
- 用"维度组合"的思路,描述任意一种已知病毒的分类坐标。
一、维度不是标签,是坐标
上一节讲的是"用什么方法分",这一节落到"具体按什么分"的原料上。给病毒分类,本质上不是贴一张"它叫某某病毒"的标签,而是从几个可观测的维度上,给它标出一组坐标。这组坐标的好处在于:即便遇到一个从没见过的病毒,只要把这几个维度测出来,就能大致推断它的行为、弱点和该往哪个大类里放。
这五个维度有主次,不是五张并列的牌。遗传物质类型是第一刀,它决定后面几乎所有走向;复制策略是第二刀,它把"DNA 还是 RNA"这个粗分进一步细化成具体的复制路径;基因组结构、形态、宿主,则是在前两刀的基础上补充细节。换句话说,核酸类型和复制策略是"原因",形态和宿主更多是"结果"——这正是我们要按这个顺序拆解,而不是按"看起来像不像"来拆解的原因。
二、遗传物质类型:第一刀
病毒分类最硬的一刀,是看它的遗传物质是 DNA 还是 RNA。这不是文字游戏,而是因为两者的化学稳定性和复制方式差了一个数量级。
DNA 是双链结构,自带一条可以照着修的模板,复制时还有校对机制,所以 DNA 病毒的基因组相对稳定、变异慢。疱疹病毒、腺病毒、痘病毒都属于这一类。RNA 则通常是单链,复制它的聚合酶普遍缺乏校对功能,导致 RNA 病毒变异快得多——这正是流感、新冠这些 RNA 病毒年年折腾、需要反复更新疫苗的根本原因。
同一个"DNA 或 RNA"下面,还能继续分:单链还是双链,以及单链 RNA 的"极性"。极性说的是这条 RNA 链能不能直接当信使 RNA 用。正义单链 RNA(如新冠病毒)的基因组一到细胞里就能被核糖体直接翻译,是"到手即用";负义单链 RNA(如流感、埃博拉)则必须先用自带聚合酶转录出互补的正链,多一道"解码"步骤;双链 RNA(如轮状病毒)又不一样,它的两条链互相缠着,得解开取一条当模板。同样叫"RNA 病毒",这三种的复制起点完全不同,诊断和用药的靶点也跟着不同。
| RNA 类型 | 能否直接翻译 | 代表病毒 | 复制要点 |
|---|---|---|---|
| 正义单链 RNA | 能,基因组即信使 RNA | 新冠病毒、脊髓灰质炎病毒 | 进细胞即可翻译出聚合酶 |
| 负义单链 RNA | 不能,需先转录互补链 | 流感病毒、埃博拉病毒 | 必须自带聚合酶,先转录 |
| 双链 RNA | 不能,需解开取模板 | 轮状病毒、呼肠孤病毒 | 自带聚合酶,链藏在衣壳内 |
⚠️ 常见误区:别只盯"DNA 还是 RNA"就下结论。同样是 RNA 病毒,正义、负义、双链的复制路径天差地别;同样分到这一步,还得再结合复制策略才能把病毒看准。
三、复制策略:借用还是自带
遗传物质类型定了之后,下一个问题是:这个病毒用什么来复制自己?答案是两条路,二选一。
一条路是"借用"。很多 DNA 病毒自己不带聚合酶,而是溜进细胞核,借用宿主的 DNA 聚合酶来复制基因组,借用宿主的转录机器来造信使 RNA。疱疹病毒就是典型:它把活干在细胞核里,好处是省事,坏处是容易撞上宿主的抗病毒防线。
另一条路是"自带"。几乎所有 RNA 病毒都得自带一个 RNA 依赖的 RNA 聚合酶,因为宿主细胞里根本没有"拿 RNA 当模板复制 RNA"的酶。这个自带聚合酶是 RNA 病毒最核心的蛋白,也是测序比对、建树和设计抗病毒药时最常抓的靶点——瑞德西韦这类核苷类似物,打的正是这个聚合酶的活性位点。
复制策略还顺带决定了"在哪复制"。借宿主聚合酶的病毒多在细胞核里活动;自带聚合酶的 RNA 病毒多在细胞质里另起炉灶,有的还会诱导宿主膜结构改建出"复制工厂",把病毒 RNA 的合成和宿主的免疫监视隔开。这条线索很有用:知道一个病毒的复制位点,就能预判它容易被哪条先天免疫通路盯上,也就能解释为什么有些药对核内病毒有效、对胞质病毒无效。
四、基因组结构:分段、环形与极性
基因组结构是第三刀,主要看两件事:分段还是不分段,线性还是环状。
分段与否,直接关系到病毒的"重组"能力。流感病毒的基因组是 8 段独立的 RNA。当两种不同的流感病毒同时感染一个细胞,它们的片段可以像洗牌一样重新搭配,瞬间拼出一个同时带双方片段的新毒株——这叫做重配,是流感大流行的主要来源。相比之下,不分段的病毒(如新冠、麻疹)就没这么"会拼",它们只能靠点突变慢慢积累差异。
线性还是环状,则影响复制的起点和稳定性。乙肝病毒的基因组是部分双链的环状 DNA,复制时要通过一个 RNA 中间体,逻辑上和逆转录沾边,这也是它被单独归类的原因之一。类病毒更是极端——它就是一环裸露的 RNA,连蛋白壳都没有。基因组结构看似是"细节",其实常常是划分属、种时最直接的判据之一。
五、形态与包膜:衣壳对称性与"外衣"
形态维度看两件事:衣壳的对称性,以及有没有包膜。
衣壳对称性主要有三种。二十面体对称最省料:用同一批蛋白亚基,按 60 的倍数拼成一个近似球形的多面体,用最少的零件围出最大的容积,腺病毒就是代表。螺旋对称则是把蛋白亚基沿着核酸链一圈圈绕上去,形成杆状,烟草花叶病毒、狂犬病毒的核衣壳都走这条路,好处是能容纳很长的一段核酸。复合对称是"混搭",典型是噬菌体——一个二十面体的头装 DNA,一个螺旋的尾鞘负责穿刺,活像一台纳米级注射器。
有没有包膜,则把病毒分成两种截然不同的生存策略。无包膜病毒(诺如、轮状、腺病毒)靠厚实的衣壳硬扛环境,在物体表面能撑很久,常走粪口传播,也难被酒精轻易灭活。有包膜病毒(流感、HIV、新冠)披着一层从宿主膜借来的脂质双层,脆弱得多,肥皂、酒精、干燥都能把它破坏,所以它们更依赖近距离的飞沫、体液传播,也更容易被常规消毒控制住。
💡 关键直觉:判断一个病毒的传播和消毒策略,先看它有没有包膜。有包膜的怕环境、靠近距离;无包膜的抗造、走粪口。这个区分在疫情防控里比背病毒名单实用得多。
六、宿主范围:最后一维坐标
宿主范围是第五个维度,也是从"实验室特征"通向"现实世界"的那一步。病毒按宿主可粗分为动物病毒、植物病毒、细菌病毒(噬菌体)和古菌病毒。这一步之所以重要,是因为它直接决定了一个病毒在生态系统里扮演什么角色、会走哪条传播路径。
宿主范围由"钥匙和锁"决定:病毒表面的蛋白(或衣壳)必须能结合宿主细胞表面某个特定的受体,才进得去。这个受体往往很专一,所以大多数病毒的宿主范围很窄;但有些病毒会随着受体结合区的几个关键突变,从一种宿主跳到另一种宿主——这正是禽流感、冠状病毒跨物种传播的分子基础。
宿主范围这一维还有个提醒作用:它让分类不再只是"纸上谈兵"。一个病毒的分类坐标一旦含上了"感染什么宿主",它就和诊断、监测、生态风险挂上了钩。因此,宿主范围常常是分类表里最后补上、但在应用里最先被问到的那个字段。
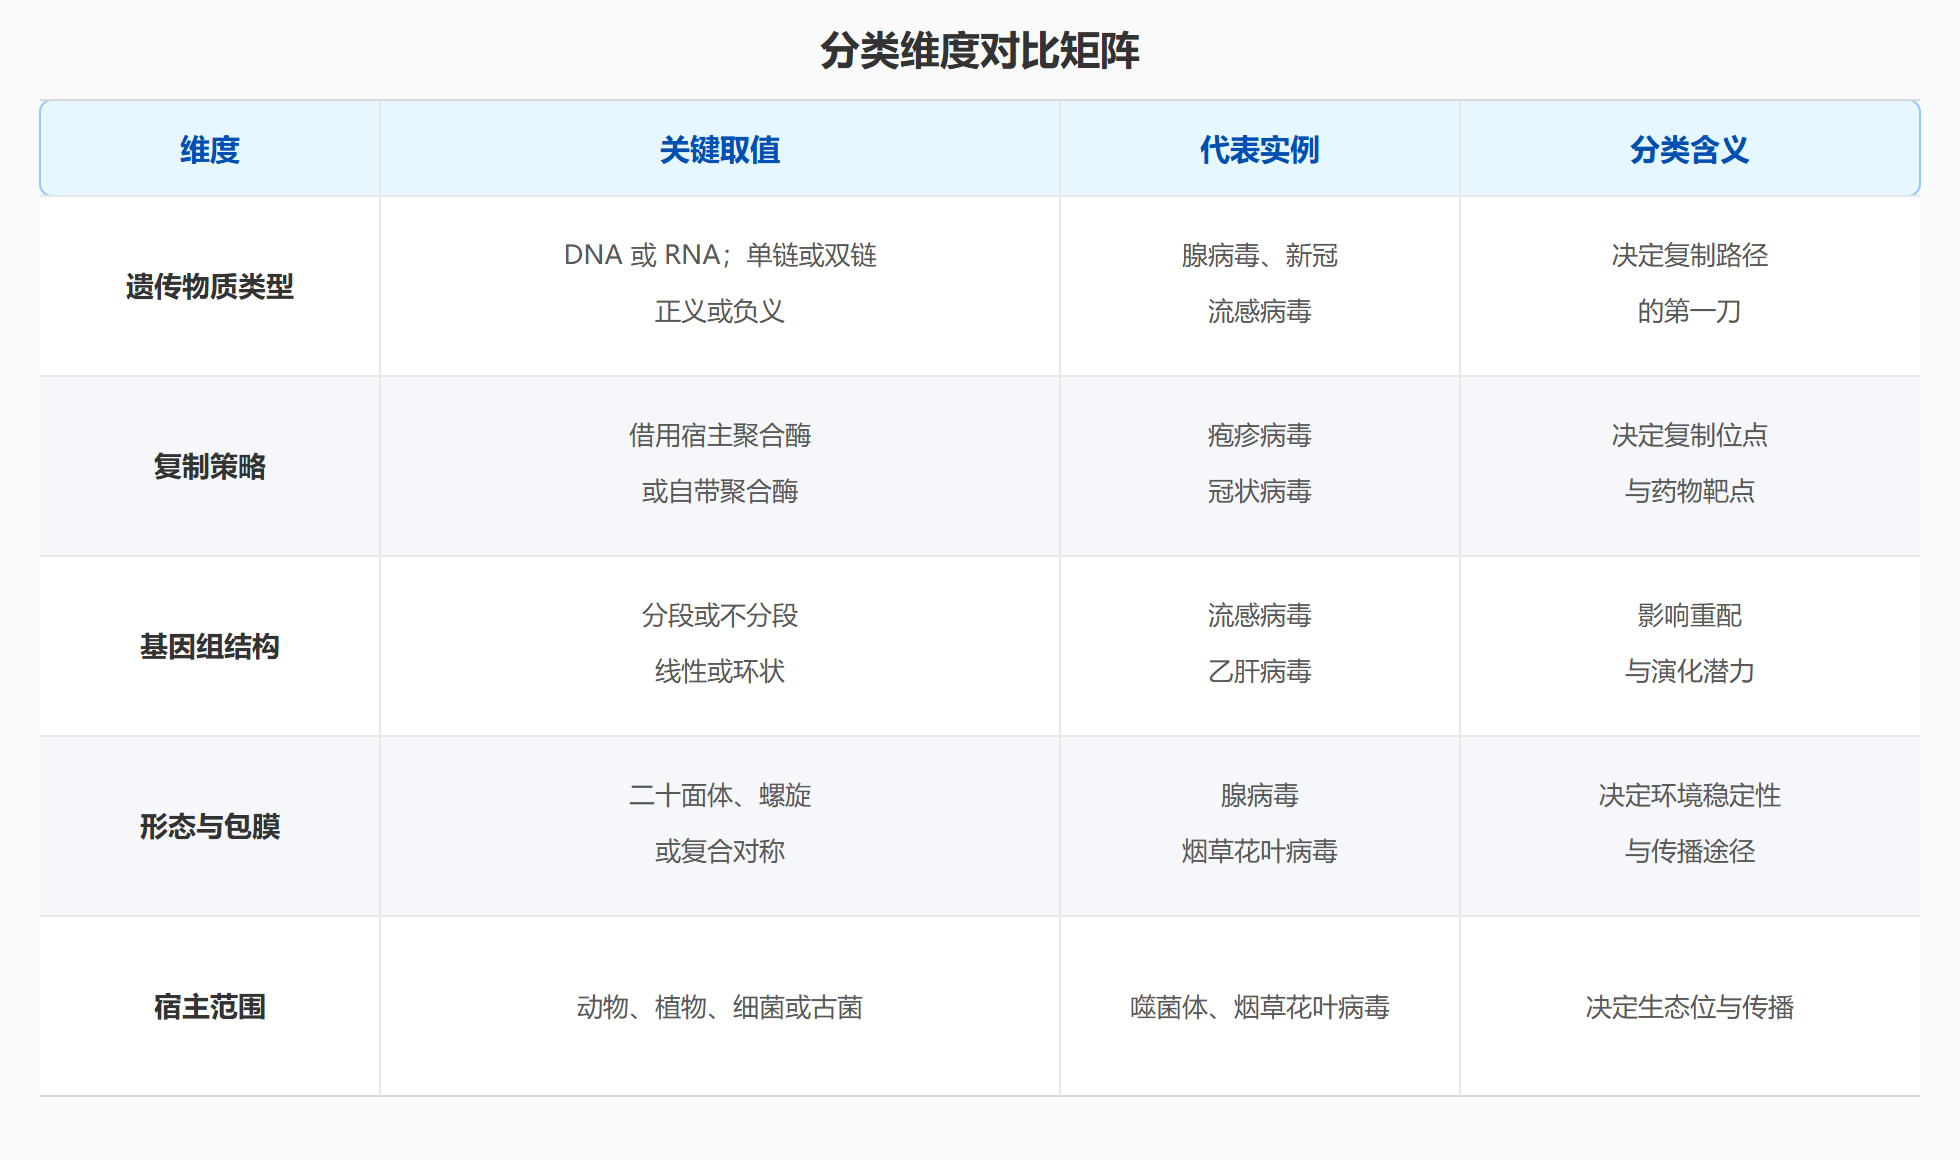
分类维度对比矩阵
七、维度怎么组合起来用
五个维度拆开看是一堆概念,合起来才是一套能用的工具。实际读一个病毒,就是把这五个维度串成一句话。
以新冠病毒为例,它的坐标可以写成:正义单链 RNA(遗传物质类型),自带 RNA 依赖的 RNA 聚合酶、在胞质复制(复制策略),不分段、线性基因组(基因组结构),有包膜、表面有刺突蛋白(形态与包膜),感染人及多种哺乳动物(宿主范围)。这串坐标一旦写出来,很多结论就自动浮现了:正义 RNA 说明它进入细胞即可翻译;自带聚合酶说明它是抗病毒药的好靶点;有包膜说明它怕酒精、靠飞沫传播;不分段说明它变异主要靠点突变积累,而不是流感式的片段重配。
再拿流感病毒对照,它的坐标是:负义单链 RNA、分段基因组、有包膜、感染人和禽类。和新冠最大的差别就在"分段"两个字上——这决定了流感能通过重配突然"洗牌"出全新亚型,也决定了它的疫苗每年都要根据流行株重新配。同样是 RNA 呼吸道病毒,坐标里两个字段的差异,就解释了它们完全不同的流行节奏和防控逻辑。
这张图是"第一刀"之后的分叉:一旦知道核酸类型,复制路径的大方向就基本锁定了。这也印证了本节开头的那句话——遗传物质类型是原因,其余维度沿着它往下展开。
核心回顾
- 维度是坐标:五个维度不是并列标签,而是"原因在前、结果在后"的递进结构。
- 遗传物质类型:DNA 稳、RNA 变;正义、负义、双链 RNA 的复制起点完全不同,是第一刀。
- 复制策略:借用宿主聚合酶(多在核内)还是自带聚合酶(多在胞质),决定复制位点与药物靶点。
- 基因组结构:分段基因组支持重配(流感),线性与环状影响复制起点与稳定性。
- 形态与包膜:衣壳对称性分二十面体、螺旋、复合;有无包膜决定环境稳定性与传播途径。
- 宿主范围:由受体特异性决定,是连接分类与传播、生态风险的最后一维。
- 组合使用:把五个维度串成一句话,就能从一个陌生病毒读出它的行为、弱点与防控要点。
第 1 章到这里收尾。下一章我们带着这套坐标走进各大类群,先看 DNA 病毒域与 RNA 病毒域里那些最典型的成员,把抽象的维度一一对号入座。