3.3 宿主范围跃迁机制
3.3 宿主范围跃迁机制
本节摘要:宿主范围跃迁,指的是病毒突破原有物种限制、获得感染新物种能力的过程,也就是我们常说的"跨种传播"背后的分子机制。它不是一次随机跳跃,而是一连串必须依次闯过的关卡:先要有生态接触,再要有受体结合的突破,还要有在新宿主体内高效复制的能力,最后才能人传人。从蝙蝠到穿山甲再到人,从禽类经猪再到人,中间宿主往往充当了"分子训练营"。看懂这条链条,我们才能理解溢出事件为什么难得,又为什么一旦发生就危险。
读前必看
阅读完本节,你应当能够:
- 说出宿主范围跃迁依次要闯过哪几道关卡。
- 解释受体结合特异性为什么决定了病毒能感染哪些物种。
- 用 PB2 突变的例子说明"复制兼容性"的含义。
- 说明中间宿主在跃迁中扮演的角色。
- 描述一种用于评估溢出风险或阻断跃迁的思路。
一、问题与直觉:溢出为什么既难得又危险
绝大多数病毒安分守己,一辈子只在一种或少数几种宿主里打转。真能从一个物种跳到另一个物种、并且在新宿主里站稳脚跟的,其实是极少数。可就是这极少数,制造了人类历史上一次次大流行。
这里有个反直觉的地方值得先说清楚:跨种传播本身不算稀罕,稀罕的是"跳过去还能持续传"。人接触野生动物,被咬一口、吃一口没煮熟的肉,病毒跟着进来,这都不难发生。难的是这株病毒进了人体之后,能不能活下来、复制、再传给别人。绝大多数溢出事件,都在这一步熄火了,就像一列火车刚冲出站台就脱了轨。
我们真正要研究的,是那些能一路冲到终点的事件。它像闯关,每一关都会筛掉一大批病毒。看懂每一关的筛选逻辑,我们才能判断哪些病毒更危险、该优先盯谁。
二、跃迁的四道关卡
把一次成功的跃迁拆开,大致是四道关卡。
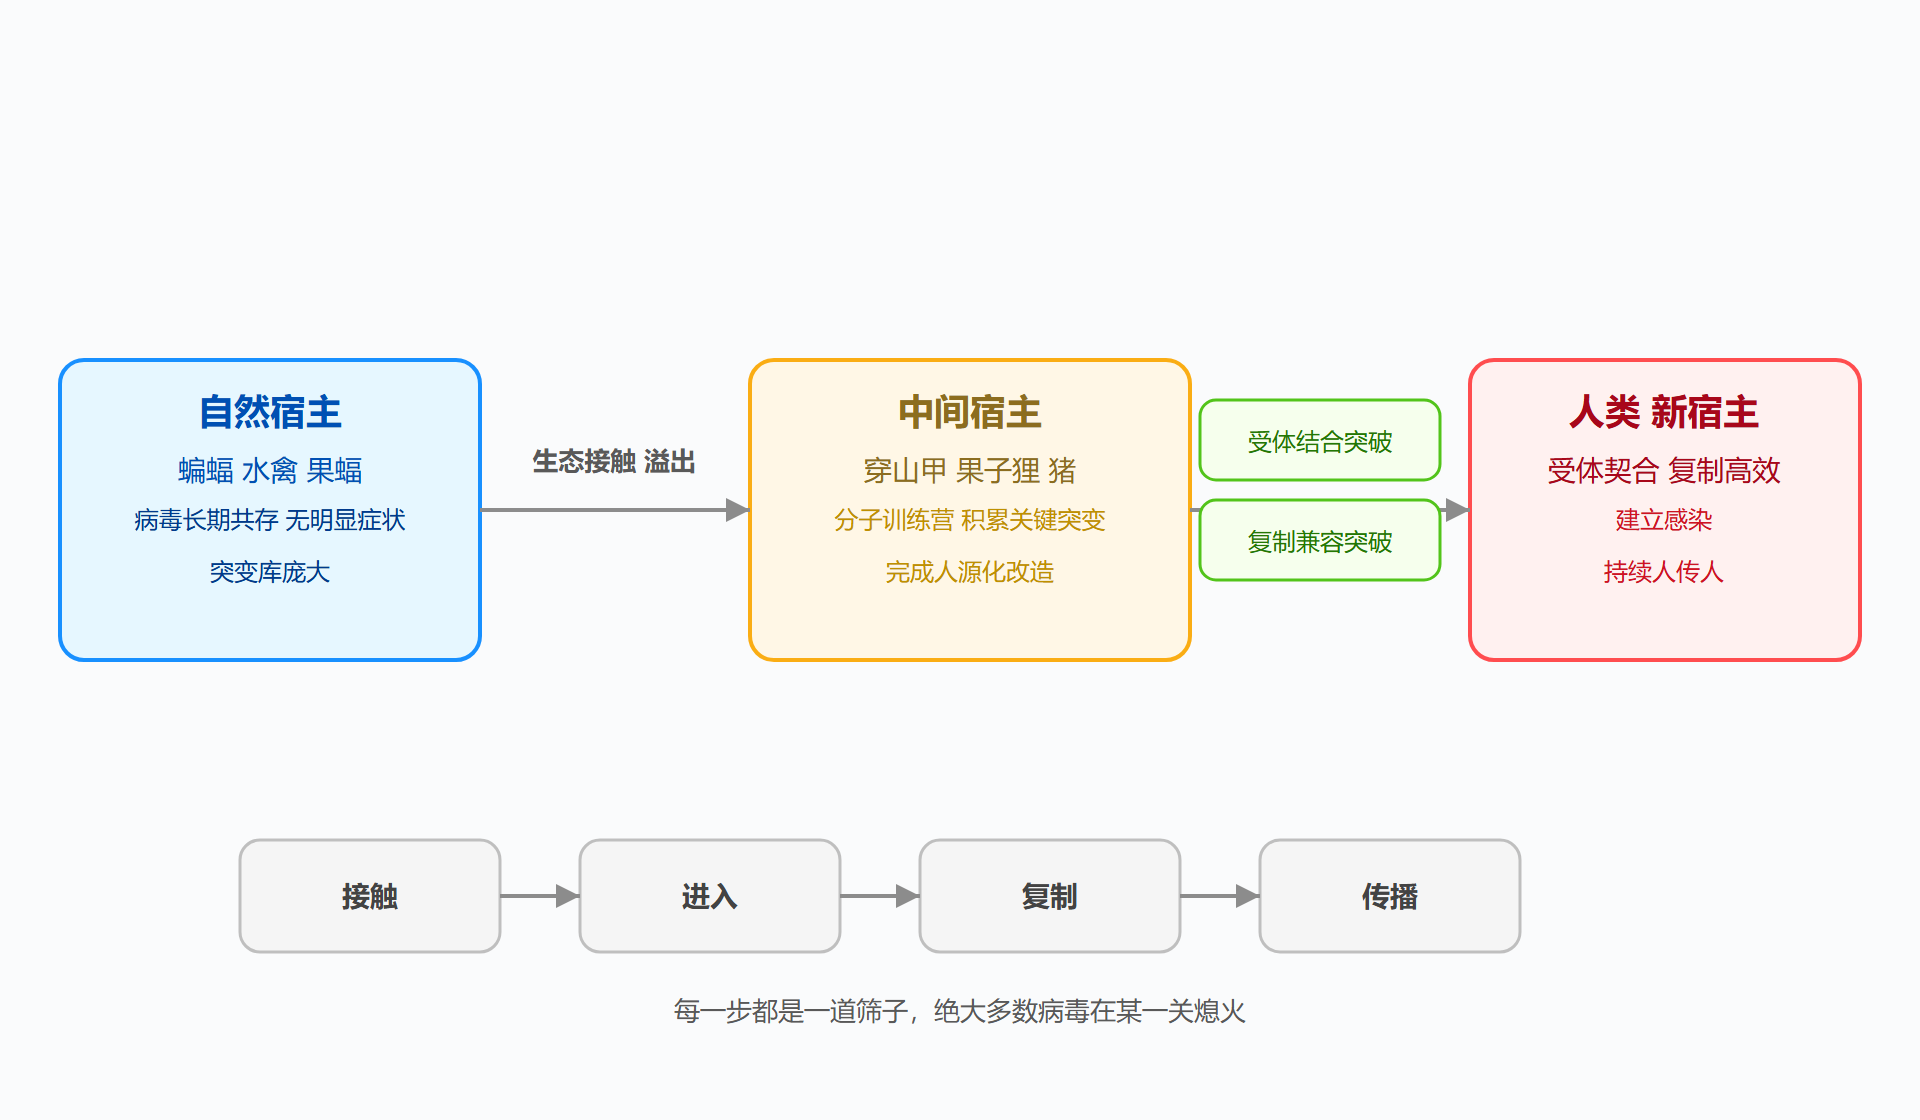
第一关是生态接触。病毒得先有机会碰上新宿主。这取决于自然宿主的栖息地、人类的活动范围、贸易和养殖链条。蝙蝠把病毒带到某个市场,果子狸或穿山甲在中间周转,人就接触到了。这一关是概率问题,跟分子机制关系不大,但它是后面一切的起点。
第二关是受体结合。病毒表面的"钥匙"得能对上人类细胞表面的"锁"。对不上,就进不了门。流感病毒偏好禽类肠道的受体,人类上呼吸道受体结构不一样,所以禽流感通常很难直接感染人。
第三关是复制兼容。就算进了门,病毒的复制机器也得能用人细胞里的"零件"干活。很多禽流感病毒进得了哺乳动物细胞,却因为复制效率太低而传不开。
第四关是持续传播。病毒要能在人与人之间稳定传下去,而不只是"感染一个就断了线"。只有闯过这一关,才谈得上疫情。
图注:跃迁像一台层层过滤的筛子,每一关都刷掉大量病毒,能一路闯到"持续传播"的少之又少。
三、受体结合:钥匙和锁
受体结合是跃迁的第一道分子关卡,也是研究得最透的一环。核心就是一句话:病毒的表面蛋白,得和人细胞上的受体对上号。
流感的例子最直观。禽流感病毒的血凝素偏好结合一种叫"α2,3 唾液酸"的受体,这种受体主要分布在禽类的肠道和呼吸道;人类上呼吸道则富集另一种"α2,6 唾液酸"受体。两者结构差一点点,但这点差别足以让禽流感在人身上难以有效感染。一旦血凝素的受体结合区发生关键突变,让偏好从"α2,3"转向"α2,6",病毒就朝人源化迈出了关键一步。
冠状病毒走的是另一套受体,但逻辑一样。SARS 和新冠都用人类细胞表面的 ACE2 当锁。蝙蝠携带的近亲病毒,其刺突蛋白对蝙蝠 ACE2 结合得不错,对人类 ACE2 却结合得很勉强。真正能感染人,需要刺突蛋白上几个关键位点的调整,把对人 ACE2 的亲和力提上来。
这里有个要点值得记住:受体结合不是"能结合就万事大吉",而是要"结合得恰到好处"。太弱进不去,太强也可能反而不利。病毒往往是在中间宿主里慢慢磨,磨到刚好的程度。这也是为什么很多跨种病毒在最初几代感染里表现平平,要经过一段磨合才真正具备流行潜力。
四、复制兼容:换城市之后的车况
过了受体这关,病毒还要面对一个更隐蔽的坎:复制兼容。
病毒的复制依赖宿主细胞里的各种因子。这些因子在不同物种之间是有差异的,就像同一款发动机在不同海拔和气温下的表现不同。禽流感病毒习惯了禽类四十度左右的体温和禽类特有的宿主因子,一旦进到三十七度的人体里,复制机器就有点"水土不服"。
一个经典案例是流感聚合酶上的 PB2 蛋白。禽源病毒的这个位置有个谷氨酸,在哺乳动物细胞里复制效率很差;当它突变成赖氨酸之后,病毒就能更好地利用哺乳动物的宿主因子,复制效率大幅提升。这一个位点的变化,经常被看作禽流感"人源化"的标志之一。监测系统盯这个位点,盯的就是病毒是否已经跨过了复制兼容这道坎。
这个例子说明,跃迁不是简单换一把钥匙,而是整台机器要重新调校。受体结合解决的是"进不进得去",复制兼容解决的是"进去之后干不干得动"。这也解释了为什么禽流感偶尔能感染个别接触者,却迟迟传不开——它可能已经过了受体这关,却卡在复制兼容这关。
五、中间宿主:分子训练营
直接从一个宿主跳到另一个,往往跨度太大,病毒容易"摔死"。中间宿主的存在,相当于给病毒搭了一座缓坡。
蝙蝠是很多病毒的天然宿主,但它体内的病毒未必能直接感染人。中间宿主——比如穿山甲、果子狸、猪——体温、受体结构、免疫环境可能恰好介于蝙蝠和人类之间,病毒在它们体内复制时,既承受着选择压力,又获得了积累关键突变的机会。等这些突变攒够了,病毒再跳到人身上,成功率就高得多。
可以把它比作一座桥。两岸是自然宿主和人类,中间宿主是桥墩。没有桥墩,河太宽,病毒跳不过去;有了桥墩,一段一段地跳,风险就小多了。SARS 的果子狸、新冠研究中被反复讨论的穿山甲、尼帕病毒传播链里的猪,扮演的都是这个"桥墩"角色。
💡 关键直觉:中间宿主不是病毒的"终点站",而是"训练营"。真正危险的不是蝙蝠身上有病毒,而是病毒在某个中间宿主里完成了人源化的关键改造。因此,防控不能只盯自然宿主,更要盯紧那些连接野生动物和人的中间环节。
下表把几个典型跃迁案例并排比较,规律一目了然:
| 病毒 | 自然宿主 | 中间宿主或载体 | 受体或关键入口 | 跃迁关键点 |
|---|---|---|---|---|
| SARS 冠状病毒 | 蝙蝠 | 果子狸 | ACE2 | 刺突蛋白人源化调整 |
| 新冠近亲病毒 | 蝙蝠 | 讨论中的中间宿主 | ACE2 | 受体结合域关键突变 |
| H5N1 禽流感 | 水禽 | 家禽 | 唾液酸受体 | 受体偏好转向人源型、PB2 突变 |
| 尼帕病毒 | 果蝠 | 猪 | ephrin-B2 | 中间宿主扩增后传人 |
图:宿主跃迁路径
六、工程实践要点:把跃迁挡在闯关之前
理解跃迁机制,最终目的是把防线往前推。我归纳三点。
第一,监测要盯"人源化标志位点"。与其等疫情爆发,不如盯着那些已知的关键位点——比如流感 PB2 的某个位点、刺突蛋白受体结合区的几个热点。一旦在野生动物或中间宿主身上发现这些位点开始变化,就该拉响预警。
第二,把中间宿主管理当作硬防线。很多跃迁的"训练营"就藏在养殖场和活禽市场里。规范活禽交易、加强养殖环节的生物安全,等于拆掉病毒跃迁的桥墩,效果往往比事后扑杀更根本。
第三,用"同一健康"的思路把生态、兽医、人医串起来。病毒跃迁跨越物种,我们的防线也不能只设在医院门口。野生动物的监测数据、家畜的健康状况、人的就诊记录,放在一起看,才能拼出完整图景。
⚠️ 常见坑:只盯着"能不能人传人",而忽略"能不能在中间宿主里扩增"。不少危险病毒在人传人能力尚弱时,就已经在猪或家禽群里大量扩增,等于在人类防线外悄悄练兵。防控窗口往往在它还没学会人传人之前,等它学会了,就晚了。
七、为什么溢出还是那么难预测
理解了上面四道关卡,很容易产生一个错觉:只要把受体、PB2、中间宿主都盯住,溢出就能提前预报。现实没这么便宜。第一,关键突变是稀罕且随机的,受体结合区的某个位点会不会变、什么时候变,没人能打包票。第二,我们对野生动物病毒库的了解少得可怜,人类鉴定过的病毒可能只是自然界病毒总数的一个零头,蝙蝠身上还藏着多少我们叫不出名字的病毒,本身就是未知数。第三,中间宿主的链条常常不透明,一个市场里动物怎么周转、和谁接触过,往往事后才拼得出来。
所以现实里的策略不是"精确预报下一次溢出",而是退一步做风险分级:把已知的高危病毒家族、高危位点、高危场景列成清单,用早期信号监测兜底。就像地震预警不预测哪一秒震,而是提前布好台网、盯紧前震。溢出防控同理——我们承认无法预知,才更要把有限的资源押在概率最高的那几个点上。
核心回顾
- 跃迁是四道关卡的闯关过程:生态接触、受体结合、复制兼容、持续传播,层层筛选。
- 受体结合决定"进不进得去":流感看唾液酸受体,冠状病毒看 ACE2。
- 复制兼容决定"进去后干不干得动":PB2 的关键突变是禽流感人源化的标志。
- 中间宿主是跃迁的桥墩:给病毒提供了积累关键突变、完成人源化改造的缓坡。
- 溢出难得,是因为关卡多:绝大多数跨种接触都在某一道关熄火。
- 防线要前移:盯人源化位点、管住中间宿主、用"同一健康"思路整合多部门数据。
到这里,我们已经把"变异—适应—跃迁"这条从分子到生态的链条走完了。病毒在微观世界里攒够本事,最终在生态尺度上改变人类社会的走向。下一章,我们把镜头拉远,看病毒与整个生态系统、与野生动物的跨物种界面,理解这些跃迁事件到底在什么样的自然舞台上上演。