4.1 自然宿主库与病毒圈
4.1 自然宿主库与病毒圈
本节摘要:病毒圈(virosphere)指地球上全部病毒及其与宿主的互作网络,规模大得吓人——光海洋里的病毒颗粒就比细菌多出约一个数量级。自然宿主库则是病毒能长期停留、维持遗传多样性的动物种群,蝙蝠、啮齿类、迁徙鸟类是典型代表。这两个概念合起来回答一个基础问题:病毒平时待在哪、在干什么。本节还会重点讲噬菌体分流——海洋噬菌体裂解细菌、把有机碳留在深层海水的机制,这是病毒参与全球碳循环最直观的一条证据。
本节目标
阅读完本节,你应当能够:
- 说清病毒圈与自然宿主库各自指什么、什么关系。
- 解释蝙蝠这类宿主库"带毒不发病"的免疫学逻辑。
- 用噬菌体分流说明病毒在碳循环里的生态角色。
- 判断哪些生态破坏会动摇宿主库稳定、抬高溢出风险。
- 理解宿主库监测在新发传染病预警里的用处与盲区。
一、病毒圈:一套看不见的生态基础设施
先给个尺度上的印象。如果把地球上所有病毒颗粒加总,它们的总质量超过全部鲸鱼的总重;单是海洋里,每毫升海水大约有几百万个病毒颗粒,比同体积里的细菌还多出近一个数量级。这个由病毒构成、几乎无处不在的集合,就是病毒圈。
我倾向于拿一座城市来类比。一座城市能运转,靠的不只是看得见的楼和路,还有埋在地下的管网、垃圾清运、污水处理这些"看不见的部门"。病毒圈在生态里扮演的正是这种角色:它不是城市里的入侵者,而是环卫系统的一部分。噬菌体每天大量裂解细菌,相当于把细菌种群控制在合理密度,防止某一种细菌无限膨胀。这件事放到海里、土里、动物肠道里,每天都在发生。
病毒圈这个词的关键,不在"圈"这个地理边界,而在"关系网络"。病毒必须依赖宿主才能复制,所以病毒圈本质上是一张以宿主为节点、以感染事件为连线的网。网的一头连着最微小的细菌,另一头连着大型脊椎动物。理解了这张网,你再看任何一种病毒,就不会只盯着它会不会致病,而会先问一句:它在网里处在什么位置、平时和谁打交道。
为什么这件事重要?因为我们对病毒的恐惧,大多来自"它跳到人身上"那一下;可病毒绝大多数时间都活在别的宿主里,干的也是别的事。只研究致病那一段,等于只看一座城市的火灾记录,却不看它的消防、供水和垃圾系统。病毒圈视角的价值,就是把天平摆正,先看全貌,再看那少数的危险分子。
二、自然宿主库:病毒的长期仓库
自然宿主库,通俗说就是病毒能长期住下来的动物种群。它和病死宿主是两回事:病死宿主是被病毒打垮的个体,而宿主库里的动物大多自己不怎么发病,却能持续带毒、排毒,让病毒在种群内部一代代传下去。
为什么蝙蝠、啮齿类、鸟类特别适合当宿主库?因为要当仓库,得满足几个条件。第一,种群密度要高、寿命要长,这样病毒才有足够多的宿主可感染、足够长的时间可停留。蝙蝠一个洞穴能挤上百万只,寿命能到几十年,两条都占。第二,宿主的免疫系统得忍得住——既不能让病毒把自己打死,也不能把病毒彻底清掉。
这第二条最反直觉。我们人类的免疫系统遇到病毒,往往是一场剧烈的炎症反应:发热、红肿、全身调动免疫细胞去围剿。这种全城戒严式的反应能快速清除病原,代价是容易误伤自身组织。蝙蝠不一样。研究显示,蝙蝠的干扰素通路长期维持在一个较低但持续的水平,相当于只派社区巡逻,不拉全城警报。这么做的结果,是病毒能在蝙蝠体内长期低水平复制、积累突变,蝙蝠自己却几乎不生病。学界把这叫免疫调谐,我更愿意叫它可控妥协:宿主用低炎症,换来了和病毒长期共存的资格。
这个机制解释了困扰很多人的一个现象:同样是冠状病毒,在蝙蝠体内可能几十年相安无事,一旦跨到人身上就凶相毕露。差别不在病毒本身,而在宿主给它的生存环境。宿主库就像一个"病毒银行":平时安静地存着遗传多样性,一旦环境扰动打破平衡,就可能释放出所谓的"演化贷款",变成溢出事件。
三、噬菌体分流与碳循环
病毒圈里数量最庞大的成员是噬菌体——专门感染细菌和古菌的病毒。它们不致病,但对地球生态的贡献比所有病原体加起来都大,核心机制叫病毒分流。
要理解病毒分流,可以把它想成粮食运输线上的一个岔路口。海洋里的浮游植物光合作用固定二氧化碳,这些有机碳本该顺着"细菌、浮游动物、鱼"的食物链一级级往上走。但噬菌体会在半路裂解细菌:细菌被撑破后,里面的有机物变成溶解态有机碳,散到海水里。这部分碳不再进入食物链上层,而是留在原位、慢慢沉向深海。于是,本应向上传递的碳,被分流到了向下封存的方向。
这个岔路口有多大能量?海洋噬菌体每天裂解的细菌数量是天文数字,据估计每天约有两成的海洋细菌被噬菌体裂解。这意味着病毒分流每年把巨量有机碳从"可被吃掉的形态"转成"下沉封存的形态",直接影响全球碳泵的效率。没有噬菌体,海洋的碳循环节奏会完全变样,大气里的二氧化碳浓度也会跟着变。换句话说,病毒在替地球调节气候这件事上,扮演了一个我们长期没看见的角色。
这里还要提一句"微生物环":被裂解出来的溶解态有机碳,一部分沉下去,另一部分又会被细菌重新吃掉、再次进入循环。所以病毒分流不是把碳一锤子定死,而是给碳循环加了一个反复周转的回路,让物质在表层多停留几轮、效率更高。这层细节不用背,记住一个结论就够了:病毒不是生态的破坏者,而是碳循环这台机器里的一个关键齿轮。
图:噬菌体分流的碳流向
这张图讲的是病毒分流的两个出口:一个是裂解产生的溶解态有机碳沉向深海,另一个是原本该上传食物链的碳被截了胡。两条线最终都指向同一个后果——碳被封存在更深的地方,全球碳循环的节奏被改写。
图:病毒圈的分层结构
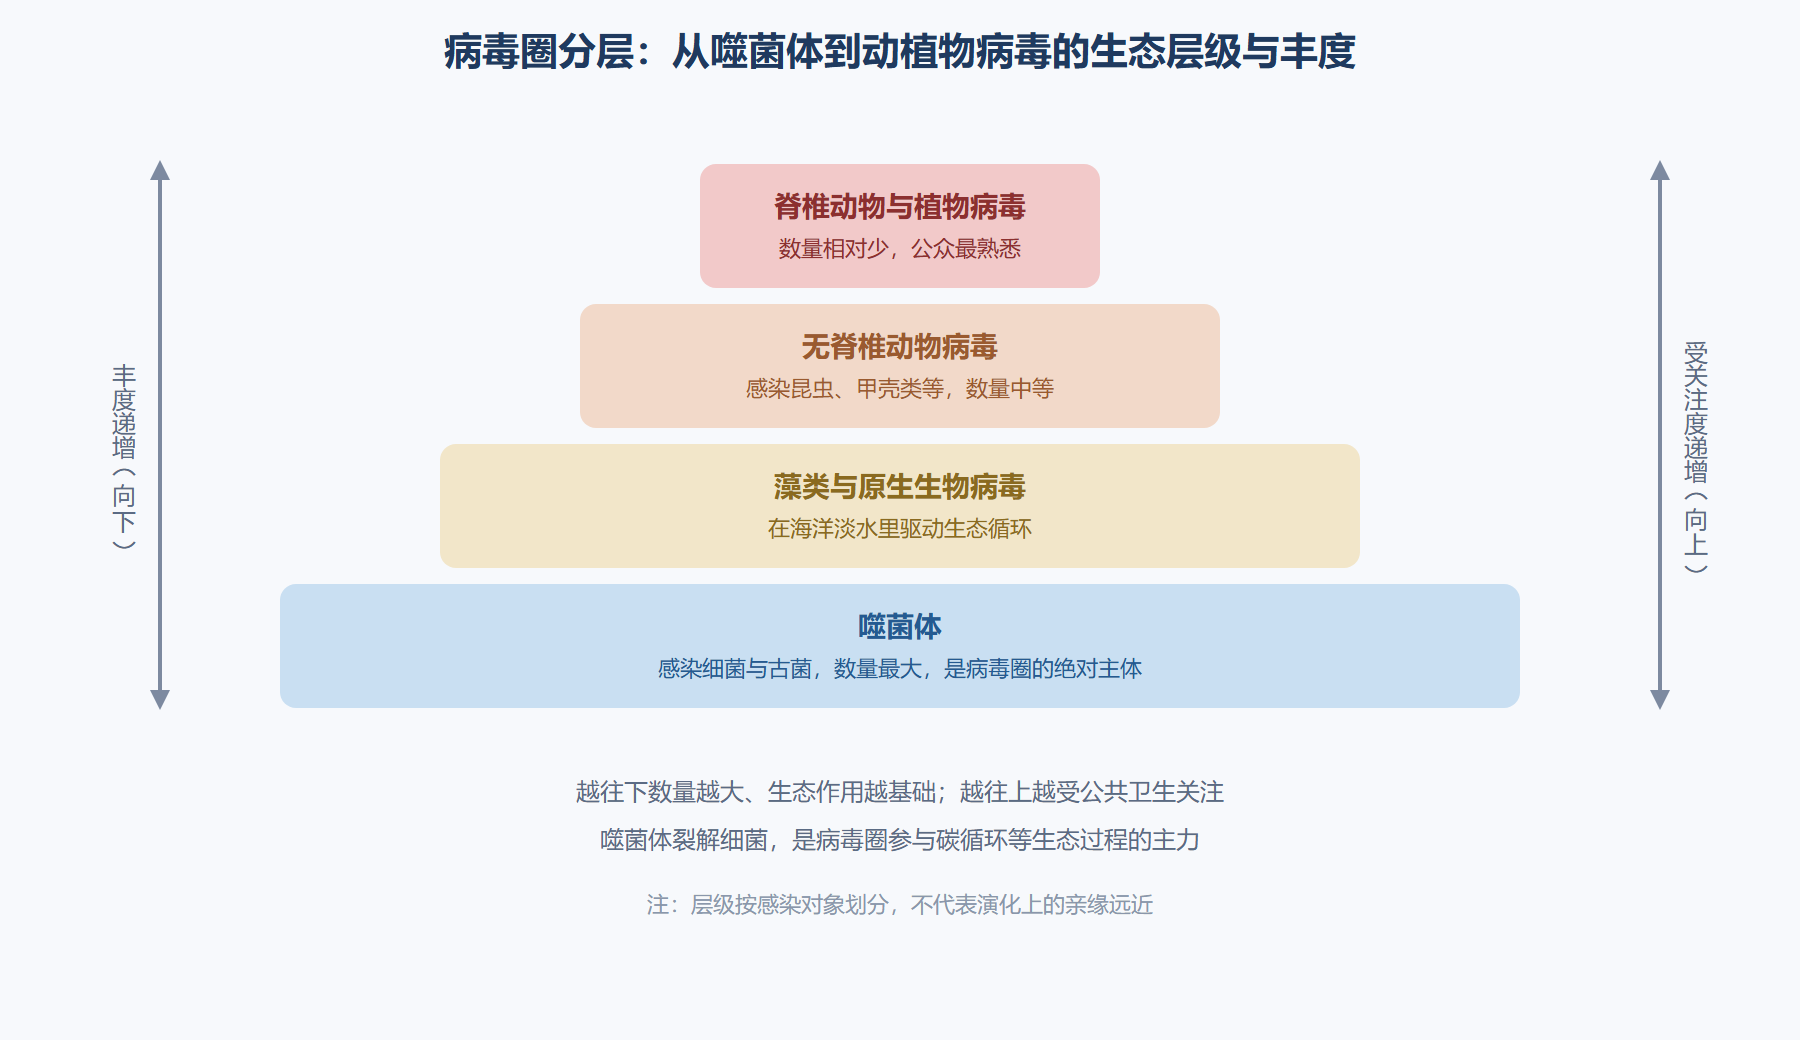
这张金字塔图想强调一件事:病毒圈的丰度集中在噬菌体,而公众注意力集中在顶层那少数的动植物病毒。认识病毒圈,先得把这座金字塔的底盘看清楚。
四、宿主库的双刃剑:保护与风险的权衡
宿主库既是生态系统的稳定器,也是新发传染病的潜在货源。同一种群,站在生态角度看是"病毒多样性银行",站在公共卫生角度看就是"风险源头"。这里面的取舍,我用一张表说清楚。
| 宿主类型 | 寿命与密度 | 免疫特点 | 代表病毒 | 生态角色 |
|---|---|---|---|---|
| 蝙蝠 | 寿命长、密度高 | 干扰素持续低水平 | 冠状病毒、亨德拉相关病毒 | 传粉、种子传播、控制昆虫 |
| 啮齿类 | 寿命短、繁殖快 | RNA 病毒识别受体有变异 | 汉坦病毒、沙粒病毒 | 种子传播、被捕食者 |
| 迁徙鸟类 | 寿命中等、长途迁徙 | 飞行代谢抑制炎症 | 禽流感病毒 | 跨洲传播、生态指示 |
这张表想说明的是:宿主库的价值和风险绑在一起。蝙蝠吃蚊子、传花粉、撒种子,是森林和农田里的生态工人;可它身上又长期带着一大类冠状病毒。想通过扑杀蝙蝠来消灭病毒,等于拆掉整条生态链,往往得不偿失。
⚠️ 常见坑:把宿主库当病原体一起消灭。蝙蝠、啮齿类这些种群被大规模扑杀后,幸存个体的密度和行为都会变,有时反而让病毒传播得更快,还顺带破坏了授粉、种子传播这些生态服务。
💡 关键直觉:蝙蝠不是邪恶的病毒仓库。它只是演化出了一套低炎症、低干扰素的免疫策略,让自己能带着病毒活几十年。看懂这个,你就不会再把防控简化成"杀光宿主"。
五、宿主库知识怎么落地:监测与缓冲
理解宿主库,最终要变成能用的动作。目前有两个方向值得说。
第一个是哨兵监测。传统监测盯着人发病,等于病毒已经跳过来才报警。宿主库监测把警报点往前挪:在蝙蝠洞穴、候鸟停歇地、活禽市场布采样点,定期看病毒多样性和载量是不是在异常波动。这样做的前提,是承认病毒库会持续演化,我们要盯的是趋势,不是某一个已知序列。
第二个是生态缓冲。既然宿主库稳定与否取决于栖息地完整性,那保护栖息地本身就是一道防疫工程。有团队在森林边缘试种能温和上调蝙蝠干扰素的植物,把局部病毒载量压下去,同时不惊动整个种群。逻辑很像农业里的轮作休耕:不是把害虫赶尽杀绝,而是调整环境,让风险自然降下来。
这两个方向都指向同一个判断:防控传染病和种地一样,功夫在养地,不在杀虫。把宿主库的栖息地、食物、免疫状态照顾好了,溢出风险自己就降一截。
⚠️ 常见坑:只测已知病毒、只看单一序列。宿主库里真正危险的往往是还没成名的变异株,只盯着已知病原会漏掉关键信号。监测必须同时记录病毒多样性的波动趋势,而不是只比对几条已知序列。
💡 关键直觉:与其在溢出发生后花大力气扑杀、消毒,不如在溢出发生前管住宿主库的栖息地。前者的代价呈数量级上升,后者的成本却摊在日常的生态管理里。
重点提炼
- 病毒圈:地球上全部病毒及其与宿主的互作网络,是生态的基础设施而非入侵者。
- 自然宿主库:病毒能长期停留、维持多样性的动物种群,与病死宿主是两码事。
- 免疫调谐:蝙蝠等宿主靠低炎症、低干扰素与病毒长期共存,这是带毒不发病的根源。
- 病毒分流:噬菌体裂解细菌,把有机碳从食物链分流向深海,直接参与全球碳循环。
- 双刃剑:宿主库既稳定生态,也是新发传染病货源,扑杀往往得不偿失。
- 落地路径:哨兵监测盯趋势、生态缓冲调环境,比杀光宿主更有效。
下一节我们把人兽共患病界面动力学单独拎出来,看病毒从这些仓库出发后,是沿着哪条路、被哪些人类活动一步步推到人群里去的。