5.1 应用驱动类群工程:从里氏木霉到酿酒酵母
5.1 应用驱动类群工程:从里氏木霉到酿酒酵母
本节摘要:工业真菌改造的正确姿势不是从零构建人工生命,也不是粗暴的基因堆叠,而是"类群—功能—干预"的三维映射:以真实存在的真菌类群为底盘,以明确应用目标为牵引,在演化约束与工程理性之间寻找最优解。本节以里氏木霉纤维素酶工程与酿酒酵母青蒿素前体合成为双标本,拆解"底盘适配层、通路重构层、界面优化层"三层嵌套框架,并揭示其共同哲学:真菌工程的终极对象是细胞整体的功能涌现,成功的前提是尊重进化遗产。
本节地图
阅读完本节,你应当能够:
- 说出支撑真菌可工程性的三个结构性特征
- 解释"底盘适配"为何必须超越"哪个菌株好用"的经验判断
- 复述青蒿素前体工程中细胞器区室化的关键改造
- 分析纤维素酶分泌工程的三管齐下策略
- 阐明"尊重进化遗产的工程哲学"的含义
一、问题与直觉
为什么改造真菌,而不是直接用大肠杆菌?因为真菌天然拥有三件细菌给不了的东西:强大的次级代谢合成能力、惊人的蛋白分泌通量、以及在非无菌环境下稳健生长的体质。全球酶市场的主力生产者是丝状真菌,抗体药物的大规模生产也曾长期依赖真菌表达系统——这支被人类驯化了数千年的"生物工程师军团",不是实验室里造得出的。
但天然的好底子不等于好产品。野生型里氏木霉能分泌每升上百克蛋白,可其启动子响应滞后、峰值短暂;酿酒酵母有完整的甲羟戊酸途径,却几乎不产萜类。应用驱动类群工程要解决的正是这个落差:如何在不破坏真菌生理框架的前提下,把"能做什么"改写成"高效做什么"。
支撑这套工程可行性的,是真菌生物学的三个结构性特征。其一,转录调控高度模块化——上游激活序列、核心启动子、下游调控元件构成可组合的"调控语法",同一启动子在不同碳源下呈现数量级差异的响应幅度。其二,分泌系统可塑且冗余——内质网到胞吐的完整链条上多个环节存在功能补偿,允许削弱一条通路的同时强化另一条。其三,代谢网络拓扑鲁棒——中心碳代谢与次级代谢分支通过乙酰辅酶 A、丙二酰辅酶 A 等少数关键节点柔性连接,只要精准调控这些"代谢交点"的通量分配,就能在不崩坏基础代谢的前提下把大量碳流导向目标产物。
二、底盘适配层:读懂生理惯性
工程的第一步不是动基因,是画像。系统性"类群功能画像"包括:解析目标类群的基因组结构变异图谱(如木霉属纤维素酶基因簇的拷贝数多态性)、量化转录组在不同诱导条件下的动态响应曲面、测定分泌囊泡的载荷容量与酸碱耐受区间、绘制内质网应激反应的阈值曲线。
这项工作的价值有量化证据:一项针对黑曲霉的多组学整合分析表明,仅凭基因组注释预测的蛋白分泌潜力与实际酶活的相关性不足 0.4;引入分泌囊泡蛋白组与内质网应激标志物的联合指标后,预测精度跃升至 0.87。这印证了一个朴素真理:底盘不是静态容器,而是有自身生理惯性的动态系统——适配是理解其内在节奏后的顺势而为,不是粗暴校准。
⚠️ 常见坑:跳过画像直接套用文献里的启动子与培养方案。不同菌株甚至不同孢子的遗传背景差异,能让同一套方案的效果差出数倍——底盘适配的账不能省。
💡 关键直觉:把底盘想象成一位有自己脾气的手艺人:你的任务不是重造他的双手,而是为他安排最适合其手艺的工序。
三、通路重构层:在代谢交点做外科手术
以酿酒酵母合成青蒿素前体紫穗槐二烯为例,这一步的教训与突破最有代表性。
传统思路是把甲羟戊酸途径的全部基因串联过表达。结果适得其反:单纯过表达关键酶导致细胞内乙酰辅酶 A 池枯竭、生长严重抑制——因为该酶同时消耗着脂肪酸合成与组蛋白乙酰化都在抢的前体。基因堆叠不解决问题,反而制造代谢内战。
真正的突破来自对三个维度的同步驾驭:其一,时序控制——把关键基因置于葡萄糖阻遏敏感型启动子之下,高糖阶段低表达以保全基础代谢,低糖诱导阶段高表达以驱动通路;其二,区室化——把限速酶靶向至过氧化物酶体,利用该细胞器内高出胞质数倍的乙酰辅酶 A 浓度与更快的辅酶再生速率,使局部反应速率提升数倍;其三,辅因子自给——在细胞器内同时导入原位生成乙酰辅酶 A 的酶系,补上区室化带来的底物缺口。三管齐下,紫穗槐二烯滴度达到每升克级,是胞质表达对照组的十几倍,且生长抑制大幅缓解。
这条路线揭示的铁律是:通路重构的成功不取决于基因数量,而取决于对细胞器区室化、代谢物分区、辅因子时空分布三重维度的同步驾驭。真菌细胞器不是被动容器,而是可被主动征用、功能重定义的亚细胞工程单元。
四、界面优化层:打通最后一步
合成了还要运出来。界面优化覆盖两大核心界面:胞内—胞外的分泌界面与胞内—细胞器的区室界面,且两者深度耦合。
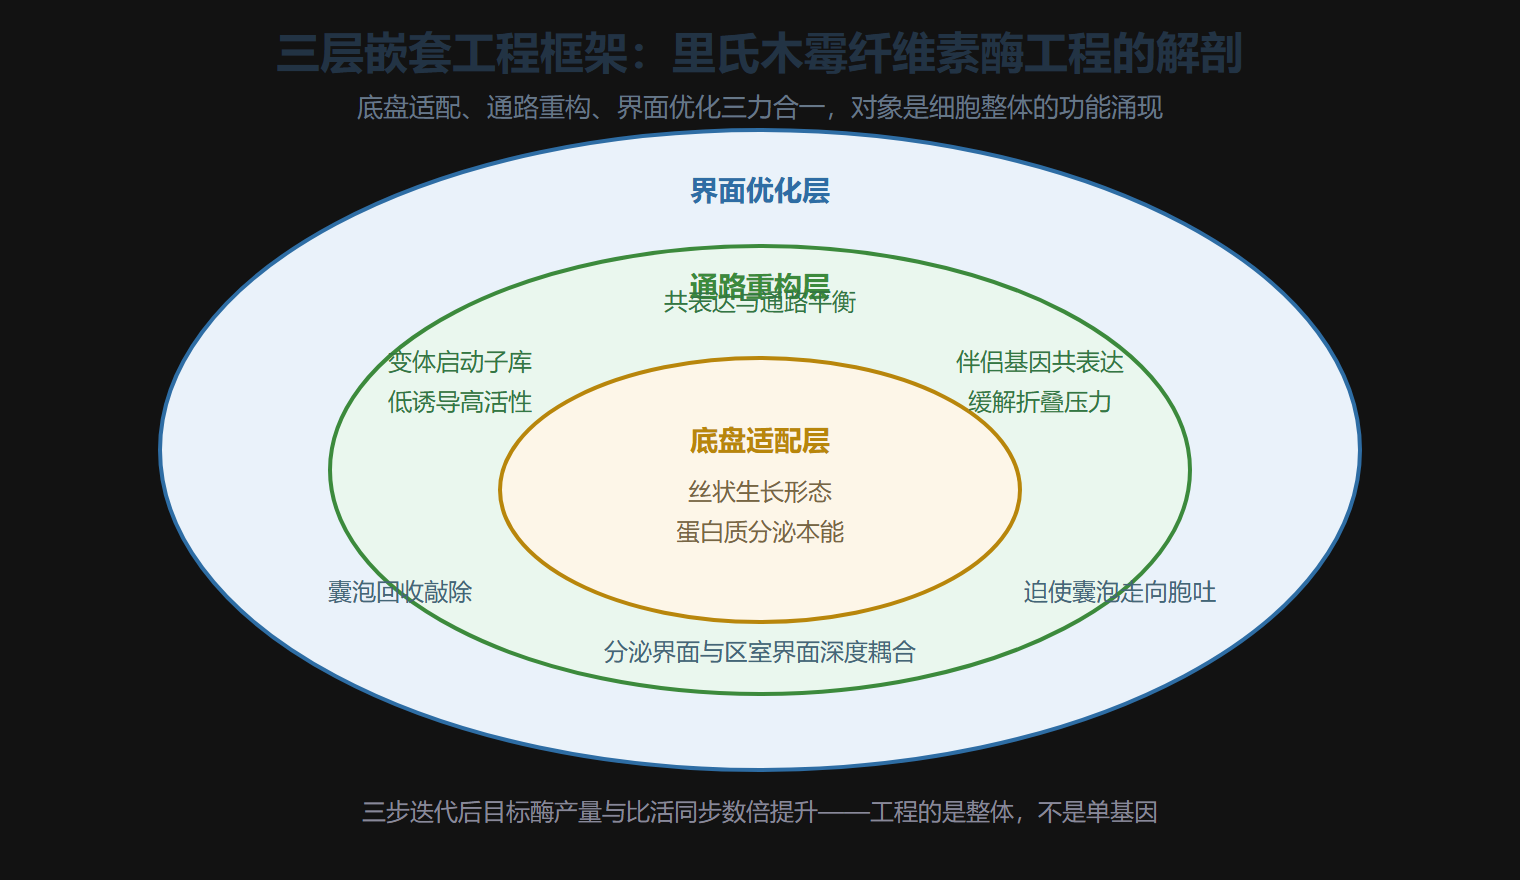
里氏木霉的纤维素酶工程是分泌界面的极限挑战案例。野生型菌株的天然瓶颈有三:启动子响应滞后、内质网折叠能力不足、囊泡回收分流。工程策略对应三步:构建基于超敏启动子元件的变体库,筛选出低浓度诱导剂下即达数倍活性的变体;通过基因编辑将分子伴侣基因与纤维素酶基因共表达,缓解折叠压力;敲除囊泡回收关键基因,迫使更多装载酶蛋白的囊泡转向胞吐而非循环利用。三步迭代后,工程菌株的目标酶产量较出发菌株提升数倍,比活同步提高——这不是偶然叠加,而是底盘适配、通路重构、界面优化三力合一的结果。
三层嵌套工程框架
五、两条路线的共性哲学
纤维素酶工程与青蒿素前体工程,表面路径迥异,内核相通:真菌工程的终极对象不是 DNA 序列,而是细胞作为整体的功能涌现。你无法脱离木霉的丝状生长形态谈分泌,正如无法脱离酵母的球形形态谈区室化效率。
"应用驱动类群工程"因此是一种尊重进化遗产的工程哲学:不试图把真菌改造成细菌或哺乳动物细胞,而是深度阅读其基因组这部"进化之书",识别其中被自然选择千锤百炼的调控模块、鲁棒通路与适应性界面,再以现代工具进行精准的注释、编辑与重连。这就像老练的园丁不强行扭曲古树枝干,而是顺其年轮走向修剪冗余、嫁接优穗、引导养分流向花果——收获的既是符合自然逻辑、又满足人类需求的生命硕果。
| 工程决策 | 常见错误做法 | 框架推荐做法 |
|---|---|---|
| 选底盘 | 跟风用文献明星菌株 | 按应用目标做类群功能画像 |
| 提产量 | 无脑串联过表达基因 | 在代谢交点做时序与区室干预 |
| 促分泌 | 只换强启动子 | 启动子、折叠、囊泡三靶协同 |
| 异源产物 | 胞质直接表达 | 细胞器微环境匹配 + 辅因子自给 |
| 验证 | 只看摇瓶产量 | 全程监测应激指标与生理稳态 |
一个容易忽略的验证维度值得单独点出:工程菌株的遗传稳定性。多拷贝表达盒在无选择压力的连续发酵中可能逐步丢失,启动子的表观沉默也会让产量逐批衰减——正规验证应包含数十代传代后的产量保持率测试,而不是只报告峰值批次。这类"工程债务"在放大生产阶段才集中暴发,早一天纳入监测就少一笔返工成本。
六、延伸:从单菌优化到跨域协议编译
这一范式的前沿已越过单菌改造。所谓"根际真菌—细菌协同回路",通过定向装配丛枝菌根真菌与固氮菌的代谢互作模块,使水稻在减氮三成条件下维持产量稳定——这不是单菌优化,而是跨域生命协议的编译:真菌提供磷获取界面,细菌提供固氮能力,植物提供碳报酬,三条代谢流在设计的回路中闭环。当工程对象从菌株升维到群落,第 3 章讲的功能互补原理就变成了设计图纸。
基础设施层也在跟进这个升维。未来的图景是"实验室—田野—决策"的秒级闭环:农业部门上传当地土壤光谱与气象数据,平台即时调用全球真菌互作知识图谱,推荐数种本土化菌剂组合并模拟未来数年不同气候情景下的稳产概率;决策者确认后,定制化菌剂已在邻近生物制造中心以连续发酵方式开始生产。知识从此具备地理坐标的即时响应性——今天需要数年的"论文、专利、中试、推广"链条,被压缩成一次数据往返。这听起来激进,但其组件技术(导航选配、通量模拟、连续发酵)都已在各自领域跑通,缺的只是集成与验证。
一节小结
- 三大结构特征:调控模块化、分泌冗余性、代谢拓扑鲁棒——它们划定了真菌的可工程空间
- 画像先行:基因组注释对分泌潜力的预测相关性不足 0.4,加入应激与囊泡指标后跃至 0.87
- 交点铁律:通路重构成败取决于细胞器区室、代谢物分区、辅因子分布三重维度的同步驾驭
- 三管齐下:启动子工程、伴侣共表达、囊泡重定向的协同是分泌瓶颈的完整解
- 涌现对象:工程的对象是细胞整体功能涌现,脱离形态谈功能必败
- 协议编译:前沿已从单菌优化升维到跨域群落回路设计
应用真菌类群的"底盘"选型对照 ───────────────────────────────────────────── 目标产物 常用底盘 关键改造 ───────────────────────────────────────────── 柠檬酸 黑曲霉 代谢流 重定向 青霉素 产黄青霉 前体 供给扩增 蛋白酶/脂肪酶 米曲霉 分泌 信号强化 重组蛋白 酿酒酵母/ 糖基化 里氏木霉 途径人源化 油脂替代 产油酵母 乙酰辅酶A (Yarrowia) 池扩容 ───────────────────────────────────────────── 选型原则:先看分泌能力与遗传 工具成熟度,再比产物滴度上限
菌株工程迭代记录(青霉素滴度跃迁史) ───────────────────────────────────────────── 阶段 手段 滴度量级 ───────────────────────────────────────────── 1940s 天然株 自然分离 ~1 U/mL 1950s 紫外诱变 突变文库筛选 ~200 U/mL 1990s 代谢工程 前体通路扩容 ~5 万 U/mL 2010s 基因组 多靶点耦合 >8 万 U/mL 编辑+AI 定向 ───────────────────────────────────────────── 启示:四十年四个数量级,每一 级都靠"筛选+理性改造"双轮, 单靠自然进化从未跨过两级
下一节转向硬币的另一面:当同一套可塑性被病原真菌用来适应医院环境与全球贸易网络,生物安全治理为什么必须放弃静态清单思维。