6.1 技术驱动的认知突破:状态解析时代
6.1 技术驱动的认知突破:状态解析时代
本节摘要:经典真菌学把真菌默认为均质静态的"生物个体",而真实情境中的真菌是持续重写的活体程序——同一份白念珠菌临床样本,批量测序只见"菌丝基因上调",单细胞解析却能识别至少七种转录状态亚群,包括隐形的耐药庇护所。本节拆解状态解析时代的技术骨架:以"维度解耦"释放数据潜能(空间—组学解耦、单细胞—微环境解耦),以"语义重聚"重建生物学意义(跨模态对齐、先验知识注入),最终形成观测—建模—预测—验证的完整闭环。
读前必看(上)
阅读完本节,你应当能够:
- 定义"真菌状态"的概念及其组学构成
- 解释空间—组学解耦原理与单细胞—微环境解耦原理
- 说明跨模态语义重聚为何需要生物学先验知识
- 描述状态动力学模拟如何支撑精准干预
一、问题与直觉:群体平均值的暴政
一个临床案例开场。同一份口腔念珠菌病活检样本,常规 RNA 批量测序的结论是"菌丝相关基因上调"——看起来是均一的感染进程。换用单细胞分辨技术后,画面完全改观:至少七种转录状态亚群共存,一类高表达黏附素专精上皮侵袭;一类沉默黏附因子却强烈激活外排泵,构成耐药庇护所;还有一类表现出摄取宿主脂质维持静息能量的潜伏特征。这些亚群在空间上沿基底膜呈条带分布,在时间上存在可追踪的转换轨迹——受局部氧张力与免疫因子梯度调控。
群体平均值掩盖了这一切。这不是分辨率的小改进,而是研究对象定义的更替:真菌不是被观察的对象,而是正在展开的动态过程;不是等待解码的静态文本,而是持续重写的活体程序。所谓"状态解析时代",就是以高维状态空间为坐标系、以真实生物学情境为参照系、以因果推断为目标的纪元——它的反面不是旧技术,而是"均质培养皿里的真菌就是真菌本身"这个潜伏了两百年的默认假设。
二、核心概念:真菌状态的高维定义
本领域的"真菌状态"被定义为:由多组学维度联合定义、具有时空坐标、功能可解释且具备动态演进潜力的向量。它整合五个模态:转录、蛋白、代谢物、表观遗传与形态。关键在于,状态向量不是各组学数据的简单拼接,而是通过跨模态对齐算法在语义层面融合——让单细胞测序里定义的"应激响应模块"能精准映射到成像质谱图中特定质谱峰的空间富集区,再关联到免疫荧光所见的超微结构重塑。
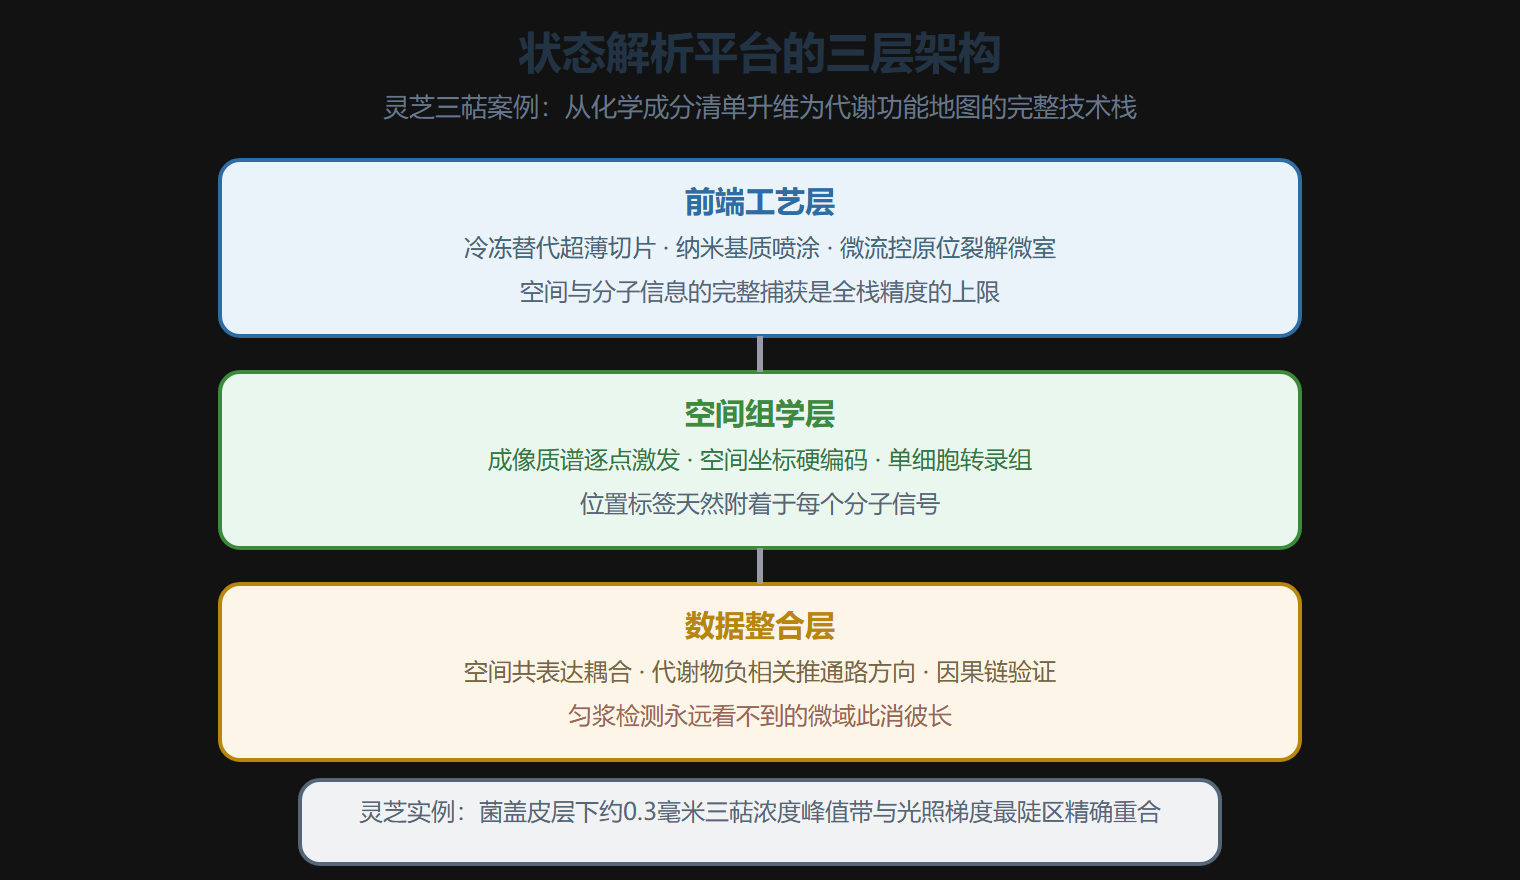
一个应用实例说明其威力:灵芝子实体横切面的空间代谢组成像显示,三萜类化合物并非均匀弥散,而是在菌盖皮层下约 0.3 毫米处形成浓度峰值带,且与次级代谢基因簇的空间共表达精确耦合——光照梯度最陡峭的区域恰是三萜富集区,光受体蛋白的核定位与三萜积累强度空间共定位。光信号感知、亚细胞定位、次生代谢激活被串成一条可验证的因果链。真菌次生代谢由此从"化学成分清单"升维为"代谢功能地图"。
这张地图的绘制精度取决于前端工艺。冷冻替代超薄切片把组织厚度控制在数微米,纳米级基质喷涂让结晶尺寸小于两百纳米,才能让成像质谱的离子产率真正逼近光学分辨极限;微流控芯片内嵌的原位裂解微室让分选后的细胞在纳升体积内立即完成逆转录,把 RNA 降解压到最低——真正的"单细胞"不仅指物理分离,更指分子信息的完整捕获。在灵芝的例子里,正是这套工艺让研究者读出了特定质荷比的三萜信号与另一种糖基化前体信号之间的强负相关——两种分子在同一微域内的此消彼长,直接指向合成通路的方向性,这是任何匀浆检测都永远看不到的信息。
状态解析平台的三层架构
三、两大原理:解耦与重聚
空间—组学解耦原理。 成像质谱并非把质谱仪"扫描化"那么简单:激光微束在冷冻切片表面逐点激发,同步采集每个像素的完整质谱图——空间坐标成为首个被硬编码的独立变量,所有分子信号天然携带位置标签。传统液相色谱质谱为灵敏度牺牲空间信息,常规组织染色为定位牺牲分子深度,成像质谱把这对老冤家解耦了。
单细胞—微环境解耦原理。 微流控单细胞分选的精髓不在"分得更小",而在"分得更智"。传统流式依赖少数表面抗体,漏检无已知标记物的状态;新型芯片集成原位荧光报告、惯性聚焦与介电泳判读三重逻辑——细胞自身的介电特性(反映膜完整性、胞内离子浓度、菌丝尖端极性)被实时电学传感,处于"侵袭准备态"的过渡亚群靠"自我申报"被捕获,无需任何先验抗体。
多模态语义重聚原理。 解耦之后必须重聚,否则只剩数据废墟。重聚依赖两件事:跨尺度空间基准统一与生物学先验注入。整合真菌单细胞数据与宿主组织空间转录组时,直接投射会产生生物学荒谬——正确做法是先构建"真菌—宿主界面拓扑图"(以组织病理为骨架标注解剖分区),再依据各亚群高表达分子的已知靶向组织赋予空间偏好权重,最后用图卷积网络做软分配,让每个单细胞状态的概率分布严格约束于其功能允许的空间范围内。知识引导的数据融合,避免纯计算对齐的荒谬。融合层的核心算法是把成像质谱的空间坐标、单细胞测序的细胞—基因矩阵与空间转录组数据建模为一个三维张量,经非负分解自动挖掘跨模态共享的功能基元——例如把灵芝酸与灵芝醇的质谱信号、与两个关键合成酶基因的共表达,锁定为一个完整的三萜骨架合成模块,且模块强度与子实体成熟度显著相关。这已不仅是发现,而是机制的直接可视化。
⚠️ 数据陷阱:把单细胞数据的技术噪音当生物学信号。单细胞测序普遍存在丢失事件与批次效应,低丰度毒力因子的"零读数"不等于"不表达"——输出概率密度而非二值判断,是这个领域的基本操守。
💡 关键直觉:技术没有"赋予"真菌智能,只是拂去认知尘埃——白念珠菌生物膜前沿细胞拓展疆域、后方细胞储备糖原、基底部细胞准备休眠的空间分工,本来就存在,只是群体平均值从未让我们看见。
四、闭环:从状态观测到精准干预
状态解析的终极价值在于把干预从"地毯式轰炸"升级为"精准外科手术"。
动力学模拟器以单细胞数据推断的伪时间轨迹为骨架,注入微环境传感器参数,模拟不同扰动下各亚群的状态转移概率流。一个经过验证的预测:氟康唑处理将特异性清除"高代谢"亚群,却富集"低转录—高外排"亚群。动物模型随即证实:该耐药庇护亚群在治疗 72 小时后占比从 5% 跃升至 37%,且其外排泵基因启动子区的表观遗传修饰显著升高。基于此设计的双功能纳米载体——表面偶联靶向该亚群特异性糖残基的凝集素、内载药物加沉默外排泵基因的小 RNA——使药物在庇护所内的富集度提高 17 倍,耐药复发率下降 82%。
诊断侧同样在换代:基于宿主组织单细胞转录组的"感染状态指纹",用 12 个基因的最小特征集区分无症状定植、急性感染、慢性增生与耐药复发四种临床状态,准确率约 95%。这不再是回答"有没有真菌",而是回答"真菌正处于何种致病状态"——诊断的对象从病原存在升级为病原态势,一字之差,治疗方案的选择空间完全不同。机器智能在其中扮演的角色也值得注明:好的融合算法不输出武断的二值结论,而是输出概率密度——对"某亚群是否表达某个低丰度毒力因子",它给出的答案是"概率约零点八七、置信区间若干"而非"是或否"。这种审慎不是学术客套:诊断的下一步就是用药,而概率表述恰恰是临床决策最需要的信息形态。
| 传统范式 | 状态解析范式 |
|---|---|
| 研究单元 | 菌株平均值 |
| 检测输出 | 有无与丰度 |
| 药物策略 | 广谱杀灭 |
| 诊断问题 | 是否感染 |
| 数据形态 | 清单式结论 |
| 干预目标 | 真菌物种 |
五、人机菌的三重协同
技术框架的生命力取决于组成要素的协同进化。人本智慧是方向的舵手——为何选这个启动子做报告、为何聚焦子实体做空间成像,这类判断来自数十年显微镜下的凝视,算法无法生成。机器智能是能力的倍增器——它的价值不只是算力,更是对不确定性的优雅处理:把"是否表达"的二值武断变为"概率若干"的审慎陈述。真菌本体智能则是被重新发现的主角——高维状态解析揭示的分布式决策能力,让"群体智能"从隐喻变为可测量的现象。
本章回顾
- 平均值暴政:七种转录亚群共存于一份"均一"样本,群体统计掩盖了感染的真实结构
- 状态定义:转录、蛋白、代谢、表观、形态五模态联合定义的时空向量,经跨模态对齐后语义融合
- 解耦原理:成像质谱硬编码空间坐标,微流控介电判读让细胞状态自我申报
- 重聚原理:界面拓扑图加先验权重加图卷积软分配,知识引导避免计算对齐的生物学荒谬
- 闭环验证:耐药庇护亚群的预测—证实—靶向清除,展示观测到干预的完整链路
- 诊断换代:感染状态指纹回答"处于何种状态"而非"有无真菌",准确率约 95%
技术浪潮与真菌认知增量的对应关系 ───────────────────────────────────────────── 技术 年代窗口 认知增量 ───────────────────────────────────────────── 透射电镜 1950–1970 隔膜超微 结构分类 rRNA 测序 1990–2005 界级重构、 八界方案 宏条码 2010– 暗物质真菌 (ITS) 规模显形 单细胞组学 2020– 菌丝细胞 异质性图谱 空间代谢组 2020– 化学互作 原位定位 ───────────────────────────────────────────── 规律:每一次采样分辨率的提 升,都先推翻一批"常识", 再重建一批范式
单细胞转录组解析真菌的最低配置 ───────────────────────────────────────────── 环节 方案 难点对策 ───────────────────────────────────────────── 原生质体制备 酶解细胞壁 分门别类 调酶组合 单核捕获 液滴/板式 防 RNA 降解 (低温操作) 标注参考 基因组+转录组 菌丝期先 建参考谱 数据分析 拟时序+模块共表达 稀疏矩阵 插补 ───────────────────────────────────────────── 产出示例:一节菌丝内可区分出 伸长态、分支态、应激态三类 转录程序并存
下一节从技术升到理论:当"真菌是什么"的答案取决于它所处的关系场,系统发育学的树状世界观如何让位于关系本体论。