2.1 神经信号生理学:从离子电流到头皮电压
2.1 神经信号生理学:从离子电流到头皮电压
本节摘要:脑电信号的物理本质是离子电流的细胞外表现:动作电位贡献尖锐的高频成分,突触后电流汇成缓慢的局部场电位,两者穿过多层组织衰减模糊后成为头皮脑电。本节从静息电位讲到头皮电压,解释每个环节的幅度与频率变化,并回答一个奠基性问题——为什么恰好是皮层的结构让"隔头皮听大脑"成为可能。
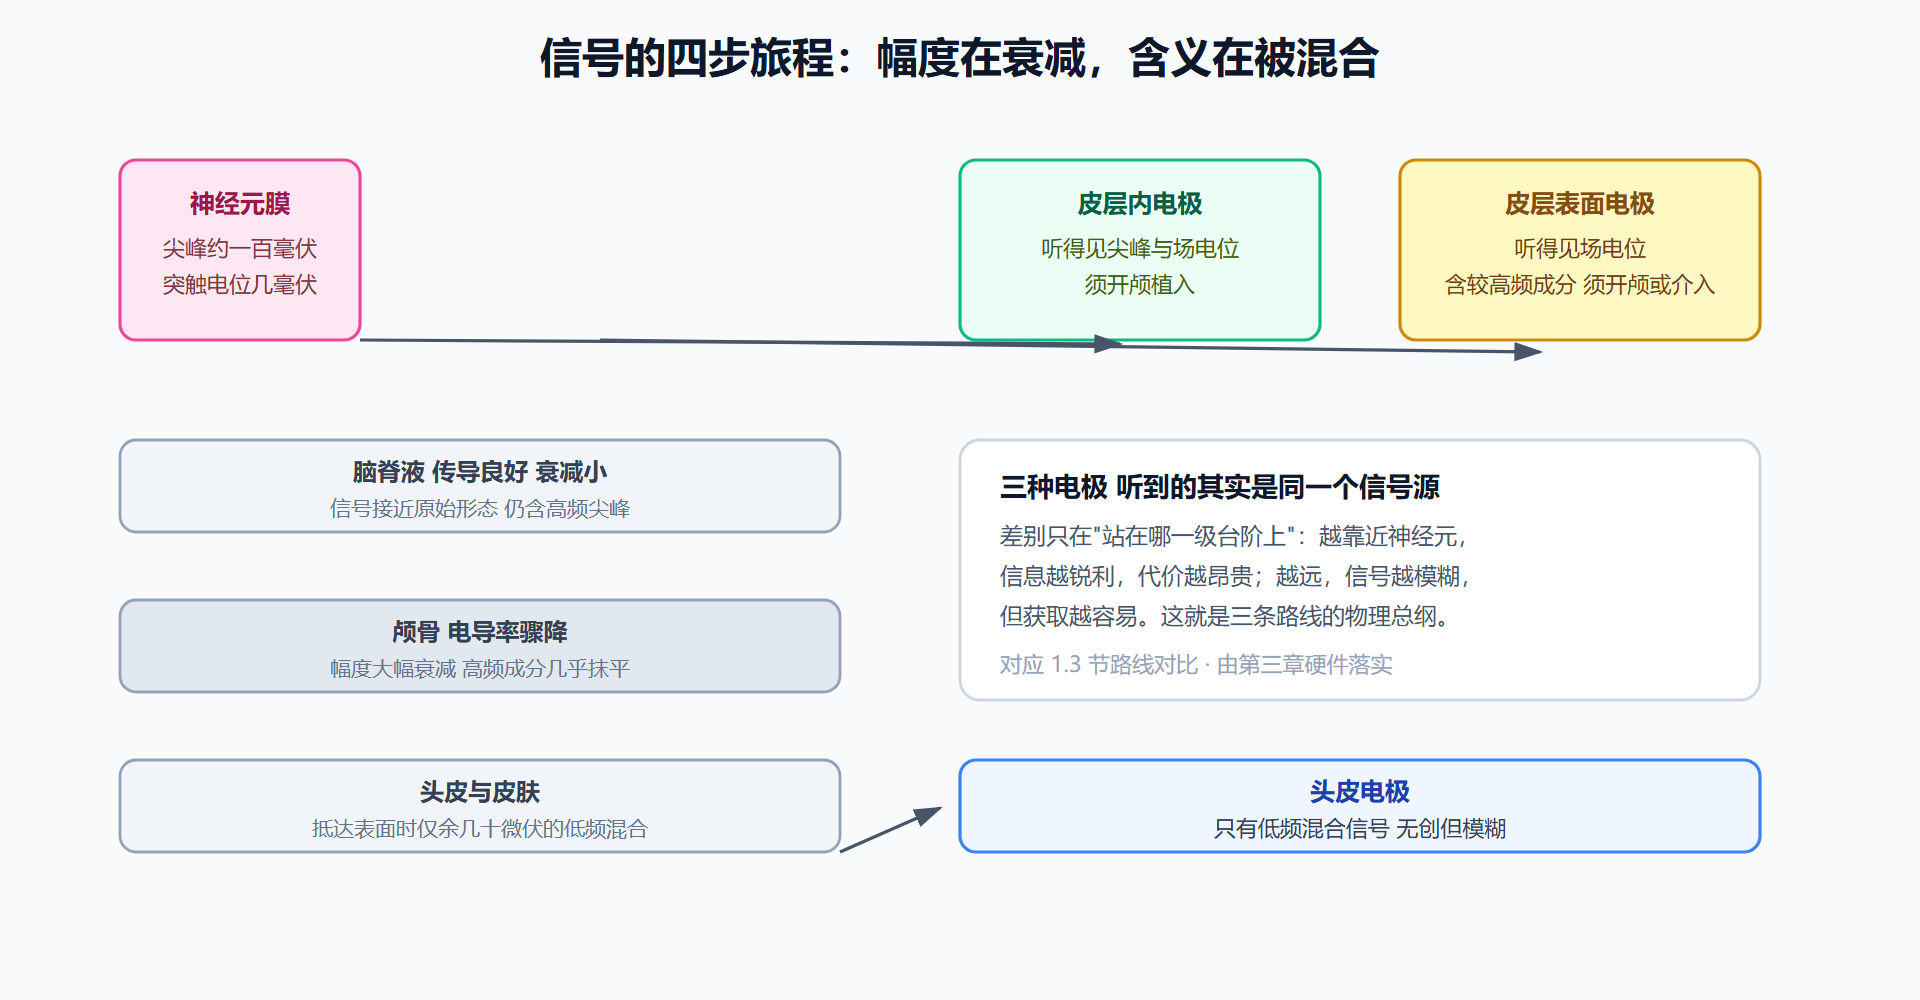
为什么隔着颅骨还能测到脑电?这个问题的答案出人意料地依赖一个解剖学上的巧合。本节末尾会回到它。先把镜头对准信号本身:一段被电极捕获的电压,从它的诞生到抵达电极,一共经历了四个物理环节——膜电位、动作电位与突触电位、细胞外场电位、体积传导。理解这四步,第三章硬件的一切参数就都有了出处。
静息电位:一切信号的背景板
神经元的细胞膜是一层约五纳米厚的脂质双分子层,它隔开了两种成分不同的液体:膜外是高钠低钾,膜内是高钾低钠。膜上持续运转的钠钾泵不断把三个钠离子送出去、两个钾离子换进来,加上钾泄漏通道让钾离子顺浓度梯度外流,膜内外最终稳定在约负七十毫伏的电位差——静息电位。这个数字本身不携带信息,它是背景板:所有神经信号都是这个电位偏离再恢复的过程。
之所以值得花一段讲它,是因为硬件工程师很快就会在另一个场合遇到它:电极放进组织(或贴在头皮)后,电极与电解质接触界面也会形成一个半电池电位,同样需要被放大器的直流偏移消除电路吃掉。生物膜与电极界面,做的是同一类电化学的事。
动作电位:毫秒级的全或无事件
当膜电位从静息值去极化到约负五十五毫伏的阈值,电压门控钠通道被触发打开,钠离子在浓度与电场双重驱动下涌入,膜电位在零点五毫秒内冲到约正三十毫伏;随后钠通道失活、钾通道打开,钾离子外流把电位拉回,甚至短暂低于静息值(超极化),再由钾通道关闭和钠钾泵修复到位。整个过程约一到两毫秒,呈全或无特性——刺激够强就发生,不够就不发生,发生就是同一个波形。这就是尖峰(spike),或称动作电位。
它为什么重要?因为它是中枢神经系统长距离传输信息的主要载体,也是侵入式脑机接口最珍视的信号:单根电极针尖附近的神经元放电序列,时间分辨率精确到毫秒,幅度可达上百微伏。全或无特性还有一个工程含义——尖峰的"信息"不在波形大小里,而在何时发生、发生多频繁里,这直接决定了 2.3 节编码问题的形式。
突触后电位与局部场电位:信号的合奏层
尖峰抵达轴突末梢后触发神经递质释放,递质跨过突触间隙结合到下一个神经元的受体上,打开离子通道,让下一个神经元的膜电位产生几毫伏、几十毫秒长的偏移——兴奋性的 EPSP 或抑制性的 IPSP。单个突触后电位微弱而短暂,但皮层有一套放大机制:成千上万个神经元的突触活动在时间上同步、在空间上汇聚时,它们的细胞外电流在组织中叠加成可测量的电位起伏——局部场电位(LFP),幅度几十到几百微伏,频率集中在几赫兹到几百赫兹的低频段。
场电位是脑机接口真正的"主力货币":ECoG 电极、硬膜外电极、头皮电极读到的都是它;皮层内电极读到的高频段(尖峰之外的部分)也属于它。理解它的一个关键在几何学:**只有当电流源具有"开放场"结构——大量神经元朝向一致、电流偶极方向对齐——叠加才不会被互相抵消。**皮层恰恰是一个精心对齐的结构:锥体细胞像蒜瓣一样整齐排列,顶树突一律指向脑表面。这就是本节开头那个问题的答案——头皮脑电之所以存在,是因为皮层碰巧是一座朝向统一的天线阵列。肝脏、视网膜内层这类细胞杂乱排列的组织,无论活动多剧烈,都产不出能隔头皮测量的电位。
图 2-1:一段信号从突触到电极的四步旅程
体积传导:让一切混在一起的物理机制
神经元是浸在导电液体里的电流源,电流在组织里四散流动,任何位置的电位都是所有电流源贡献的加权和——这就是体积传导。它带来两个对脑机接口影响深远的结果。
第一,每个电极看到的是"区域"而不是"点"。头皮电极的信号主要来自其下方几乎方厘米量级皮层的混合活动,且远处源(甚至对侧半球)也有贡献;想用两个头皮电极区分相邻两块皮层的活动,就像隔着一堵毛玻璃墙分辨两个人的口音。第四章的空间滤波算法(拉普拉斯、表面拉普拉斯、共空间模式)本质上都是在跟体积传导的模糊做斗争。
第二,信号是"读出位置"的函数。同一片皮层活动,皮层内电极记录到的尖峰幅度随距离迅速衰减——离针尖超过约五十微米就几乎听不见;ECoG 电极贴在硬脑膜下,衰减可控;头皮电极则叠加了颅骨这个最大的瓶颈。第三章选电极时反复权衡的"距离对幅度",根源都在这里。
从生理学到工程的三条推论
把本节的物理事实翻译成工程语言,得到三条贯穿全册的推论。**推论一:信号幅度决定放大器预算。**从上百微伏(尖峰)到几十微伏(头皮脑电),放大倍数、噪声底、位深的选择全部由它锚定——第三章模拟前端一节将逐项对应。**推论二:频率成分决定采样率与滤波设计。**尖峰需要数千赫兹采样才不失真,头皮脑电通常每秒五百次足够;工频干扰恰好落在脑电感兴趣的频段边缘,陷波是必修课。**推论三:混合性决定算法形态。**头皮信号天生是多源混合,解混(独立成分分析)与空间滤波是标配;皮层内信号信噪比高,解码重点转向时间动力学建模。这三条推论是第二章与后面章节之间的桥。
损耗不可逆:一个统领全章的读法
三条推论之外,还有一个统领性的读法值得在章末立起来:信号的损耗是单向的、不可逆的。从膜电位到头皮电压,每过一层都在丢失信息——幅度衰减可以用放大器补回来,频率成分变窄可以用宽带记录守住一部分,但"混合"这一步没有任何电路或算法能真正撤销:放大器能把几十微伏放大成任何幅度,却不能把混合信号拆回单个神经元;滤波能改变频率成分的比重,却不能找回从未被记录的高频。这就是为什么本节从头到尾都在强调"记录位置"——信息在哪一层被固定下来,后续所有技术就只能在那一层做文章。想要尖峰粒度就得把电极送到尖峰旁边,这是第三章侵入式路线的物理根源;只能隔头皮听合唱,就得让算法去做猜谜,这是第四章全部内容的边界条件。把"不可逆"三个字记住,后面很多设计争议都会变得容易理解:它们本质上都是关于"在哪一层接受信息损耗"的分歧。
本节要点回顾
- 静息电位约负七十毫伏,是钠钾泵与钾泄漏共同维持的背景,电极的半电池电位是其工程镜像;
- 动作电位全或无、持续约一毫秒、信息载于发生时刻与频率,是侵入式路线的核心货币;
- 局部场电位来自同步突触电流的叠加,皮层锥体细胞的整齐排列是其可测的前提;
- 体积传导造成空间混合,距离与层级决定衰减量,三条技术路线由此分化;
- 生理事实直接翻译为硬件与算法约束:幅度定放大、频率定采样、混合定算法。
信号源的性质清楚了,下一个问题是坐标:这么多脑区,哪些与接口有关?电极该往哪放?下一节铺开大脑的"接口地图"。