3.3 转基因动物如何固化实验平台
3.3 转基因动物如何固化实验平台
本节摘要:当同一条环路要被多个实验室重复,临时病毒配方不够用。转基因动物把视蛋白或重组酶写进品系,使实验从一次性注射变成可引种、可杂交、可对照的基础设施。平台化提高了可重复性,也带来插入位点效应、遗传背景漂移、以及“品系名称等于细胞类型”的懒惰。历史地看,小鼠是光遗传学从技巧变成共同体方法的关键载体。
本节导航
阅读完本节,你应当能够:
- 区分报告系、驱动系、效应器系三类转基因在平台中的角色
- 说明为何许多实验室选择“Cre 系加病毒翻转盒”而不是全身表达视蛋白
- 解释遗传背景和繁育策略如何悄悄改写光刺激效果
- 指出品系鉴定失败时,光学和视蛋白都会成为替罪羊
- 判断一个新问题该引种现成系还是值得再做局部病毒
一、从手艺配方到可以邮寄的基因型
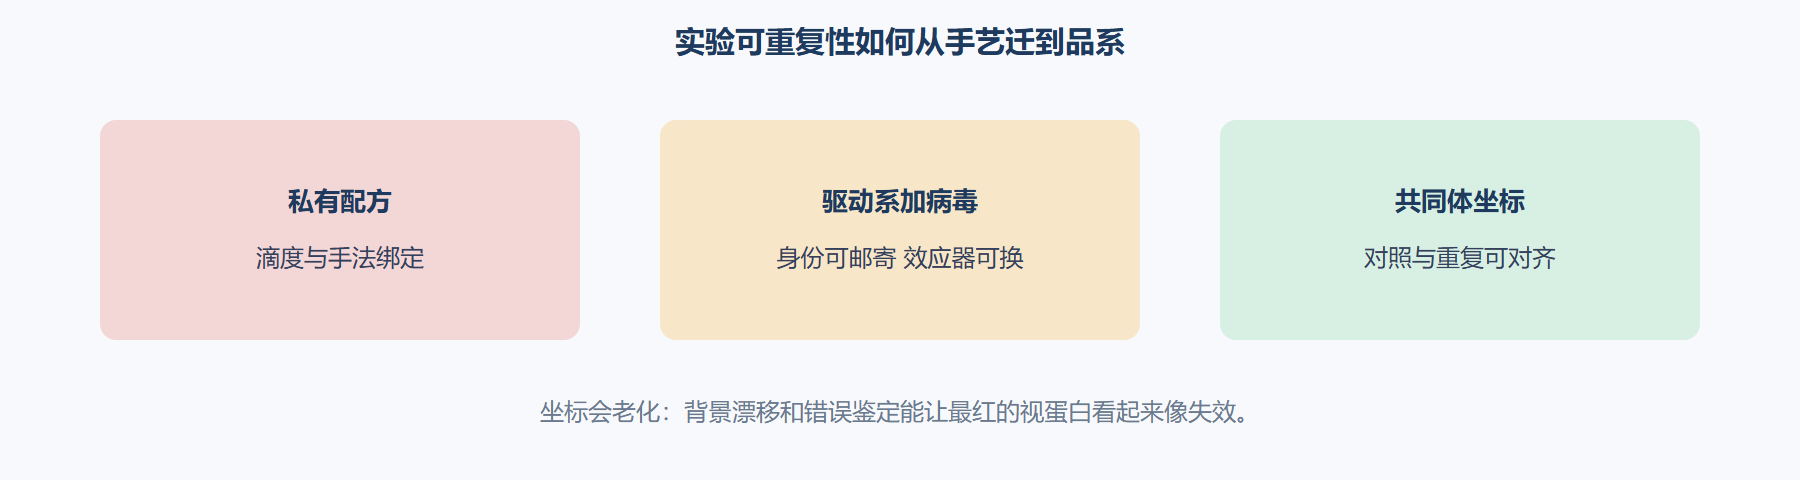
早期光遗传实验的可重复性,绑在某个人的注射手感和某一批病毒滴度上。换实验室,结果就漂。转基因路线把关键身份或关键效应器做成可邮寄的等位基因。报告系让细胞类型可见,驱动系提供重组酶,效应器系直接带着视蛋白。三者可以杂交:驱动系决定谁有酶,效应器系决定酶出现后生产什么开关。共同体开始用品系编号对话,而不是用“我们自己做的那管 AAV”。
并非所有平台都把视蛋白写进小鼠基因组。更流行的折中是:小鼠只提供 Cre 身份,视蛋白仍由病毒翻转盒临时提供。好处是同一只驱动系可以今天接通道、明天接阴离子通道,不必为每个效应器维持一个品系。坏处是病毒注射的空间误差回来了。平台化从来不是把一切都做成转基因,而是把变化最慢、最需要共同体对齐的那一层做成转基因——通常是细胞身份。
果蝇和斑马鱼走得更早、更彻底,因为转基因周期短、全身光学可及。哺乳动物小鼠成为主战场,是因为环路问题和疾病模型主要写在小鼠身上。大鼠、非人灵长类的转基因与病毒组合更贵、更慢,所以灵长类光遗传长期停在局部病毒加粗身份,精度叙事不能直接从小鼠抄过去。物种差异是平台史的一部分,不是脚注。
二、插入位点、背景与繁育:平台自己会老化
转基因不是中性容器。随机插入可能打断内源基因,或把视蛋白放到高表达或低表达的染色质环境。位点特异性敲入改善了这一点,却仍受附近增强子影响。驱动系的“特异性”可能来自插入位置的运气,换到另一种构建策略后地图就变。把十年前的品系论文当成永恒真值,会在新遗传背景上栽跟头。
遗传背景同样改写兴奋性、免疫和病毒嗜性。同一 Cre 在一种近交系上干净,在另一种上泄漏。繁育若没有定期回交,突变会堆积。光刺激效果变弱时,人们先怀疑光纤和视蛋白,最后才做基因型鉴定和背景检查。平台化的讽刺在于:它降低了入门门槛,也让维护责任变得像基础设施——不显眼,但停工会让整条街停电。
对照动物必须进入平台设计。没有重组酶的同窝对照、没有视蛋白的光照对照、只有荧光没有离子通道的对照,缺一就会把品系差异写成环路发现。转基因动物让对照在基因型上可定义,这是它相对纯病毒实验的重要优点。优点只有在繁育计划里真的留出对照等位基因时才存在。
| 平台组件 | 固化的是什么 | 老化方式 | 维护动作 |
|---|---|---|---|
| 报告系 | 谁被点名 | 沉默、镶嵌、背景漂移 | 定期成像抽查 |
| 驱动系 | 酶在谁那里 | 发育异位被遗忘 | 新脑区重新鉴定 |
| 效应器系 | 哪一种开关 | 表达下调、行为表型 | 功能电生理抽检 |
| 杂交策略 | 逻辑门 | 基因型鉴定错误 | 双引物确认 |
| 病毒叠加 | 可替换效应器 | 批次与注射位点 | 滴度与组织学 |
⚠️ 常见坑:只给实验组做基因型鉴定,对照笼位“看起来一样”就上机。错配一只无 Cre 动物,会把无效应写成环路阴性。
💡 关键直觉:品系是基础设施,基础设施需要巡检。光学对齐每天做,基因型巡检不该每年才做一次。
三、何时不该转基因,何时必须转基因
若问题是探索性的——还不知道该不该把视蛋白放进这群细胞——局部病毒更快。养一套新系要数月到一年,探索期用转基因是用基础设施的成本去做假设检验。若问题已经收敛到一条被十篇论文追问的通路,引种驱动系能让你的对照与他人对齐,审稿人也可以要求同一品系上的重复。平台的价值是共同体坐标,不是个人方便。
伦理与数量也改写选择。全身表达视蛋白的动物,在饲养阶段就可能对光照敏感,红光照明的动物房不再是小事。驱动系加局部病毒把表达限制在注射云里,饲养更省心。临床方向的大动物几乎只能走局部病毒,转基因平台帮不上直接的忙,但小鼠平台仍承担机制验证。把小鼠全身表达的安全性外推到患者,又是一次越级。
choose_platform: if hypothesis still wandering: local virus on existing driver if available if pathway is community standard: import driver line, keep opsin in FLEX virus if opsin itself is the object of study: consider knock-in effector line for stable dose always: budget cagemate controls in the breeding plan
图 平台把私有手艺变成可搬运坐标
四、平台化之后,问题开始从“能不能做”变成“该不该再做一个系”
光遗传学进入系统期的标志之一,就是新论文越来越少展示“我们发明了如何表达”,越来越多默认读者手里已经有驱动系。方法学创新转到衣壳、效应器和光学。对读者,这意味着:看懂品系逻辑,比记住一个新视蛋白名字更常成为读论文的钥匙。对写作者,意味着材料方法里必须写清遗传背景、鉴定引物和杂交代数,否则平台坐标是假的。
第 4 章将假定这套身份平台已经存在,镜头转到光如何到达这些被点名的细胞。没有光路的演化,转基因只是让错误的光斑更干净地打在正确的细胞群上——干净地同步它们,也干净地制造人为的集体放电。
五、平台化如何改变竞争与合作的形状
一旦驱动系成为共同体坐标,竞争从“谁能表达”转向“谁在同一身份上问出更锋利的窗口问题”。这是科学上的进步,也带来新的惰性:大家锁死在同一批可能泄漏的品系上,错误会被系统复制。平台的维护于是具有公共品性质。不做巡检的实验室搭免费车,做巡检的实验室付成本。领域若没有把阴性鉴定写成可发表贡献,巡检就会萎缩。
合作形态也变了。病毒核心设施、小鼠库、光学车间成为隐形作者。方法学论文的引用应当指向这些基础设施,而不是只指向视蛋白原初克隆。读者若只记住通道名称,会误判自己实验室缺的是分子而不是品系鉴定流程。平台史提醒:可重复性买的是坐标,坐标要保养。
大动物和人类走不了小鼠平台时,局部病毒加粗身份会长期存在。不要用小鼠杂交的优雅去羞辱灵长类实验的粗糙。粗糙可能是伦理和世代时间下的诚实选择。平台化不是道德等级,是物种约束下的最优基础设施。把这一句读进第 7.2 节,临床期望会冷静一截。
繁育计划里把对照等位基因当成必须交付的产物,而不是可砍的预算。缺对照的平台是残缺基础设施,和缺主时钟的光学台同一类病。第 5 章会从协议侧再收一次债;债源有时在动物房,不在脉冲发生器。
平台惰性与公共品
为什么错误品系会被系统复制?
共同体锁死在同一批驱动系上,泄漏会随引用传播。巡检是公共品,不做的人搭车。领域若不允许阴性鉴定发表,巡检萎缩,坐标变错地图。
大动物实验粗糙是不是落后?
不一定。世代时间和伦理约束下,局部病毒加粗身份可能是诚实选择。用小鼠杂交的优雅羞辱灵长类,是把平台当成道德等级。
对照等位基因是必须交付的产物,不是可砍预算。缺对照的平台和缺主时钟的光学台是同一类病。遗传背景改写兴奋性、免疫和嗜性,光变弱时不要只怀疑光纤。插入位点效应让十年前的特异性论文不能当永恒真值。探索用病毒,坐标用品系。用基础设施成本去做漫游假设,会把一年时间花在还不知道该不该问的问题上。饲养阶段的全身光敏,会让红光动物房从细节变成伦理。
可邮寄的基因型降低了入门门槛,也把维护责任变成公共品。对照笼位、回交代数、鉴定引物,应和光纤直径一起出现在方法里。缺这些字段的平台坐标是假的。假坐标上重复出来的阳性,只是把同一种泄漏复制得更整齐。整齐不是可重复,整齐是系统误差。
核心回顾
- 平台固化慢变量:通常是细胞身份,而不是每一种视蛋白。
- 主流折中:Cre 系加病毒翻转盒,兼顾可替换效应器与共同体身份。
- 物种不可平移:小鼠平台的精度叙事不能直接抄到灵长类。
- 插入位点与背景会老化:品系需要巡检,不能终身信任名称。
- 对照必须写进繁育:同窝无酶、无效应器、仅光照。
- 探索用病毒,坐标用品系:用基础设施成本去做漫游假设不划算。
- 饲养伦理随表达范围变化:全身光敏与局部注射的动物房要求不同。
下一章进入光路:光源、光纤、微型发光二极管和全息寻址如何被同一张穿透与加热账单驱动着换代。