4.3 从整区照明到全息单细胞寻址
4.3 从整区照明到全息单细胞寻址
本节摘要:光纤把同一身份的细胞一齐按亮,适合细胞类型水平的因果,不适合集合编码问题。空间光调制器、数字微镜和双光子全息把光斑拆成可独立开关的点,使“名单上的那些细胞”成为可操作对象。寻址精度受表达密度、散射、运动和校准限制;它解决混杂,不自动解决加热和视蛋白动力学。
你能学到什么
阅读完本节,你应当能够:
- 说明整区照明对应哪一类科学问题,单细胞寻址对应哪一类
- 对比单光子图案照明与双光子全息在深度和串扰上的差别
- 解释为何细胞检测、变换校准和运动追踪成为光学闭环的一部分
- 指出散射如何把漂亮的全息点重新变成雾
- 避免把培养皿或浅层皮层的寻址成功直接写成深部核团能力
一、整区照明在问什么,以及它何时开始不够
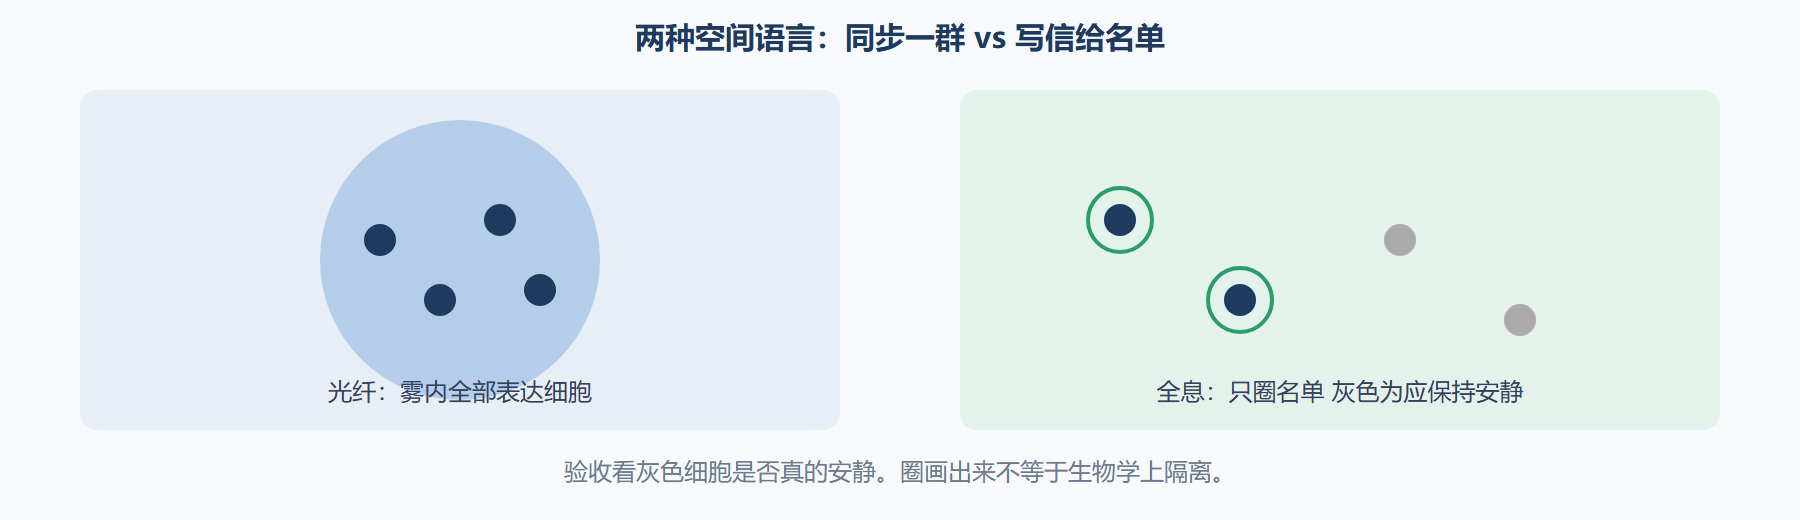
细胞类型水平的问题,例如“帕瓦尔布明中间神经元的快速放电是否必要于伽马”,光纤往往够用:你本就想同步这一类。集合编码问题则相反:同一类细胞里,只有稀疏的那几十个构成这次记忆痕迹或这次朝向选择。整区照明会把未参与编码的邻居一起拉进放电,效应变成“强迫这一类细胞集体说话”,而不是“重放那次真实的名单”。光遗传学在这里碰到自己的成功带来的墙:身份问题解决后,名单问题露出水面。
空间光调制器和数字微镜把一束光切成图案。单光子图案在浅层有效,散射会让图案在深度上迅速串层。双光子激发把非线性吸收限制在焦点附近,轴向更干净,适合对分散的胞体分别沉积能量。Emiliani 等团队把全息光遗传做成可讨论的实验路线:先成像找到细胞,再按名单写回。读与写第一次在同一套光学里闭环。
二、寻址的真实误差:不是像素数,是散射加表达
宣传图上的光斑可以画成一个个圆点。组织里,每个点都有晕。晕会点着邻居,尤其当视蛋白灵敏度高、表达密。双光子减少轴向串层,却对运动敏感:细胞离开焦点,剂量骤降或打到树突。头部固定的小鼠在两光子显微镜下可以做;自由行为的深部核团至今不是同一回事。把浅层视觉皮层的单细胞写回,翻译成杏仁核自由行为,是器件层级的越级。
校准是隐形劳动力。显微镜坐标、调制器坐标、动物坐标必须对齐,而且要在实验中保持。温度变化、液体界面、盖玻片倾斜都会让名单打偏。于是空间光遗传不再只是“一种光源”,它是一套含图像识别的系统。系统失败时,你得到的是错误名单上的漂亮因果故事。对照必须包括打乱名单、打邻居、打同等能量的空白处。
| 照明模式 | 适合的问题 | 深度与串扰 | 行为条件 |
|---|---|---|---|
| 光纤整区 | 细胞类型因果 | 雾状体积 | 可自由行为 |
| 单光子图案 | 浅层图案、稀疏抑制 | 深度串层快 | 多头固定 |
| 双光子全息 | 名单写回、集合编码 | 焦点限制,怕动 | 头固定成像 |
| 多光纤或多发光二极管 | 多核团粗寻址 | 每个位点仍是雾 | 可趋向自由行为 |
⚠️ 常见坑:用全息系统的像素分辨率冒充生物学分辨率。生物学分辨率是“未被点名的邻居有没有放电”,只能电生理或成像验收,不能看设备手册。
💡 关键直觉:单细胞光遗传的成功标准是阴性名单保持安静,不是阳性名单被点亮——后者光纤也能做到,只要表达够。
三、能量如何在多焦点上分摊
全息把一束光分成 N 个点,每个点的功率大约被切开。要让每个胞体过阈,总功率上升,热和光毒性的账单按点数加码。高灵敏视蛋白在这里再次双刃:帮助每个点过阈,也帮助晕去点邻居。实验设计必须限制同时寻址的数量,或接受较低的时间占空比。无限名单是计算上的,不是热学上的。
时间复用可以轮流点亮子集,用高速扫描换同时性。若神经积分时间短于扫描周期,名单内部会失去同步,编码实验的前提被自己的硬件拆掉。选择同时全息还是扫描,取决于你问的是同步集合还是可分开的细胞贡献。硬件时钟必须进入科学假设。
addressing_budget: detect cells and build positive and negative lists allocate power so each positive cell reaches threshold image or record negatives during stimulation if negatives fire: shrink spots, lower sensitivity, or reduce concurrent targets scramble list as causal control
图 整区雾与名单点
四、寻址把光遗传推进系统期,也把实验变成光学工程
一旦名单可写,论文开始讨论能否重放一次自然发放的集合。这是编码问题的硬核,也是校准、运动、热、视蛋白关闭时间共同上场的舞台。缺任何一项,重放都可能是“另一种同步模式”,不是原来的模式。第 5 章会把时间戳对准;没有对准,名单写回只是空间上的精确,时间上仍可能错拍。
对多数转化和核团水平问题,光纤仍是诚实的工具。全息不是道德更高的下一代,它是为名单问题准备的另一套语言。选错语言,精度会浪费在无关的轴上。
五、写回实验如何滑向另一种同步:校准漂移的集体误差
名单写回依赖变换矩阵。实验进行中动物微动、温度变化、盖玻片浸润改变折射率,矩阵过时。过时后,所有“单细胞”点都按同一错误偏移,看起来仍像精致图案,生物学上却打在邻居树突上。集体校准误差比随机抖动更危险,因为它制造可重复的错误因果:每次都点到同一群错误细胞,论文会非常干净。
因此写回实验的过程质控应包括:定期重做标记细胞的小位移测试、穿插打乱名单、穿插打空白。干净得可疑的结果,优先怀疑校准锁死在错误最小值。光学工程的失败可以长得像优美神经科学。第 5 章的对照哲学在显微镜上同样适用。
计算负担与实验时长也改写科学问题。要成像、分割、生成全息图、验证,一晚可能只完成少量试次。于是研究者选择最亮、最好分割的细胞,样本偏向大胞体。集合编码结论可能只适用于容易成像的那一亚群。寻址技术在提高空间精度的同时,引入新的选择偏差。偏差必须写进讨论,否则精度是假的代表性。
自由行为全息仍受重量、视野和运动限制。把这一句当作物理现状而不是道德失败,可以避免用未来显微镜羞辱今天的光纤实验。光纤在细胞类型问题上仍然诚实。寻址是为名单问题准备的语言。两种语言共存,才是系统期该有的生态,而不是新语言消灭旧语言。
树突与轴突的光敏感比胞体更难隔离。即使胞体被点名,树突上的晕仍可能注入电流。单细胞声明在形态复杂的神经元上要降级为“以该细胞为中心的局部体积”。降级不是认输,是防止第 6.1 节的记忆写回被理解成逐细胞录像。形态学必须进入寻址的误差模型。
干净得可疑的写回
为什么可重复的错误名单比随机抖动更危险?
校准锁死在错误最小值时,每次都点到同一群邻居,论文会非常干净。过程质控要定期小位移测试、打乱名单、打空白。
最亮最好分割的细胞会怎样偏置结论?
试次少时研究者偏向大胞体,集合编码可能只适用于容易成像的亚群。空间精度上升同时引入选择偏差,偏差必须写进讨论。
单细胞声明在锥体细胞上要不要降级?
往往要降级为以该细胞为中心的局部体积。树突晕仍可能注入电流。形态学属于寻址误差模型,不是美图。
时间复用可能拆掉同步假设,硬件时钟属于科学问题。点数分摊功率,名单长度受热限制。自由行为全息仍受重量和运动限制,这是现状不是道德失败。光纤在细胞类型问题上仍然诚实。两种空间语言共存才是系统期生态。生物学分辨率看阴性名单是否安静,设备像素不是隔离证明。阳性名单被点亮,光纤也能做到,只要表达够。寻址的伦理在阴性一侧。
名单语言的伦理在阴性细胞保持安静,不在阳性细胞被点亮。点亮很容易,隔离很难。校准漂移会让隔离看起来很成功,因为错误可以很稳定。稳定的错误最像科学。所以写回实验要把打乱名单和打空白当成和主结果同等重要的图,而不是补充材料里可有可无的一行。补充材料里藏对照,等于承认对照见不得人。
空间语言一旦切换到名单,科学问题也必须切换。仍用细胞类型句型去解释名单实验,会把隔离失败写成类型成功。反过来,用名单句型去要求光纤实验,会羞辱一种仍然诚实的工具。两种语言的词典要分开装订。装订之后,阴性名单、打乱名单和空白体积,应成为写回论文的主图构件。主图只展示被点亮的圆圈,等于只展示设备手册已经保证的那一半。另一半是安静。安静才是寻址配得上单细胞这个词的理由。
要点串联
- 整区照明匹配细胞类型因果:不够匹配稀疏名单因果。
- 单光子图案怕深度串层:双光子焦点更干净、更怕运动。
- 读与写闭环:先成像再写回,系统失败会产生错误名单故事。
- 生物学分辨率看阴性名单:设备像素不是细胞隔离。
- 点数分摊功率:名单长度受热限制。
- 时间复用可能拆掉同步假设:时钟属于科学问题。
- 光纤并未过时:问题层级决定器件,而不是年代决定器件。
下一章把光脉冲放进实验协议:如何与电生理、成像和行为对齐,以及开环闪光如何演变成闭环因果。