4.2 力学信号转导(Mechanotransduction)
4.2 力学信号转导(Mechanotransduction)
本节摘要:力学信号转导回答"力怎么变成生物化学":从整合素的黏附斑到细胞骨架的力传递,从 LINC 复合体把骨架接到细胞核、到 YAP/TAZ 转录因子按基质刚度入核。本节拆解三条传导通道(黏附介导、通道蛋白介导、核直接介导),并以干细胞分化与内皮响应两个范例收束。
学习目标
阅读完本节,你应当能够:
- 说出黏附斑作为"力传感器加信号中枢"的双重角色
- 解释 YAP/TAZ 入核与基质刚度的对应关系
- 描述 LINC 复合体把力直接送进细胞核的通道
- 用力学转导解释干细胞软硬分化与内皮的流响应
一、黏附斑:力传感器兼信号中枢
细胞通过整合素家族受体抓住基质,聚集成的黏附斑是"双重身份"的结构:力学上它是基质与骨架之间的传力桥(张力经桥联蛋白传给肌动蛋白束形成应力纤维),生化上它是一个信号处理器——压制蛋白(FAK、Src、paxillin)在受力构象变化时启动级联磷酸化。受力的直接证据来自荧光张力传感器(把张力模块嵌进桥联蛋白,受力会改变其荧光共振能量转移),测得的黏附力在数 nN 量级。信号输出两条主路:促增殖迁移的 FAK-ERK 路与刚度感知的 Rho-ROCK 路(RhoA 活性随基质刚度上升,驱动应力纤维与张力)。理解了黏附斑,就理解了为什么细胞外基质的刚度不是背景参数而是调控指令——它通过这条通道直接书写基因表达。
二、YAP/TAZ:刚度写入转录的程序
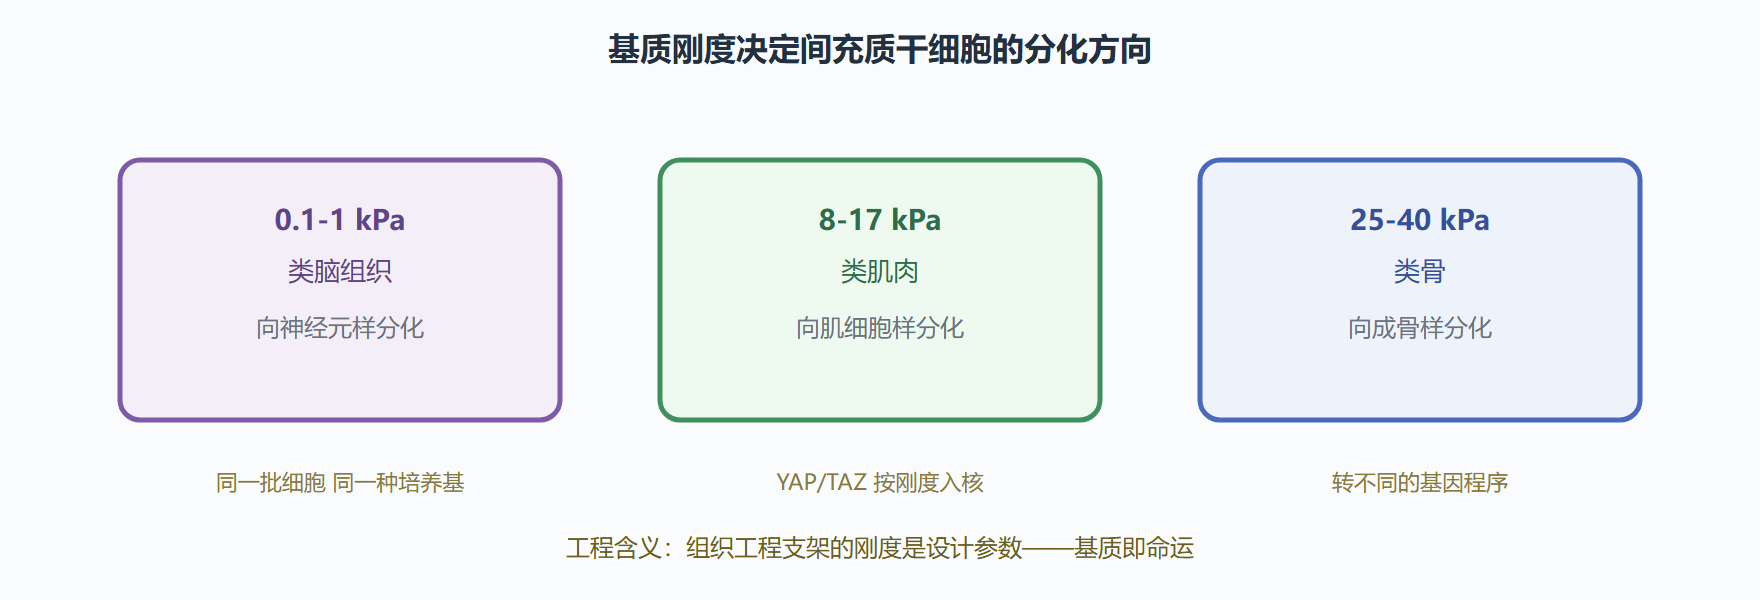
YAP/TAZ 是力学信号通往细胞核的总开关。它们的行为随基质刚度切换:硬基质上脱磷酸并进入细胞核,激活与增殖、分化相关的基因程序;软基质上被磷酸化滞留在胞质随后降解。这个开关的生物学后果在间充质干细胞上最戏剧化:同一批干细胞种在刚度梯度胶上,3 kPa 区域向神经元样分化、10 kPa 区域向肌肉样、30 kPa 以上向骨样——"基质即命运"的表述由此而来。核孔的尺寸也受力学调控(拉伸让核孔扩张允许大分子通过),机械力甚至可以直接改变染色质物理状态(核内张力影响染色质可及性)——力到基因的距离比传统信号通路想象的近得多。这一发现的转化接口是类器官与组织工程:基质刚度的设计成为控制干细胞产品的手段,而不是被动的培养条件。
三、三条通道与两个范例
整合总图上的三条传导通道。通道一,黏附介导:如上,从外到内经黏附斑与骨架。通道二,通道蛋白介导:压电蛋白(Piezo1/2)等机械门控离子通道直接受力开孔,钙内流秒级启动下游——红细胞过窄孔、内皮受切应力都走这条路,Piezo 机制因此获 2021 诺贝尔奖。通道三,核直接介导:LINC 复合体(太阳蛋白家族桥接骨架与核膜)把骨架张力直送核内,影响核形、染色质与转录。两个范例收束:干细胞分化(软硬决定命运,通道一加二协同)与内皮响应(切应力使内皮沿流向排列并分泌 NO 保护血管,紊乱流则促炎——通道一为主)。范例的共同启示:同一个力学参数(刚度或切应力)在不同细胞类型上经由不同通道解读出不同程序——力是通用的语言,响应是细胞特异的方言。
本节要点回顾
- 黏附斑双身份:传力桥加信号处理器,nN 级受力启动 FAK 与 Rho 级联。
- YAP/TAZ 开关:刚度决定转录因子入核与否,基质即命运的分子基础。
- 三条通道:黏附介导、离子通道(Piezo)、LINC 核直通——力到基因的近路比想象多。
- 范例对照:干细胞分化读刚度、内皮细胞读流态,力是通用语言响应是方言。
图:干细胞命运的刚度地图
力学信号转导的三条通道对照
| 通道 | 传感器 | 响应速度 | 代表现象 |
|---|---|---|---|
| 黏附-骨架 | 整合素黏附斑 | 秒到小时 | 应力纤维、YAP 入核 |
| 离子通道 | Piezo1/2 等 | 毫秒 | 钙内流、触觉与血压感受 |
| 核直通 | LINC 复合体 | 秒到分 | 核形变、染色质可及性 |
三条通道不是互斥而是协同:同样的基质刚度变化,黏附斑负责长期基因程序、离子通道负责快速钙信号、LINC 负责把力直接送到基因组物理层面。任何一条通道的缺失都会让细胞的力学感知出现盲区——这也是体外实验与体内行为差异的来源之一。
力学转导与疾病的三条连线
力学转导的研究正在给一批疾病提供机制解释,三条连线值得记住。连线一,肝病纤维化:肝星形细胞在基质变硬后被激活(硬化的肝越硬越激活),是一个正反馈的力学回路——YAP 通路是干预研究的热点靶点。连线二,动脉粥样硬化:第 3 章讲过低切应力的选址效应,其分子实现正是本章的内皮通道(低切扰乱流使内皮促炎、通透性增加)。连线三,癌症转移的器官倾向性:转移灶的"器官偏好"(乳腺瘤爱去骨、肺、肝)部分由基质刚度导航——转移细胞偏爱刚度与来源组织相近或能提供迁移通道的环境。三条连线的共同句式是:异常的力学环境通过转导通路改写细胞程序,成为疾病的发生或加速器。这句句式的反向使用(纠正力学环境来治疗)就是力学疗法的概念基础——从牵张成骨到基质刚度调节的水凝胶药物递送,都算这个家族的成员。
从本章到临床的一个概念练习
做一个把转导概念翻译成临床语言的练习。背景陈述:长期卧床患者的肌肉萎缩既有"不用则废"的代谢因素,也有力学因素。请用转导语言解释力学因素:卧床移除了肌肉的常规机械负荷(重力与收缩张力),肌纤维的力学感知通路(黏附斑与骨架张力)长期静默,YAP 出核、蛋白质合成程序下调、降解程序上调——萎缩是力学信号撤除后的程序性响应,不只是"能量省着用"。由此推临床对策:被动牵张与电刺激之所以有效,是因为它们在不自主收缩的条件下人为提供了力学信号输入——转导通路不区分力的来源,只认力本身。这个练习展示了转导知识的用法:把一个临床现象拆成"少了哪个力学输入、哪条通道静默、程序如何改变",干预点自然浮现。练习做完,本章的学习目标就完成了闭环。
YAP/TAZ 通路的实验验证层次
验证"某现象走 YAP 通路"有三层证据标准,读文献与设计实验都按这个阶梯走。第一层,定位证据:免疫荧光看 YAP 的核质分布随力学条件翻转(硬基质核内多、软基质胞质多)——必要但不充分(相关性)。第二层,因果证据:药理抑制(如 YAP-TEAD 相互作用抑制剂)或基因敲减后,力学依赖的表型(分化、增殖)消失——因果性建立。第三层,rescue 证据:把组成性激活的 YAP 突变体引入软基质细胞,若硬基质表型在软基质上重现——通路的充分性确认。三层齐备的论文才有资格说"通过 YAP 介导"。这个阶梯的通用价值超出 YAP 本身:任何信号通路研究(力学或化学)都用同一套"位置-因果-充分"的证据升级逻辑,掌握了它,你就掌握了读细胞信号类文献时判断结论强度的标尺——这也是力学转导这一节能给非力学背景读者的最大礼物:一套可迁移的证据判读框架。