1.2 生物学基础回顾
1.2 生物学基础回顾:神经元作为一套电学装置
上一节定了学科坐标,本节认对象。目标不是罗列解剖名词,而是把神经元看成一台分工会明确的电学装置:哪些部分接收信号、哪些部分整合、哪些部分长距离传输、哪些部分把信号交给下一个细胞。建立这张"结构—职能"对照表后,后文所有模型方程里的每个变量都能指认出生物实体。
一张图认全神经元
图:神经元结构与电学职能分工
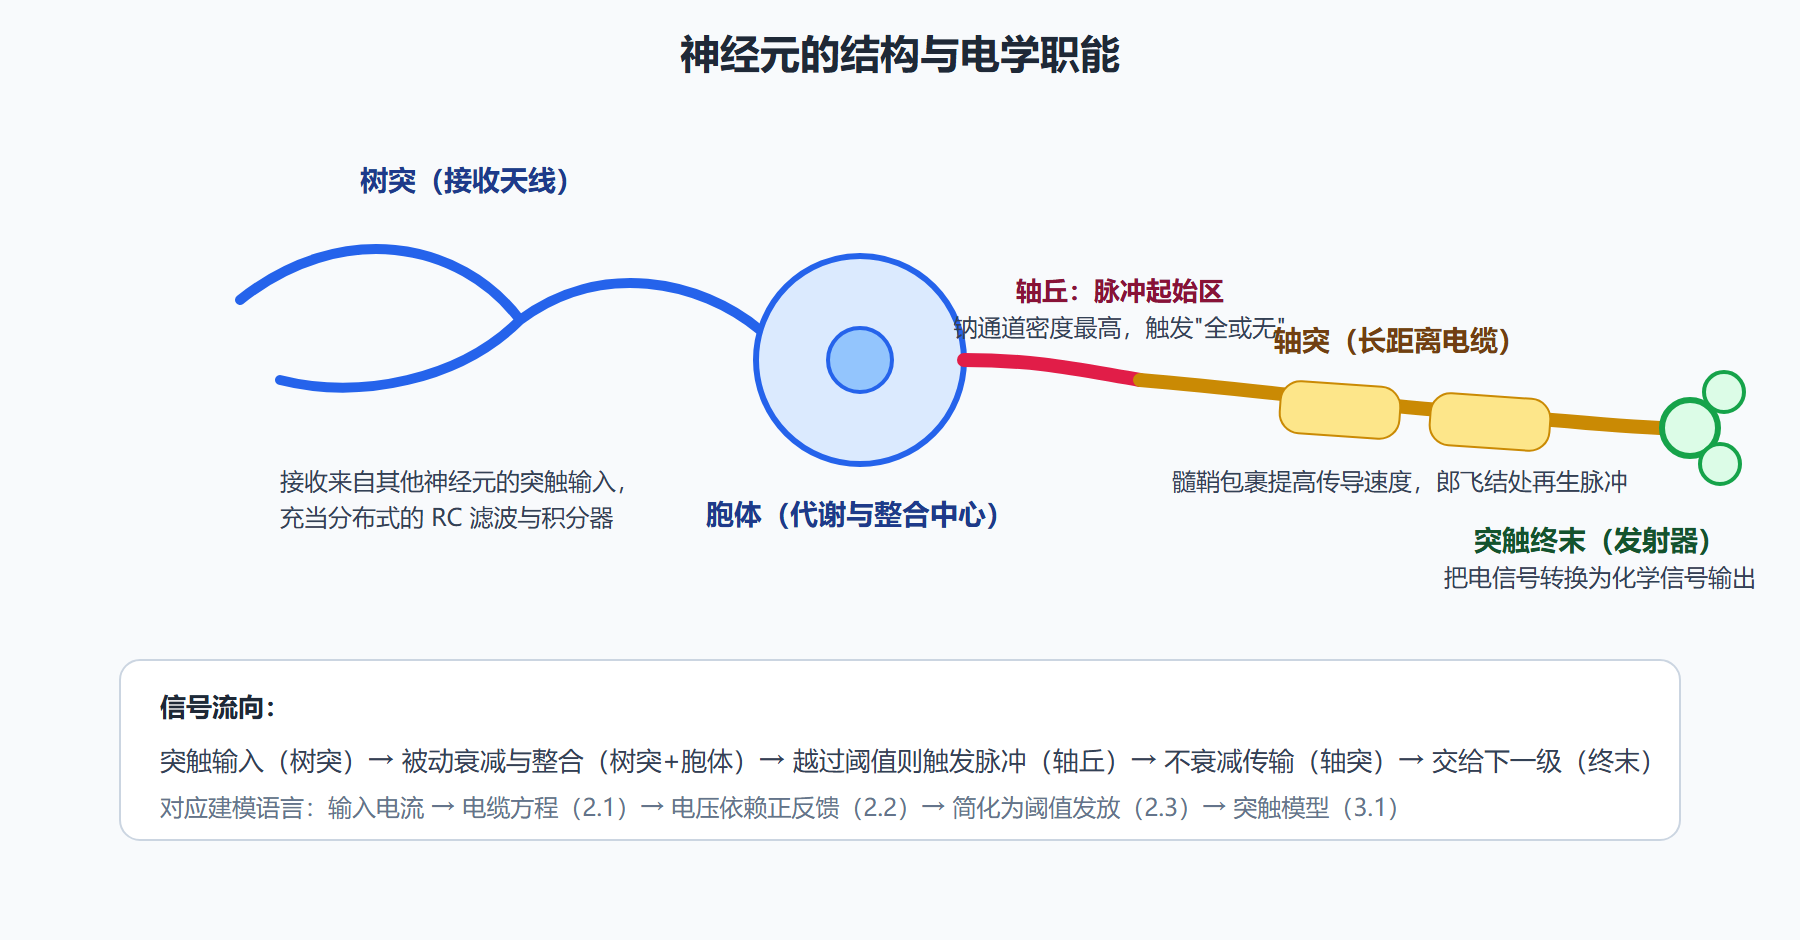
四个部件,四种职能。树突是接收与整合端:来自几千个突触的电流在这里叠加、衰减、滤波。胞体维持细胞的代谢与基因表达,同时参与信号整合。轴丘(axon initial segment)是决策端:它那里的电压门控钠通道密度远高于树突与胞体,全细胞的膜电位一旦在此越过阈值,脉冲就从这里爆发。轴突是传输端,突触终末是输出端。建模时我们反复要回答的问题就是:这个环节可以压缩成什么元件?
尺度感:建立几个数
对建模者来说,几个数量级比一张解剖图更常用。人脑约有数百亿神经元,皮层每个神经元平均接受数千到上万个突触输入;神经元胞体直径多在 10 至 50 微米,轴突可从不到 1 微米长到半米(如坐骨神经纤维);脉冲持续约 1 至 2 毫秒,幅度约 100 mV(从 -65 mV 升到 +40 mV 附近);静息电位在 -40 到 -90 mV 之间,皮层锥体细胞典型值 -65 mV。这些数字先记下,1.3 节会解释它们从哪里来。
传导速度差异巨大:无髓鞘细轴突只有约 0.5 至 2 米每秒,有髓鞘粗纤维可达 80 至 120 米每秒。这解释了为什么长距离通路几乎都用髓鞘——也解释了多发性硬化脱髓鞘后信号为何崩溃。建模上,有髓轴突常用"跳跃传导"处理,无髓轴突则老老实实解电缆方程(第 2.1 节)。
胶质细胞:不是背景板
神经元只占脑细胞的约一半,另一半是胶质细胞。星形胶质细胞调节胞外离子浓度与神经递质清除,直接参与维持 1.3 节将讲到的离子梯度;少突胶质细胞形成中枢神经的髓鞘;小胶质细胞承担免疫职能。传统观点把它们当后勤,近年的证据显示星形胶质细胞参与调节突触传递,即所谓三重突触(tripartite synapse)。本册的模型不显式包含胶质细胞,但要记住:模型里的胞外离子浓度恒定这个假设,其实是胶质细胞在背后撑着的。
突触:把细胞连成系统
突触分两类。化学突触占绝对多数:突触前终末的动作电位触发钙内流,囊泡释放神经递质,递质扩散过约 20 纳米的突触间隙,与突触后膜上的受体结合,打开离子通道,产生局部的突触电流。它是有方向的、可塑的——第 3 章的主角。电突触通过缝隙连接直接让电流流过,双向、极快、几乎不可塑,多见于需要严格同步的环路(如某些脑干核团)。
化学突触的兴奋或抑制,取决于突触后受体通道允许什么离子通过:谷氨酸能突触打开阳离子通道产生去极化(兴奋),GABA 能突触主要让氯离子进入或钾离子外流产生超极化(抑制)。注意一个容易被误读的点:抑制不等于"把电位拉低",强抑制也可能主要增加膜电导而把膜电位"钳"住——这个分流抑制(shunting inhibition)现象在第 5 章的网络模型里会有回响。
动作电位:一段预告
虽然动作电位的完整机制要等第 2 章,这里先给一句物理版本:当膜电位从 -65 mV 去极化到阈值附近,电压门控钠通道被正反馈式打开,膜电位在约 1 毫秒内冲向 +40 mV,随后钠通道失活、钾通道打开,膜电位回落甚至短暂低于静息值。这个过程一旦触发就自维持全幅进行——这就是"全或无"。脉冲之后有约几毫秒的绝对不应期,通道无法再次触发;这保证了脉冲只能向前传导,也限制了最高发放率。
问题:动作电位既然全或无,为什么感觉刺激还有强弱之分?
分两层答。单根纤维层面:强度编码在发放频率与脉冲簇的时序里,不在单个脉冲的形状里——刺激越强,单位时间的脉冲越多。群体层面:更强的刺激还招募更多感受器与更多纤维(招募编码),两套机制叠加给出宽广的动态范围。这也是本册反复出现的分工:单个元件二值化,集体保留模拟量。
本节要点回顾
- 要点一:树突接收整合、轴丘决策、轴突传输、终末输出,四段职能对应四类模型。
- 要点二:脉冲约 1 毫秒、约 100 mV、全或无、后有不应期——四个定量锚点贯穿全册。
- 要点三:胶质细胞维持离子环境与髓鞘,是模型假设的隐性支撑。
- 要点四:化学突触有方向、可塑;兴奋与抑制由受体通道的离子选择性决定。
- 要点五:分流抑制提示"抑制不是减法"——留待第 5 章展开。
下节进入本章的定量核心:膜两侧的离子如何被泵出不平衡,又如何在静息时达成一个稳定在 -65 mV 的电学平衡。
案例:一次脱髓鞘病变如何拆解信号链
把结构知识用在一个完整病例上。多发性硬化患者的免疫系统攻击中枢髓鞘:轴突绝缘层破损后,跳跃传导的再生点失效,动作电位要么衰减消失、要么从破损处漏出触发异常传导。临床表现与位置严格对应——视神经受累则视力下降伴眼球转动痛,脊髓受累则肢体麻木无力。同一疾病在建模语言里就是一组参数变化:有髓段的结间电容增大、朗飞结的再生增益下降、传导速度从每秒数十米掉到数米。这个病例的读法值得记住:解剖结构 → 电学参数 → 症状的三步翻译,是本册贯穿始终的分析姿势,后续每个模型都在重复它。
再看一个对照病例。局部麻醉剂利多卡因阻断电压门控钠通道——结构完全不变,只改一个电导参数,结果同一根神经的信号链整体静默。两个病例合起来给出分工:髓鞘决定信号"跑多快多稳",钠通道决定信号"能不能发"。结构与分子,分别对应电缆方程与 HH 模型两条建模主线,这会在下一章反复出现。
词汇对照表:生物学名词的建模翻译
读原文献时最常见的障碍是名词,下面这张对照表把本章词汇一次性翻成模型语言:
| 生物名词 | 建模翻译 | 出场章节 |
|---|---|---|
| 树突棘 | 带独立突触权重的微小区室 | 2.4 |
| 轴丘 | 高钠通道密度的触发区 | 2.2 |
| 髓鞘 / 朗飞结 | 降低电容 + 周期性再生中继 | 2.1 |
| 胶质细胞 | 维持胞外离子浓度的边界条件 | 1.3 |
| 化学突触 | 双指数电导 + 翻转电位 | 3.1 |
| 电突触 | 直接的电阻耦合项 | 2.1 |
| 神经递质回收 | 突触电流的衰减时间常数 | 3.1 |
问题:为什么建模几乎总是从神经元出发,跳过胶质细胞?
因为当前证据链的权重:脉冲编码、突触可塑性、网络节律的主机制都在神经元上,胶质细胞的贡献(离子稳态、递质清除、髓鞘)大多被吸收进模型参数里。这不是否认胶质细胞的功能——星形胶质细胞的钙波研究正快速发展——而是在"恰当抽象"原则下的务实取舍:除非研究问题本身涉及胶质细胞,否则显式建模它们的收益撑不起成本。